

目次
- 1 1. コンプレキシンとは ─ 神経伝達の「発射スイッチ」を握る小さなタンパク質
- 2 2. コンプレキシンの4つのドメイン ─ 分業する4つの部品
- 3 3. クランプと促進 ─ ブレーキとアクセルを兼ねるしくみ
- 4 4. 放出のしくみ ─ カルシウムが留め金を外す瞬間
- 5 5. 4つの型(CPLX1〜CPLX4) ─ 場所ごとに違う役割分担
- 6 6. シナプス以外での役割 ─ ホルモン分泌や受精でも働く
- 7 7. てんかんとの関係 ─ CPLX1変異と発達性てんかん性脳症(DEE)
- 8 8. 統合失調症・加齢との関係 ─ 発現量の微妙な変化が脳機能を左右する
- 9 9. 遺伝診療との接点 ─ 遺伝カウンセリングでどう関わるか
- 10 よくある質問(FAQ)
- 11 参考文献
- 12 関連記事

私たちがものを見て、考え、体を動かせるのは、脳の神経細胞どうしが神経伝達物質という化学物質をやり取りしているからです。この受け渡しは、1000分の1秒という驚くほど短い時間で、しかも必要なときにだけ正確に起こる必要があります。その「発射のタイミング」を握る小さなタンパク質がコンプレキシン(Complexin)です。ふだんは神経伝達物質が漏れ出さないように「留め金」をかけ、信号が届いた瞬間にいっせいに放出させる——そんな絶妙なブレーキとアクセルの役割を担っています。このコンプレキシンを作るCPLX1遺伝子に生まれつきの変化があると、重いてんかんや発達の遅れが起こることもわかってきました。この記事では、コンプレキシンとは何か、どうやって神経伝達を制御するのか、そして統合失調症やてんかんといった病気とどうつながるのかを、遺伝専門医の視点でやさしく解説します。
Q. コンプレキシンとは何ですか?まず結論だけ知りたいです
A. コンプレキシンとは、神経細胞のつなぎ目(シナプス)で、神経伝達物質の放出のタイミングを制御する小さなタンパク質です。神経伝達物質を包む袋(シナプス小胞)が細胞膜と融合するのを、ふだんは「留め金(クランプ)」として一時停止させ、電気信号(活動電位)が届いてカルシウムが流れ込んだ瞬間に、いっせいに融合させて放出を「促進」します。ブレーキとアクセルの両方を兼ねる、いわば発射の司令塔です。このタンパク質を作るCPLX1遺伝子の両方のコピーに機能を失う変化があると、生後まもなくから重いてんかん(発達性てんかん性脳症)を起こすことが報告されています。
- ➤正体 → シナプスで神経伝達物質の放出タイミングを握る、分子量15〜20 kDaほどの小さなタンパク質
- ➤二つの顔 → 自発的な漏れを止める「クランプ(留め金)」と、同期放出を助ける「促進」を兼ねる
- ➤相棒 → SNARE複合体という膜融合装置と、カルシウムセンサーのシナプトタグミンと三者で連携する
- ➤4つの型 → CPLX1〜CPLX4があり、脳の速い回路や網膜など、場所ごとに役割が異なる
- ➤病気とのつながり → CPLX1の両アレル性の機能喪失は重い発達性てんかん性脳症の原因になり、統合失調症や加齢では発現量の変化が関わる
🧬 コンプレキシンの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | コンプレキシン(Complexin/シナフィン)。ヒトではCPLX1、CPLX2、CPLX3、CPLX4の各遺伝子にコードされる |
| 正体 | シナプス前終末に多く存在する、水にとけやすい小さな制御タンパク質(約15〜20 kDa) |
| 主なはたらき | 融合クランプ(自発放出の抑制)と同期放出の促進という、相反する二つの機能 |
| 連携する相手 | SNARE複合体(膜融合装置)、シナプトタグミン(カルシウムセンサー) |
| 遺伝子の型 | 脊椎動物ではCPLX1〜CPLX4の4種類。脳・網膜など発現する場所が異なる[1] |
| 医療との関わり | CPLX1変異は重いてんかんの原因に。統合失調症や加齢に伴う認知機能とも関連 |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. コンプレキシンとは ─ 神経伝達の「発射スイッチ」を握る小さなタンパク質
神経細胞どうしのつなぎ目であるシナプスでは、情報が電気の信号から化学物質の信号へと乗りかえられます。電気信号(活動電位)が神経の末端(シナプス前終末)に届くと、神経伝達物質という化学物質を詰め込んだ小さな袋、シナプス小胞が細胞膜と融合し、中身を外へ放出します。この放出があって初めて、次の神経細胞へ信号が伝わるのです。
この膜と膜の融合を実際に引き起こす装置が、SNARE複合体と呼ばれるタンパク質の束です。シナプス小胞側のVAMP2(シナプトブレビン)と、細胞膜側のシンタキシン-1、SNAP-25という3種類のタンパク質が、ファスナーを閉じるように(ジッパー化)からみ合うことで、二つの膜を強く引き寄せて融合させます[1]。
💡 用語解説:SNARE複合体とジッパー化
SNARE(スネア)複合体は、シナプス小胞と細胞膜を融合させる「膜融合装置」です。3種類のタンパク質のひも状の部分が、ファスナー(ジッパー)を閉じるように端から順にからみ合っていきます。この「ジッパー化」で生まれる力が、水と油のようにくっつきにくい二つの膜を無理やり融合させます。ジッパーが完全に閉じきると膜が融合して神経伝達物質が放出される、というイメージです。
ところが、神経伝達はただ膜が融合すればよいというものではありません。活動電位が届いた「その瞬間」に、いっせいに放出する必要があります。そのためには、SNARE複合体が完全にジッパーを閉じきる直前の状態(スタンバイ状態)で融合をいったん止めておき、合図を待つ「留め金」のしくみが欠かせません。この留め金の役割を担うのが、コンプレキシン(Complexin)です[1]。
コンプレキシンは、分子量15〜20 kDaほどの小さな水溶性タンパク質で、脊椎動物の進化を通じてよく保存されてきました。組み立て途中のSNARE複合体に強く結びつき、融合を止める「クランプ(抑制)」と、融合をいっせいに進める「促進(ファシリテーション)」という、一見正反対の二つのはたらきを同時にこなします[2]。この二面性こそが、コンプレキシンという分子のいちばんの特徴であり、面白さでもあります。
2. コンプレキシンの4つのドメイン ─ 分業する4つの部品
コンプレキシンは、水の中にあるときは決まった形を持たない、ふにゃふにゃした(本質的に無秩序な)タンパク質です。ところが、SNARE複合体や膜に触れると、部分ごとに決まった形をとって働き始めます。この分子は、機能の異なる4つの部品(ドメイン)が数珠つなぎになってできており、それぞれが放出の別々のステップを受け持っています[1]。
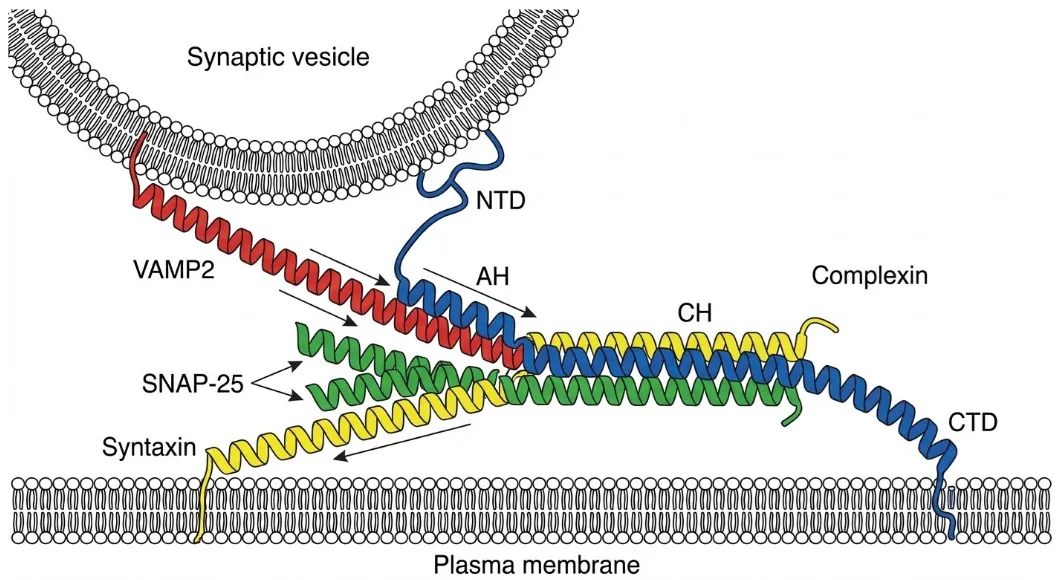
まずN末端ドメイン(NTD)は、カルシウムに応じた高速の同期放出を「促進」するのに欠かせない部分です。SNARE複合体の先端側にはたらきかけ、膜融合に必要なエネルギーの壁を下げます。おどろくべきことに、このNTDはSNAREに結合する部分から物理的に切り離しても、独立した機能モジュールとして膜と相互作用し、カルシウム依存性融合の促進に寄与できることが、単一小胞を使った再構成実験で示されています[14]。
次にアクセサリーヘリックス(AH)は、合図がないのに小胞が勝手に融合してしまう「自発放出(ミニ放出)」を抑える、留め金の主役です。SNARE複合体が端から順にジッパー化していく途中で、AHはシンタキシン-1とシナプトブレビン-2のあいだのみぞに逆向きに割り込みます。すると膜に近い側の組み立てが立体的にじゃまされ、小胞は半分だけジッパーが閉じた状態(ハーフジッパー)のまま、膜にドッキングして待機します。光ピンセットという1分子をあやつる装置を使った実験では、コンプレキシンを加えると、部分的に組み上がったSNARE複合体が安定化し、それをほどくのに余分な力が必要になることが確かめられています[2]。まさに、物理的な「つっかえ棒」として働いているのです。
セントラルヘリックス(CH)は、コンプレキシンのすべての機能の土台となる必須の芯です。SNARE複合体の中心にできるみぞに、非常に強く(おおよそ10〜100 nMという高い親和性で)結びつき、組み立て途中の複合体を安定させます。この結合は、SNARE複合体が少なくとも半分以上ジッパー化した後でないと起こらないことがわかっており、ドッキングの最終段階でだけコンプレキシンが介入する、精密なタイミング制御が働いていることを示しています[2]。
最後のC末端ドメイン(CTD)は、コンプレキシンを細胞質からシナプス小胞の膜へと運び、待機させる役割を持ちます。哺乳類のコンプレキシン1のCTDは膜の丸まり具合を感じ取る能力を持ち、パーキンソン病でも知られるα-シヌクレインなどと同じように、直径30〜40 nmほどの強く丸まったシナプス小胞に優先的にくっつきます[3]。あらかじめ小胞に貼りついて待機していることが、ここぞという場面で素早く留め金をかけるために重要だと考えられています。
🩺 院長コラム【「小さな部品」が全体を左右する】
コンプレキシンは、神経の巨大な情報ネットワークの中では、ほんの小さな一分子にすぎません。けれども、その小さな留め金がゆるむだけで、脳全体のバランスが崩れてしまうことがあります。遺伝子やタンパク質の世界では、こうした「小さいけれど決定的な部品」がしばしば病気の鍵を握ります。
遺伝子の変化を読むとき、私はいつも「その一文字の違いが、体の中でどんな部品を、どんなふうに変えてしまうのか」を考えます。コンプレキシンのように、留め金の一部が失われるだけで放出が暴走してしまう分子を知ると、遺伝子検査でみつかる小さな変化を軽く見てはいけない、とあらためて感じます。
3. クランプと促進 ─ ブレーキとアクセルを兼ねるしくみ
コンプレキシンのいちばんの特徴は、「止める」と「進める」を同時に担うことです。ふだんは合図のない自発放出を止めておき(クランプ)、いざカルシウムが流れ込むと、いっせいに融合を進める(促進)。この切り替えを、先ほどの4つのドメインが分担して実現しています。全体の流れを図で見てみましょう。
「クランプ」がなぜ大切なのか、少し想像してみてください。もし留め金がまったくなければ、シナプス小胞は合図を待たずに勝手に融合し、神経伝達物質がだらだらと漏れ続けてしまいます。これでは、いつが本当の「信号」なのか、次の神経細胞には区別がつきません。コンプレキシンが自発放出を抑えることで、シナプスは静かな状態を保ち、本物の信号だけをくっきりと伝えられるのです[2]。
一方の「促進」は、合図が来たときにいっせいに、しかも大量に放出するために必要です。ばらばらのタイミングで少しずつ放出していては、素早く正確な神経伝達はできません。コンプレキシンは、小胞をスタンバイ状態にそろえて待機させ、カルシウムの合図で一気に放出させることで、放出の同期性(タイミングのそろい)を保証しています[2]。ブレーキをかけて待たせるからこそ、アクセルを踏んだ瞬間にそろって発進できる、というわけです。
4. 放出のしくみ ─ カルシウムが留め金を外す瞬間
シナプス小胞の放出は、SNAREタンパク質だけで進むのではなく、いくつもの補助タンパク質が舞台裏でオーケストラのように連携して進みます。まず、細胞膜側のシンタキシン-1は、ふだんは自分の一部を折りたたんだ「閉じた形」をとっており、Munc18-1というタンパク質がこれをしっかり抱え込んで、勝手に反応しないよう保護しています[4]。
次に、Munc13-1というタンパク質が登場し、シンタキシン-1を「閉じた形」から「開いた形」へと開かせ、SNARE複合体の組み立てを助けます。光ピンセットを使った最先端の1分子実験では、Munc13-1の一部(MUNドメイン)とMunc18-1が協力して、シンタキシン-1とVAMP2を含む「テンプレート複合体」という中間状態を作り、これがおよそ2.1 kBTというわずかなエネルギーで安定化されることが明らかにされました[4]。つまりMunc18-1とMunc13-1は、SNARE複合体を正しい向きで組み立てさせる「介添え役(分子シャペロン)」として働いているのです。
💡 用語解説:プライミングとアンチ・デプライミング
シナプス小胞が「いつでも放出できる準備万端の状態」に整えられることをプライミングといいます。ところが、細胞の中にはこの準備を途中で解体してしまうタンパク質(NSFとα-SNAP)も存在します。コンプレキシンは、組み立て途中のSNARE複合体に素早く結合して、この解体からSNAREを守ります。これを「アンチ・デプライミング(=準備を解体させない)」と呼びます。留め金をかけながら、同時に準備状態が壊れないよう見張っている、というわけです。
こうして準備が整うと、あとはカルシウムの合図を待つだけです。活動電位が届いてカルシウムチャネルが開き、局所的にカルシウムが流れ込むと、シナプス小胞の上にあるカルシウムセンサー、シナプトタグミン-1が活性化します[6]。シナプトタグミン-1はカルシウムと結びつくと、融合の最終的な引き金を引きます。
では、シナプトタグミン、コンプレキシン、SNARE複合体はどう連携するのでしょうか。ここは構造生物学者のあいだで長く議論が続いてきた難問です。かつては、この三者が「三者間インターフェース」という巨大な複合体を作って融合を強く留めている、という結晶構造にもとづくモデルが提案されました。しかしその後、水溶液の中でタンパク質の動きを調べるNMRなどの手法では、この三者間インターフェースがほとんど検出されず、その生理的な意味には疑問が投げかけられています[5]。現在は、シナプトタグミン-1とSNARE複合体が「一次インターフェース」と呼ばれる別の面で結びつくことが、留め金と準備の実体だとする見方が有力です[5]。
最新の研究は、カルシウムが融合の引き金を引くしくみとして「てこ(レバー)仮説」を支持しています。カルシウムがシナプトタグミン-1に結合すると、シナプトタグミン-1は細胞膜へ深く差し込まれます。この動きが「てこ」のように働いてSNARE複合体を物理的に引っぱり、コンプレキシンによる留め金をはじき飛ばして、膜に近い側のジッパー化を一気に進め、融合の孔を開けると考えられています[6]。留め金が外れた瞬間に、待機していた小胞がいっせいに融合する——これが、ミリ秒以下の速さで正確に起こる神経伝達の正体です。
5. 4つの型(CPLX1〜CPLX4) ─ 場所ごとに違う役割分担
脊椎動物のコンプレキシンには、CPLX1〜CPLX4というコンプレキシンファミリーの4種類があり、神経系の中でそれぞれ特徴的な場所に発現しています[1]。この分かれ方は単なる予備ではなく、回路ごとに求められる放出のスピードやタイミングの精度に合わせた、進化的な役割分担だと考えられています。
🧬 コンプレキシンの4つの型と役割
| 型 | 主な発現場所 | 特徴・役割 |
|---|---|---|
| CPLX1 | 脳(小脳・視床・海馬・大脳皮質)、パルブアルブミン陽性の抑制性神経細胞 | 高速で放出するシナプスの厳密なタイミングを守る。興奮と抑制のバランス維持に関わる |
| CPLX2 | 脳(線条体・海馬・扁桃体)、副腎のクロマフィン細胞、膵臓のβ細胞など | 認知や感情の回路に豊富。脳の外のホルモン分泌でも働く |
| CPLX3 | 網膜(光受容体・双極細胞)のリボンシナプス | C末端に脂質修飾(CAAXモチーフ)を持ち、膜に強く固定される |
| CPLX4 | 網膜(光受容体・双極細胞)のリボンシナプス | CPLX3と同様に脂質修飾を持ち、持続的な放出を支える |
※発現場所は主要なものを示したものです。ヒトではCPLX1は4番染色体短腕(4p16.3)に位置します。
CPLX1とCPLX2は、中枢神経系に広く発現し、アミノ酸配列が86%も一致するよく似た兄弟でありながら、脳の中ではほぼ棲み分けるように分布しています[1]。とくにCPLX1は、脳の興奮をすばやく抑えるGABA作動性の抑制性神経細胞(パルブアルブミン陽性の高速発火型)に多く発現し、脳の回路全体の興奮と抑制のバランス(E/Iバランス)を保つのに欠かせません。一方のCPLX2は、認知や感情をつかさどる回路(線条体や海馬など)に濃く分布し、グルタミン酸作動性のシナプスに多く見られます[1]。
これに対してCPLX3とCPLX4は、主に網膜の「リボンシナプス」という特殊な構造に発現します。リボンシナプスは、活動電位のオン・オフ(あるかないか)ではなく、光の強さに応じた膜電位のゆるやかな変化(アナログ信号)に合わせて、神経伝達物質を持続的に放出します。CPLX3とCPLX4はC末端に脂質を付ける「CAAXモチーフ」という目印を持ち、脂質修飾によってリボンシナプスの膜に強く固定されるため、視覚情報の連続的な伝達を安定して支えられると考えられています[1]。
6. シナプス以外での役割 ─ ホルモン分泌や受精でも働く
コンプレキシンの働きは、脳の高速な神経伝達だけにとどまりません。ホルモンの分泌や受精など、形のまったく異なるカルシウム依存性の分泌のしくみでも、共通の調整役として働くことがわかっています[7]。
たとえば、副腎のクロマフィン細胞は、アドレナリンなどのカテコールアミンを大きな袋(大型有芯小胞)に詰めて血中に放出します。この細胞はCPLX2を主に発現しているため、その役割を調べるのに適したモデルです。CPLX2を欠いたクロマフィン細胞では、放出の総量が減るだけでなく、カルシウムチャネルのすぐそばに位置する「すぐに放出できるプール」の小胞の数が著しく減ることが示されました[7]。これは、コンプレキシンがSNARE複合体を安定させることで、小胞とカルシウムチャネルの機能的なつながりを促し、刺激に対する同期的な放出を保証していることを意味します。二つのモデル系を比較した研究でも、コンプレキシンが小胞の準備を助け、放出のタイミングをそろえる役割を持つことが確かめられています[8]。
さらにおどろくのは、哺乳類の受精での役割です。精子が卵子を包む透明帯を突き破るためには、精子の頭を覆う巨大な袋である先体(アクロソーム)の中身を放出する「先体反応」が必要です。この先体反応は、神経伝達のようなくり返しの放出とはまったく違い、一度きりの大規模な多点融合という特殊なプロセスです。成熟した精子にはCPLX1とCPLX2の両方があるにもかかわらず、CPLX1を欠いたマウスの精子は、薬で強制的に刺激すれば先体を放出できるものの、本来の合図である透明帯タンパク質に触れても先体反応を起こせず、受精する力が大きく低下します[9]。CPLX2が代わりに増えても症状が補われないことから、まったく形の違う巨大な分泌でも、CPLX1によるSNARE複合体の厳密な制御が特別に必要であることが示されています[9]。膵臓β細胞のインスリン分泌など、ほかの分泌のしくみでも、コンプレキシンは共通のアダプタータンパク質として働いています[7]。
\ 遺伝子や遺伝性の病気について、専門医にご相談ください /
7. てんかんとの関係 ─ CPLX1変異と発達性てんかん性脳症(DEE)
コンプレキシンの留め金機能が失われると、どうなるのでしょうか。その答えを、もっとも劇的な形で示すのが、CPLX1遺伝子の変異による発達性てんかん性脳症(DEE)です。近年、次世代シーケンシング(多数の遺伝子を一度に読む検査)によって、CPLX1遺伝子の両方のコピーに機能を失う変化(両アレル性の機能喪失変異)があると、極めて重い小児期のてんかんの直接の原因になることがわかってきました[12]。
💡 用語解説:発達性てんかん性脳症(DEE)と両アレル性の機能喪失
発達性てんかん性脳症(DEE)とは、基礎にある遺伝的・構造的な病因そのものによる発達障害に加えて、てんかん発作や頻繁なてんかん性脳波活動が発達にさらに悪影響を与える、重いてんかんの一群です。
両アレル性の機能喪失とは、父由来・母由来の2本ある遺伝子コピーの両方が働かなくなる状態のこと。片方だけの変化では発症しにくく、両方そろって初めて症状が出るため、これを常染色体潜性(劣性)遺伝といいます。
実際の研究では、知的障害の原因を調べる大規模な全エクソーム解析の中で、二つの家系の3人の患者さんからCPLX1のホモ接合性(両アレル性)変異がみつかりました。この患者さんたちは、いずれも著しい発達の遅れと、生後早期からの遊走性ミオクロニーてんかんという難治性のてんかんを示しました[12]。CPLX1をまったく持たないノックアウトマウスも、生まれてまもなくから強い運動失調(ataxia)を示すことが知られており、コンプレキシン1が正常な脳と運動の発達に不可欠であることを裏づけています[12]。
なぜ、コンプレキシン1の機能が失われると重い神経症状につながるのでしょうか。コンプレキシンは、自発放出を抑えるクランプ機能だけでなく、活動電位に応じた同期放出を促進する役割も担っています。そのためCPLX1の機能喪失では、自発放出と刺激依存性放出の双方の制御が乱れ、神経回路における興奮と抑制のバランスや情報伝達のタイミングが障害されることが、重いてんかんや発達障害の病態に関与すると考えられています[12]。ただし、ヒトのCPLX1関連疾患で特定の神経伝達物質が慢性的に過剰になることや、興奮毒性が直接の原因であることまで確立されているわけではありません。
CPLX1関連のDEEは、SNAREの働きに関わる遺伝子の異常によって起こるてんかん、いわゆるSNARE関連てんかん(シナプス病)の一つに位置づけられます。同じように、SNARE装置を支えるSTXBP1遺伝子(Munc18-1を作る遺伝子)や、シナプス小胞のリサイクルに関わるDNM1遺伝子の変異も、それぞれ発達性てんかん性脳症の原因として知られています。神経伝達物質を放出する装置のどの部品が壊れても、よく似た重いてんかんが起こりうる、という共通性がみえてきます。診断の確定には、こうした遺伝子を含む遺伝学的検査が用いられます。
8. 統合失調症・加齢との関係 ─ 発現量の微妙な変化が脳機能を左右する
CPLX1変異のように遺伝子が完全に働かなくなる場合だけでなく、コンプレキシンの発現量のわずかな変化も、脳の高次機能に影響することがわかってきました。その代表が統合失調症です。
統合失調症の患者さんの死後脳を調べた研究では、コンプレキシンを含むシナプス関連タンパク質の変化が報告されています。文献[10]では、組織全体に含まれるCPLX1・CPLX2タンパク質量そのものに明確な差がみられたわけではありませんが、タンパク質複合体を詳しく調べる特殊な電気泳動(BN-PAGE)によって、SNAREタンパク質どうしの相互作用や複合体の構成が変化していることが示されました[10]。前頭葉や前帯状皮質では高分子量のSNARE関連複合体が増加しており、シナプス小胞の放出を支える分子機械の動的な調節が乱れている可能性が示唆されています[10]。こうした所見は統合失調症におけるシナプス機能異常の一端を示すものですが、コンプレキシンの変化だけで病態全体を説明できるわけではありません。
💡 「量そのもの」より「バランス」が効く
高齢者を対象とした大規模な研究では、前頭葉におけるCPLX1(抑制性シナプスに豊富)とCPLX2(興奮性シナプスに豊富)の比率(バランス)が、認知機能やその後の認知機能低下と関連することが示されました。アルツハイマー病関連病理を含む複数の神経病理学的指標を統計学的に調整した解析でも、このCPLX1/CPLX2比と認知機能との関連が認められています[11]。この所見は、興奮性・抑制性シナプス機能のバランスが、加齢に伴う認知機能の個人差に関わる可能性を示しています。
神経が徐々に失われていく神経変性疾患の初期にも、コンプレキシンの発現異常が観察されます。ハンチントン病のモデルマウスや患者さんの死後脳では、ほかのシナプスの目印が保たれている発症のごく早期から、CPLX2が選択的に減ることが確認されています[1]。またパーキンソン病でも、α-シヌクレインの異常な蓄積がコンプレキシン1・2の発現低下を招くことが示されており、これが運動障害の初期要因になっている可能性が指摘されています[1]。コンプレキシンは、脳の状態を映す鋭敏なセンサーのような存在なのかもしれません。
コンプレキシンは、活動に応じてはたらきが調節される点でも、脳の柔軟さ(シナプス可塑性)に関わります。神経活動が活発になって細胞内のcAMPが上がると、PKAという酵素がコンプレキシンの特定の場所をリン酸化し、膜への貼りつきやすさを変えることで、自発放出の頻度を動的に調節すると考えられています[1]。こうした翻訳後修飾によって、コンプレキシンは短期的なシナプスの変化にも寄与しています。
近年は、集束イオンビーム加工とクライオ電子線トモグラフィー(Cryo-ET)を組み合わせ、神経細胞を凍らせたまま立体的に観察する技術も進んでいます。この手法により、ドッキングした小胞と細胞膜をつなぐ細い糸状の構造(SNAREやコンプレキシンを含む融合直前の複合体と推定される)が直接観察され、エキソサイトーシスがランダムな衝突ではなく、高度に組織化された装置の中で起こっていることが視覚的に示されつつあります[13]。同じ研究では、放出部位が受容体クラスターの真正面から少しずれて配置されていることも報告されており、この幾何学的なずれがシナプス後部の応答のばらつきに関わる可能性が指摘されています[13]。
9. 遺伝診療との接点 ─ 遺伝カウンセリングでどう関わるか
ここまで見てきたように、コンプレキシンは基礎研究のテーマであると同時に、遺伝診療とも確かな接点を持っています。とくにCPLX1遺伝子の両アレル性の機能喪失変異は、常染色体潜性(劣性)遺伝という形で受け継がれる、発達性てんかん性脳症の原因遺伝子の一つです[12]。
常染色体潜性遺伝の病気では、ご両親はそれぞれ変化した遺伝子を1本ずつ持つ「保因者」でありながら、ご自身は症状を示さないことがほとんどです。お子さんが父母の両方から変化した遺伝子を受け継いだときにだけ発症します。このため、すでにお子さんが診断された場合、次のお子さんでも同じことが起こる確率(再発率)や、血縁者の保因の可能性などが、ご家族にとって切実な関心事になります。こうした確率や選択肢を、一方的に方向づけることなく整理してお伝えするのが、遺伝カウンセリングの役割です。
重いてんかんや発達の遅れの背景に、CPLX1をはじめとするシナプス関連遺伝子の変化が隠れていることは少なくありません。診断を確定するためには、こうした遺伝子を含むてんかんの遺伝子パネル検査(多数の関連遺伝子を一度に調べる検査)が用いられます。原因遺伝子がはっきりすると、見通しを立てやすくなるだけでなく、ご家族の遺伝カウンセリングにもつながります。当院では、こうした検査の意味や結果の受け止め方について、臨床遺伝専門医がご相談をお受けしています。
なお、コンプレキシンそのものを標的にした治療法は、現時点では確立されていません。異常な巨大SNARE複合体を分解する技術や、SNARE複合体の安定性を調節する低分子化合物の開発などが研究段階で検討されていますが、いずれもまだ基礎研究の段階です。ここでは、コンプレキシンという分子が神経疾患の理解にどうつながるかを、基礎知見として紹介しています。治療に関する判断は、必ず主治医とご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
よくある質問(FAQ)
Q1. コンプレキシンとは何ですか?
コンプレキシンは、神経細胞のつなぎ目(シナプス)で、神経伝達物質の放出のタイミングを制御する小さなタンパク質です。神経伝達物質を包む袋(シナプス小胞)が細胞膜と融合するのを、ふだんは「留め金(クランプ)」として一時停止させ、電気信号が届いてカルシウムが流れ込んだ瞬間に、いっせいに融合させて放出を促進します。膜融合装置であるSNARE複合体に結合して働き、ブレーキとアクセルの両方を兼ねる、発射の司令塔のような存在です。
Q2. コンプレキシンとCPLX1遺伝子はどう違うのですか?
コンプレキシンは、はたらくタンパク質そのものの名前です。CPLX1は、そのタンパク質(コンプレキシン1)を作るための設計図にあたる遺伝子の名前です。ヒトのコンプレキシンにはCPLX1〜CPLX4の4種類があり、それぞれ別の遺伝子から作られます。CPLX1は脳の高速な回路や抑制性の神経細胞に多く、CPLX2は認知や感情の回路のほか、脳の外のホルモン分泌細胞にも見られます。CPLX3とCPLX4は主に網膜で働きます。
Q3. CPLX1遺伝子の変異は、どんな病気を起こしますか?
CPLX1遺伝子の両方のコピーに機能を失う変化(両アレル性の機能喪失変異)があると、生後早い時期から重いてんかん(発達性てんかん性脳症)を起こすことが報告されています。具体的には、著しい発達の遅れや、遊走性ミオクロニーてんかんと呼ばれる難治性のてんかん、筋緊張の低下、運動失調などがみられます。留め金の役割が失われることで、合図のない神経伝達物質の漏れが暴走し、脳の興奮と抑制のバランスが崩れることが原因と考えられています。これは常染色体潜性(劣性)遺伝の形で受け継がれます。
Q4. コンプレキシンは統合失調症とも関係がありますか?
関係が報告されています。統合失調症の患者さんの死後脳では、コンプレキシンを含むSNARE関連タンパク質複合体の構成や相互作用に変化が報告されています。文献[10]では、組織全体のCPLX1・CPLX2タンパク質量そのものに明確な差が示されたわけではありませんが、高分子量のSNARE関連複合体の増加が観察されています。こうした所見はシナプス機能異常の一端を示すものですが、コンプレキシンの変化だけで統合失調症が決まるわけではありません。
Q5. コンプレキシンを標的にした治療薬はありますか?
現時点では、コンプレキシンそのものを標的にした確立した治療法はありません。異常な巨大SNARE複合体を分解する技術や、SNARE複合体の安定性を調節する低分子化合物の開発などが研究段階で検討されていますが、いずれもまだ基礎研究の段階です。重いてんかんや発達の遅れの診断には、CPLX1を含むてんかん関連遺伝子のパネル検査が用いられます。治療や検査の判断については、必ず主治医や専門の医療機関にご相談ください。
参考文献
- [1] Complexin regulation of synaptic vesicle release: mechanisms in the central nervous system and specialized retinal ribbon synapses. Cell Commun Signal. 2024. [PMC11613576]
- [2] Complexins: small but capable. Cell Mol Life Sci. 2015. [PMC4611016]
- [3] C-terminal domain of mammalian complexin-1 localizes to highly curved membranes. Proc Natl Acad Sci U S A. 2016. [PMC5127347]
- [4] Munc13-1 MUN domain and Munc18-1 cooperatively chaperone SNARE assembly through a tetrameric complex. Proc Natl Acad Sci U S A. 2020. [PMC6969487]
- [5] Analysis of tripartite Synaptotagmin-1-SNARE-complexin-1 complexes in solution. FEBS Open Bio. 2023. [PMC9811660]
- [6] A lever hypothesis for Synaptotagmin-1 action in neurotransmitter release. Proc Natl Acad Sci U S A. 2025. [PNAS 2417941121]
- [7] Complexin II plays a positive role in Ca2+-triggered exocytosis by facilitating vesicle priming. Proc Natl Acad Sci U S A. 2008. [PMC2614796]
- [8] Complexin facilitates exocytosis and synchronizes vesicle release in two secretory model systems. J Physiol. 2013. [PMC3678037]
- [9] Complexin I is required for mammalian sperm acrosomal exocytosis. Dev Biol. 2007. [PMC2099451]
- [10] Increased SNARE Protein-Protein Interactions in Orbitofrontal and Anterior Cingulate Cortices in Schizophrenia. Biol Psychiatry. 2015. [PMC4474796]
- [11] Frontotemporal dysregulation of the SNARE protein interactome is associated with faster cognitive decline in old age. Neurobiol Dis. 2018. [PMC6483375]
- [12] Variants in CPLX1 in two families with autosomal-recessive severe infantile myoclonic epilepsy and ID. Eur J Hum Genet. 2017. [PMC5520065]
- [13] Nanoscale architecture of synaptic vesicles and scaffolding complexes revealed by cryo-electron tomography. Proc Natl Acad Sci U S A. 2024. [PMC11228483]
- [14] N-terminal domain of complexin independently activates calcium-triggered fusion. Proc Natl Acad Sci U S A. 2016. [PMC4987820]






