

目次

📍 クイックナビゲーション
精子が卵子にたどり着いても、それだけでは受精は始まりません。卵子は卵丘細胞の層と透明帯という二重のバリアに守られていて、精子はこれを突破しなければならないからです。その突破の道具を頭部の先端に積んでいるのが先体(アクロソーム)です。かつては「酵素が詰まっただけの袋」と考えられていましたが、いまでは受精の進行に合わせて段階的に自分をほどいていく、精巧な構造体だと分かってきました。そして先体がうまく作れないと、円頭精子症という男性不妊の原因になります。この記事では、先体がどう作られ、どう働き、その異常がどんな不妊につながるのかを、遺伝専門医の視点でやさしく解説します。
Q. 先体(アクロソーム)とは何ですか?まず結論だけ知りたいです
A. 先体は、精子の頭部の前半分をキャップのように覆う、ゴルジ体由来の小さな袋状の構造です。中には卵丘細胞層や透明帯との相互作用・通過に関わる加水分解酵素と、卵子との接着・融合に関わるタンパク質が高密度に詰め込まれています。受精のときに先体の膜と精子の細胞膜が融合して中身が段階的に放出される反応を先体反応と呼び、正常な生理的受精では、この反応に伴う膜の再編成が精子と卵子の接着・融合に重要です。先体がまったく作れない状態が円頭精子症で、男性不妊の直接の原因になります。
- ➤先体のでき方 → ゴルジ体から出た小胞が集まり、ゴルジ期・頭帽期・先体期・成熟期の4段階で核の上に形づくられる
- ➤核へのつなぎ留め → DPY19L2という核膜のアンカーが先体を核に固定する。これが壊れると先体がはがれ落ちる
- ➤先体反応の本当の場所 → 透明帯に着く前、卵丘細胞層を通り抜けている最中に始まっていることが分かってきた
- ➤融合の主役 → 先体反応の後、赤道節へ移動するIZUMO1が卵子側のJUNOと結合して融合が起こる
- ➤円頭精子症 → 先体を欠く男性不妊。ICSIと人為的卵子活性化(AOA)を組み合わせる治療がある
🧬 先体(アクロソーム)の基本情報
各項目の根拠と詳しい解説は、本文の該当セクションをご覧ください。
1. 先体とは何か ─ 精子が積んだ「突破のための道具箱」
精子は、父親の遺伝情報を卵子まで届けるという、たった一つの目的に特化した細胞です。リボソームや小胞体といった一般的な細胞小器官は精子ができあがる過程でほとんど捨て去られ、必要な装備だけを積んだ流線型の姿になります。その数少ない「積み荷」の一つが先体です。先体は精子頭部の前方を、ちょうど帽子のようにキャップ状に覆っていて、核(父方のDNAが収められた部分)のすぐ上に厳密に配置されています[1]。
先体の役割を理解するには、卵子がどれほど厳重に守られているかを知る必要があります。排卵された卵子は、外側を卵丘細胞(らんきゅうさいぼう)という細胞のかたまりに包まれ、その内側を透明帯(とうめいたい)という糖タンパク質でできた厚い殻がぐるりと囲んでいます。精子がこの二重の防御を越えて卵子本体に到達するための道具が、先体の中に高濃度で詰め込まれているのです[2]。動物の種類によって精子の形も先体の形も驚くほど多様ですが、「卵子を守る層を突破するための酵素群を蓄えておく」という先体の本質的な役割は、動物界を通じて高度に保存されています[1]。
📘 用語解説:ゴルジ体由来の分泌小胞
ゴルジ体は、細胞の中でタンパク質に「荷札」を付けて仕分け・出荷する物流センターのような器官です。先体は、このゴルジ体から出荷された小胞(膜でできた小さな袋)が集まってできあがります。つまり先体は、細胞が自前で作った分泌用の巨大な袋、と言い換えることができます。ゴルジ体そのものについてはゴルジ体(ゴルジ装置)の解説もあわせてご覧ください。
受精という現象全体の流れ、つまり精子と卵子がどう作られ、どう出会うのかについては配偶子形成と受精・減数分裂のしくみで全体像を解説しています。この記事では、その中で先体が果たす役割にしぼって、順を追って見ていきます。
2. 先体ができるまで ─ 4つの段階で組み立てられる
先体づくりは、精子ができあがる最終段階である精子完成(spermiogenesis)と、ぴったり歩調を合わせて進みます。減数分裂を終えた丸い形の精細胞が、細長い成熟精子へと劇的に姿を変えていく、その過程です。先体は一般に4つの段階を経て組み立てられると整理されています[2]。
面白いことに、精巣を離れた後も形が変わり続ける種があります。たとえばモルモットの精子では、精巣を出た直後は平たい手のひらのような形ですが、精子の通り道である精巣上体を通過するあいだに先端がふくらみ、背側が凸・腹側が凹のカップ状へと大きく作り変えられます[3]。先体づくりは工場で完成しておしまい、ではなく、出荷後の輸送中にも微調整が続くことがあるわけです。
なお、先体はもともと単純なリソソーム(細胞内の分解工場)の一種だと考えられた時期がありましたが、その後の研究でゴルジ体由来の分泌小胞であることが確立し、さらに近年はリソソーム関連オルガネラ(LRO)という特別な仲間として位置づけ直されています[4]。自己貪食(オートファジー)に関わる小胞や初期エンドソームからの輸送ネットワークも先体づくりに関与していることが、遺伝子改変マウスを使った研究から明らかになってきました[4]。
3. 核へのつなぎ留め ─ DPY19L2という「アンカー」
先体は、ただ核の上に乗っているだけではいけません。精子の頭部が正しく細長く伸びていくためには、先体が核の決まった位置にしっかり固定されている必要があります。この固定に関わる2つの仕組みが、先体を語るうえで欠かせません。
一つはアクロプラキソームという細胞骨格の足場です。これは先体と核のあいだの狭い空間に位置し、F-アクチンやケラチンという繊維でできた「縁取りのリング」を含んでいて、発達中の先体の成長する先端と核の表面をしっかり連結します[2]。もう一つが、核膜のタンパク質であるDPY19L2です。DPY19L2は核膜と先体の内側の膜のあいだに橋を架けるように配置され、先体を核につなぎ留める強力なアンカー(いかり)として働きます[5]。
図:DPY19L2が先体を核につなぎ留める
DPY19L2が核膜と先体内膜のあいだをつなぐことで、先体は正しい位置に保たれます。このアンカーが失われると、先体は固定されず、細胞質へはがれ落ちてしまいます。
このDPY19L2遺伝子が欠けると、先体は核に固定されなくなり、精子頭部を取り囲む一時的な微小管の構造(マンシェット)にも異常が生じます。その結果、せっかく作られた先体が細胞質のほうへはがれ落ち、失われてしまいます[5]。この「先体が核に留まれずに失われる」というメカニズムこそが、後で詳しく述べる円頭精子症の中心的な原因です。つまりDPY19L2は、先体という道具箱を精子の頭にしっかり結びつけておくための、決定的に重要な結び目なのです。

4. 「酵素の袋」から「自己制御するマトリックス」へ
先体の理解は、この10〜20年で大きく塗り替えられました。かつては、先体は「酵素が詰まっただけの袋(Bag of enzymes)」だと考えられていました。精子が卵子に触れると先体の外膜と精子の細胞膜が融合し、中の酵素が一気に放出されて透明帯を溶かす、という「全か無か」の単純な現象として捉えられていたのです[6]。
ところが電子顕微鏡や生化学の解析が進むと、この単純な袋モデルは覆されました。先体の中身は均一な液体ではなく、すぐ溶け出す可溶性の部分と、先体マトリックスと呼ばれる、簡単には溶けない粒子状のタンパク質の足場から成り立っていたのです[7]。実際、精子を界面活性剤と弱い酸性の緩衝液で処理して膜をすべて溶かしても、三日月型の粒子状マトリックスは核の先端に層状に残ることが確認されています[3]。
📘 用語解説:先体マトリックス
マトリックスとは「基質」「土台」という意味です。先体マトリックスは、酵素や結合タンパク質を規則正しく高密度に詰め込んだ、丈夫な足場(スキャフォールド)だと考えてください。ただ酵素が浮いているのではなく、必要なものが必要な場所に配置された立体的な構造になっている、という点が「袋」との決定的な違いです。
この発見が重要なのは、先体反応が一瞬の出来事ではないことを意味するからです。先体マトリックスは、タンパク質分解酵素(プロテアーゼ)の働きで制御されながら、少しずつ段階的にほどけていきます[6]。ヒトの先体反応では電子顕微鏡下で6つの段階が、マウスでは4つの段階がはっきりと見分けられています[3]。この段階的なほどけ方のおかげで、精子が透明帯を通り抜ける数十分のあいだ、必要な酵素や結合タンパク質が適切なタイミングと場所で供給され続けることができるのです。
先体マトリックスには、透明帯との相互作用や通過に関わる酵素のほかにも、卵子のまわりの卵丘細胞層(ヒアルロン酸のかたまり)を分解するヒアルロニダーゼ(PH-20/SPAM1)や、透明帯に結合するタンパク質、そしてSPACAファミリーと呼ばれる多機能なタンパク質群などが、規則正しくパッケージされています[7]。この頑丈なパッケージングには、精子が女性生殖器内の過酷な環境を移動するあいだ、酵素が早まって暴発しないよう守る意味もあると考えられています。
5. 先体反応の仕組み ─ 受精能獲得というスイッチ
射精されたばかりの精子は、実はすぐには受精する力を持っていません。女性生殖器の中(あるいは体外受精なら培養液の中)に一定時間とどまることで、キャパシテーション(受精能獲得)という生理的な変化を遂げる必要があります[8]。
📘 用語解説:キャパシテーション(受精能獲得)
精子が卵子と受精できる状態に「仕上がる」過程のことです。精子膜からコレステロールが抜けて膜が動きやすくなり、細胞内のカルシウム濃度が上がり、鞭毛の動きが活発になります。いわば、道具箱のロックを外して、いつでも使える状態にセットする準備運動のようなものです。
キャパシテーションの過程では、精子膜からコレステロールが抜けて膜の流動性が増し、CatSperという特別なイオンチャネルが活性化して細胞内のカルシウム濃度が上昇し、タンパク質をリン酸化する酵素(PKAやPKC)が活性化します[8]。こうした変化によって先体の膜システムが不安定化し、外からの刺激ですぐに先体反応を起こせる準備が整うのです。
先体反応そのものは、生化学的には巨大なエクソサイトーシス(開口放出)です。これは神経細胞が神経伝達物質を放出するときの仕組みとよく似ています。中心になるのはカルシウムの動きで、ホスホリパーゼC(PLC)という酵素が活性化して細胞内のカルシウム放出を促し、SNARE複合体という膜融合の装置が実際の膜どうしの融合を実行します[8]。
興味深いのは、先体反応の引き金に関わる特定の遺伝子(PLCの一種やSNARE関連因子など)が壊れた変異マウスの精子でも、カルシウムイオノフォアという薬剤で強制的にカルシウムを流し込むと、先体反応が正常に進んで試験管内で卵子を受精させられることです[8]。このことは、特定のリガンド(誘導物質)による先体反応が受精の「後押し」として働く一方で、それだけが絶対に不可欠な引き金というわけではない可能性を示しています[8]。このカルシウムの重要性は、後で述べる卵子活性化と人為的卵子活性化(AOA)の話にもつながっていきます。
6. 発火の舞台は透明帯ではなく「卵丘細胞層」だった
先体反応がどこで起こるのか。これも長年の定説がひっくり返った領域です。古典的な受精モデルでは、精子は先体を保った無傷の状態で透明帯に到達し、透明帯の糖タンパク質(特にZP3)と結合したことが引き金となって先体反応が起こる、と考えられてきました[8]。透明帯に着く前に起こる先体反応は「早すぎる異常」として扱われていたのです。
この定説を覆したのが、蛍光ライブイメージングを使った画期的な研究でした。先体に緑色、中片部に赤色の蛍光を組み込み、先体反応が起きると緑の蛍光が消える様子をリアルタイムで観察できる遺伝子改変マウスの精子を用いた解析です。その結果、自然に近い受精の条件下で、実際に卵子と融合を果たす精子の大部分は、透明帯に到達する前、つまり卵丘細胞層を通り抜けている最中に、すでに先体反応を始めていることが明らかになりました[10]。
図:先体反応はどこで始まるか(新しい理解)
では、何が卵丘細胞層での先体反応を促しているのでしょうか。卵丘細胞からは、ごく低い濃度のプロゲステロンが分泌され、微細な化学的な勾配(グラデーション)を作っていることが分かっています。このプロゲステロンの勾配が、精子のさまざまな集団に対して先体反応の「準備」と「発火」を選択的に促していると考えられています[8]。つまり卵丘細胞層は、単に物理的にじゃまをする壁ではなく、精子の先体反応を時間的・空間的に細かく制御する、動的な生化学的インターフェースとして働いているのです。
7. 精子と卵子の融合 ─ 赤道節とIZUMO1
先体反応を終え、マトリックスを段階的にほどきながら透明帯を貫通した精子は、透明帯と卵子膜のあいだの空間(囲卵腔)に到達します。ここで融合の舞台になるのは、先体反応を免れた精子頭部後方の赤道節(せきどうせつ)という特別な膜の領域です[2]。
哺乳類の精子と卵子の膜融合に、絶対に欠かせない精子側のタンパク質がIZUMO1です。IZUMO1を失ったマウスの精子は、透明帯までは通過できるのに、卵子の膜とまったく接着・融合できません[11]。IZUMO1の最も特徴的な性質は、先体反応の前後で劇的に居場所を変える「空間的な再配置」です。先体反応の前は先体のキャップ領域の膜に隠れていて表面にはあまり出ていませんが、先体反応で膜が融合すると、IZUMO1は精子の表面に現れ、すみやかに赤道節へ移動・集積します[9]。この移動はF-アクチンの動的な組み替えに強く依存していて、アクチンの重合を止める薬剤で精子を処理すると赤道節への再配置がブロックされ、受精能力が著しく下がります[12]。
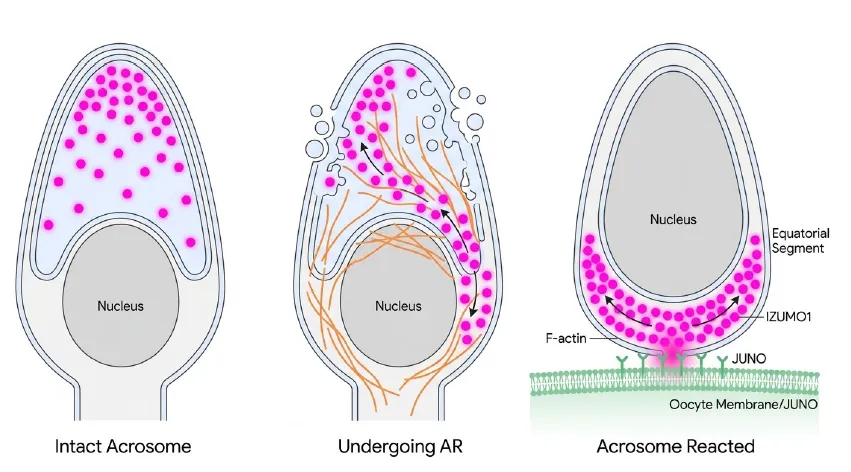
赤道節に集まったIZUMO1が卵子の表面に届くと、卵子側の受容体であるJUNOと強く結合します[13]。このIZUMO1とJUNOの結合が、哺乳類の精子・卵子の接着で最も重要なステップです。そして受精が起こった直後、卵子表面のJUNOは急速に外へ放出されます。この現象は、ほかの精子が結合しにくくなり、複数の精子が入り込む多精子受精を防ぐ仕組みの一つである可能性が示されています[13]。
ただし、IZUMO1とJUNOの結合は「接着」には必須ですが、それだけで脂質二重膜の「融合」まで完成するのかは長く議論されてきました。現在では、IZUMO1は単独ではなく、TMEM95やSPACA6といった複数の精子側タンパク質と大きな複合体(融合シナプス)を作って働いていると考えられています[14]。生命の根幹である受精をより確かなものにするために、複数の因子が重なり合って支える冗長な仕組みが、進化の過程で獲得されてきたと考えられます。
8. 先体が作れないと ─ 円頭精子症と受精障害
ここまで見てきた先体の働きが根本から破綻すると、男性不妊の直接の原因になります。その代表が円頭精子症(グロボゾースペルミア)です。これは不妊男性の0.1%未満にみられる、非常にまれな形態異常で、精子頭部が完全な円形になり、先体構造がまったく(あるいは一部の精子でのみ)欠けているのが特徴です[15]。先体がないため、これらの精子は透明帯に結合することも貫通することもできず、自然の受精は成立しません。
📘 用語解説:常染色体潜性(劣性)遺伝
両親がそれぞれ同じ遺伝子の変化を1つずつ持っていて(無症状の保因者)、子どもがその両方を受け継いだときに初めて症状が出る、という遺伝のパターンです。この形では、1回の妊娠あたり子どもに影響が出る確率は理論上25%と計算されます。DPY19L2型の円頭精子症はこのパターンをとります。くわしくは常染色体潜性遺伝の解説や遺伝形式の解説をご覧ください。
次世代シーケンシング(NGS)や全エクソーム解析(WES)の普及によって、円頭精子症の主な原因遺伝子が特定されてきました。最も多いのが、セクション3で述べた核へのアンカーであるDPY19L2遺伝子で、報告によっては患者の3割から8割にこの遺伝子の欠失や変異が認められます[15]。このほか、ゴルジ体から先体への小胞輸送に関わるSPATA16やPICK1などの遺伝子も原因として知られています。
円頭精子症のもう一つの難しさは、透明帯との相互作用や通過の障害だけにとどまらない点にあります。卵子活性化に重要な精子由来因子にも異常を伴うことがあるからです。正常な受精では、精子が卵子と融合すると精子由来のPLCζ(ホスホリパーゼCゼータ)が卵子の中に放出され、周期的なカルシウムの波(カルシウムオシレーション)を起こして卵子の減数分裂を再開させます。これが卵子活性化です[16]。ところが円頭精子症の精子では、このPLCZ1がコードするPLCζの発現量や局在に異常を伴い、卵子活性化能が低下することがあります[16]。
その結果、たとえICSI(顕微授精)で精子を卵子の中に直接注入しても、卵子活性化のスイッチが入らず、受精障害が起こりやすいのです。実際、通常のICSIの受精率が70〜80%であるのに対し、円頭精子症に対する標準的なICSIの成績は受精率が低くとどまると報告されています[17]。
9. 検査と治療、そして遺伝カウンセリング
円頭精子症が疑われるとき、まず行われるのは精液検査での形態の評価です。精子頭部が円形で先体が見当たらないという特徴的な所見から診断に近づきます。そのうえで、原因となる遺伝子の変化を調べるために、男性不妊症の遺伝子検査(NGSパネル)などが検討されます。DPY19L2の大きな欠失のように、パネルの設計によっては検出方法に工夫が要る変化もあるため、どの検査で何が分かるのかを事前に整理しておくことが大切です。
生殖補助医療ではICSIが中心となり、卵子活性化障害が疑われる場合には人為的卵子活性化(AOA)の併用が検討されます。セクション8で述べたように、円頭精子症ではPLCζが不足して卵子活性化が起こりにくいため、ICSIで精子を注入した直後に、カルシウムイオノフォアなどの薬剤を卵子に作用させて、人の手でカルシウムのシグナルを起動させます[17]。欠けているPLCζの働きを迂回して、卵子を目覚めさせるわけです。文献では、AOAを併用したICSIによって円頭精子症の受精成績が改善した報告がありますが、エビデンスの質は高くなく、適応は個別に慎重に判断する必要があります[17]。
📘 用語解説:人為的卵子活性化(AOA)
Assisted Oocyte Activation の略で、ICSIの直後にカルシウムイオノフォアなどの薬剤を用いて、卵子の中のカルシウムシグナルを人工的に起こす手技です。精子側のPLCζが不足していて卵子がうまく目覚めないケースで、その働きを補う目的で行われます。すべての受精障害に有効なわけではなく、適応は慎重に判断されます。
一方で、忘れてはならない点もあります。円頭精子症の精子ではDNAの断片化や染色体の数の異常(異数性)の割合が高いという報告があり、これがART(生殖補助医療)の成績に影響する可能性が指摘されています[18]。AOAは卵子活性化の問題を迂回できても、こうしたDNAレベルの問題までは解決しません。現時点では、それが直ちに次の世代への遺伝的リスクの増加に直結すると確定しているわけではありませんが、適切な遺伝カウンセリングを行い、必要に応じて精子DNA断片化や染色体異常に関する評価を検討しながら治療方針を決めることが望ましいと考えられています[18]。
先体という細胞小器官の話は、こうして遺伝子診断・遺伝形式・遺伝カウンセリングという臨床の営みと分かちがたく結びついています。当院では、こうした検査の前後で臨床遺伝専門医が遺伝カウンセリングを行い、検査で何が分かり何が分からないのか、結果がご本人やご家族にとってどんな意味を持つのか、その先にどんな選択肢があるのかを、中立の立場で一緒に整理します。DPY19L2型のように常染色体潜性遺伝のパターンをとる場合は、ご夫婦の保因状況や次の妊娠での確率も含めて、時間に余裕をもって話し合うことが助けになります。
10. よくある誤解
誤解①「先体はただの酵素の袋」
これは古い理解です。先体の中身は、すぐ溶ける部分と、簡単には溶けない先体マトリックスという足場に分かれています。先体反応は一瞬ではなく、マトリックスが段階的にほどけていく連続的なプロセスであることが分かっています。
誤解②「先体反応は透明帯に着いてから起こる」
かつての定説でしたが、蛍光ライブイメージングの研究で覆りました。実際に受精する精子の多くは、透明帯に着く前、卵丘細胞層を通り抜けている最中にすでに先体反応を始めています。
誤解③「ICSIで注入すれば必ず受精する」
円頭精子症では、精子を卵子に直接注入してもPLCζの発現量や局在の異常により卵子活性化が不十分となり、受精障害が起こりやすいことがあります。だからこそAOA(人為的卵子活性化)の併用が検討されます。
誤解④「AOAですべて解決する」
AOAは卵子活性化の問題を迂回できますが、DNAの断片化や染色体の異数性まで解決するわけではありません。適切な遺伝カウンセリングと必要に応じたスクリーニングを組み合わせた管理が望ましいと考えられています。
よくある質問(FAQ)
🏥 男性不妊・先体の異常の遺伝子診断のご相談
円頭精子症など先体に関わる男性不妊の
遺伝子検査と遺伝カウンセリングは
臨床遺伝専門医が在籍するミネルバクリニックにご相談ください。
参考文献
- [1] Acrosome biogenesis: Revisiting old questions to yield new insights. Spermatogenesis. 2011. [PMC3271650]
- [2] Mechanism of Acrosome Biogenesis in Mammals. Front Cell Dev Biol. 2019. [PMC6759486]
- [3] Foster JA, Gerton GL. The Acrosomal Matrix. Adv Anat Embryol Cell Biol. 2016;220:15–33. doi:10.1007/978-3-319-30567-7_2. [PMC5112175]
- [4] Atg7 is required for acrosome biogenesis during spermatogenesis in mice. Cell Res. 2014. [PMC4085765]
- [5] Teratozoospermia: spotlight on the main genetic actors in the human. Hum Reprod Update. 2015. [Hum Reprod Update]
- [6] The role of the acrosomal matrix in fertilization. Int J Dev Biol. [Int J Dev Biol]
- [7] Function of the Sperm Acrosome. Fertilization. 2002:265–302. doi:10.1016/B978-012311629-1/50010-3. [DOI]
- [8] Fertilization: a sperm’s journey to and interaction with the oocyte. J Clin Invest. [J Clin Invest]
- [9] Progress of sperm IZUMO1 relocation during spontaneous acrosome reaction. Reproduction. 2014;147(2):231–240. doi:10.1530/REP-13-0193. [PubMed 24277869]
- [10] Most fertilizing mouse spermatozoa begin their acrosome reaction before contact with the zona pellucida during in vitro fertilization. Proc Natl Acad Sci U S A. 2011. [PMC3064341]
- [11] Sperm-Egg Fusion: A Molecular Enigma of Mammalian Reproduction. Int J Mol Sci. 2014. [Int J Mol Sci]
- [12] Effects of latrunculin A on the relocation of sperm IZUMO1 during gamete interaction in mouse. [PubMed 28833824]
- [13] Monitoring dimeric status of IZUMO1 during the acrosome reaction in living spermatozoon. [PMC6110575]
- [14] The Role of Sperm Proteins IZUMO1 and TMEM95 in Mammalian Fertilization: A Systematic Review. Int J Mol Sci. 2022. [Int J Mol Sci]
- [15] Crafa A, et al. Globozoospermia: A Case Report and Systematic Review of Literature. World J Mens Health. 2023;41(1):49–80. doi:10.5534/wjmh.220020. [PMC9826911]
- [16] Novel PLCZ1 compound heterozygous mutations indicate gene dosage effect involved in total fertilisation failure after ICSI. Reproduction. 2024. [PMC11466203]
- [17] Diagnosis and Treatment of Male Infertility-Related Fertilization Failure. [PMC7761017]
- [18] Analysis of Sperm Aneuploidies and DNA Fragmentation in Patients With Globozoospermia or With Abnormal Acrosomes. Urology. 2011;77(6):1343–1348. doi:10.1016/j.urology.2010.12.015. [DOI]






