

目次

📍 クイックナビゲーション
遺伝子検査の結果に「NMT2」という聞き慣れない名前が出てきた、あるいは、がんや心不全の新しい治療の話でこの言葉を見かけた——NMT2は一般にはまだ馴染みの薄い遺伝子名です。NMT2(エヌ・エム・ティー・ツー)は、細胞の中でタンパク質に「あぶらの目印」をつける酵素の設計図となる遺伝子です。この目印づけは、がん・心臓病・感染症という異なる病態との関係が研究されています。
この記事では、NMT2という遺伝子がどんな酵素をつくり、N-ミリストイル化とはどういうしくみなのかを土台から解説し、そのうえで、NMT2低発現を利用する「合成致死に似た」新しい治療の考え方や、心不全におけるNMT2の心筋保護作用について解説します。
- ➤ NMT2遺伝子がつくる酵素と「N-ミリストイル化」という目印づけのしくみ
- ➤ もう一つの兄弟遺伝子NMT1との、似ているようで異なる役割分担
- ➤ 血液がんでNMT2発現が低下する——その弱点を利用する治療戦略
- ➤ 心不全ではNMT2がむしろ「心臓を守るブレーキ」になること
- ➤ 開発中の飲み薬ゼレニルスタットと、動物モデルでのNMT2遺伝子導入という研究方向
🧬Q. NMT2遺伝子とは何ですか?
タンパク質にミリスチン酸という脂肪酸の目印をつける酵素(N-ミリストイル化転移酵素2)の設計図です。この目印は、多くのタンパク質の膜への移行や細胞内での局在・機能の調節に重要です。ヒトには兄弟遺伝子のNMT1もあります。
🩺Q. なぜ病気の治療で注目されるのですか?
多くの血液がんではNMT2の発現が大きく低下している例があり、残ったNMT1への依存性が高まります。そこをNMT阻害薬で狙うことで、正常細胞との感受性の差を利用する「合成致死に似た」治療戦略が研究されています。
🌸Q. がん以外にも関係しますか?
はい。動物モデルではNMT2の低下が心不全の悪化に関与することが示され、逆にNMT2を増やす遺伝子導入が心機能低下や病的リモデリングを抑えました。方向はがんとは正反対です。
NMT2とは——タンパク質に「あぶらの目印」をつける酵素
「N-ミリストイル化」というしくみ
NMT2は、正式にはN-ミリストイル化転移酵素2(グリシルペプチドN-テトラデカノイルトランスフェラーゼ2)という酵素をコードする遺伝子です[1]。この酵素がおこなうN-ミリストイル化(エヌ・ミリストイルか)とは、ミリスチン酸という炭素14個の脂肪酸を、標的となるタンパク質の先頭(N末端)のグリシンという部品にしっかり結びつける作業です。N末端グリシンについたこの目印は、原則として外れることのない「共有結合」で固定されます。
では、なぜ脂肪酸の目印が必要なのでしょうか。ポイントは「膜にくっつくための取っ手」になることです。あぶらの目印がつくと、そのタンパク質の膜への親和性が高まり、正しい細胞内局在や機能の調節に役立ちます。ただし、ミリストイル基だけでは安定した膜係留には不十分なことが多く、塩基性アミノ酸の集まり、別の脂質修飾、タンパク質間相互作用など「第2のシグナル」と協調して膜結合が制御されます。ヒトでは数百種類(プロテオームのおよそ2%)のタンパク質がこの修飾を受けると考えられています[11]。それだけ広く、細胞の土台を支えるしくみなのです。
N-ミリストイル化は、パルミトイル化やプレニル化と並ぶ「脂質による目印づけ」の一種です。似た目印でも、パルミトイル化は外れたりつき直したりできるのに対し、N末端グリシンへのN-ミリストイル化は原則として外れない点が特徴です。もう一つの脂質修飾であるプレニル化とあわせて、細胞は複数の「あぶらの取っ手」を使い分けています。
遺伝子はどこにあり、兄弟遺伝子とどう違うのか
ヒトのNMT2遺伝子は、10番染色体の短腕(10p13)に位置しています[1]。酵母のような単細胞の生き物はNMT遺伝子を1つしか持ちませんが、私たち哺乳類は遺伝子の重複によってNMT1とNMT2という2つの兄弟(アイソザイム)を持つようになりました。両者のアミノ酸配列は約77%が共通しており、酵素としての基本的な働きはよく似ています[1]。
ところが、似ているのに役割は同じではありません。マウスの実験では、NMT1をなくすと胎児のうちに死んでしまう(胎生致死)のに対し、NMT2はその穴を埋めて救うことができませんでした[1]。つまり、発生初期にはNMT1にNMT2では代替できない必須の役割があることを示します。一方で成体の組織では、NMT2は血管の内皮細胞、脳のある領域、脂肪組織など幅広く発現しており、日々の細胞の維持に深く関わっています。この「似ているのに代わりがきかない」という関係が、のちほど述べるがん治療の切り口につながっていきます。
はたらくしくみ——順番の決まった精密な反応
まず脂肪酸をつかみ、次に相手を選ぶ
NMT2の反応は、決まった順番で進む精密な手続きです。まず酵素は、運び役であるミリストイルCoA(ミリスチン酸と補酵素Aがつながったもの)の脂肪酸部分をつかみます。すると酵素の形がわずかに変わり、次の相手であるタンパク質を迎え入れるためのポケットが開きます。続いて、標的タンパク質の先頭にある特定の並び(一般に「グリシンで始まる特徴的な配列」)を見分けて結合します[3]。
この作業の前には、下ごしらえが必要です。生まれたばかりのタンパク質の先頭には、必ず「開始メチオニン」という部品がついています。まずメチオニンアミノペプチダーゼという別の酵素がこの先頭を切り落とし、2番目のグリシンを表に出します。そこへNMT2が働きかけ、ミリストイル基をグリシンに移し替えて、外れないアミド結合をつくり、副産物として補酵素Aを手放します[3]。このように、下ごしらえ役とNMT2が順番に働くことで反応が進みます。
図1:N-ミリストイル化が進む3つのステップ
① 下ごしらえ
先頭のメチオニンを切り、グリシンを表に出す
② 目印づけ
NMT2がミリスチン酸をグリシンに結合
③ 膜へ係留
目印を取っ手に細胞膜へくっつき働く
じつは「グリシン以外」にも目印をつける
長らくNMT2の仕事は「先頭のグリシンへの目印づけ」だけだと考えられてきました。ところが近年、NMT2は特定のタンパク質のリジンという別の部品にも脂肪酸をつけることがわかりました[4]。代表的な相手が、細胞膜のかたちや細胞内の物流を調整する小さなスイッチ役ARF6です。NMT2はARF6の先頭のグリシンだけでなく、隣のリジンにも目印をつけます[4]。
なぜこの二重の目印が大切かというと、ARF6のGTPaseサイクルに合わせて膜結合を調節するためです[4]。ARF6では、N末端グリシンのミリストイル化に加えてリジン3の可逆的なミリストイル化が起こり、NMT1/NMT2と脱アシル化酵素SIRT2の作用によって膜結合とGTPaseサイクルが連動して調節されます。NMT2が、細胞内の信号を「時間的・空間的に」精密に制御する高度な役割を担っていることがうかがえます。

翻訳とリボソーム——生まれる瞬間に目印がつく
細胞の中で起こるN-ミリストイル化の多くは、タンパク質がリボソームで作られている最中(翻訳時)に進みます。しかし、細胞質にたくさんあるNMT2が、次々と生まれる無数のタンパク質の中からどうやって正しい相手を見つけ、ちょうどよいタイミングで目印をつけるのかは、長らく謎でした。この疑問に、NMT1とNMT2を対象としたクライオ電子顕微鏡(凍らせた試料を高解像度で観察する技術)による構造解析が答えを出しつつあります[2][3]。
「NAC」という案内役が橋渡しをする
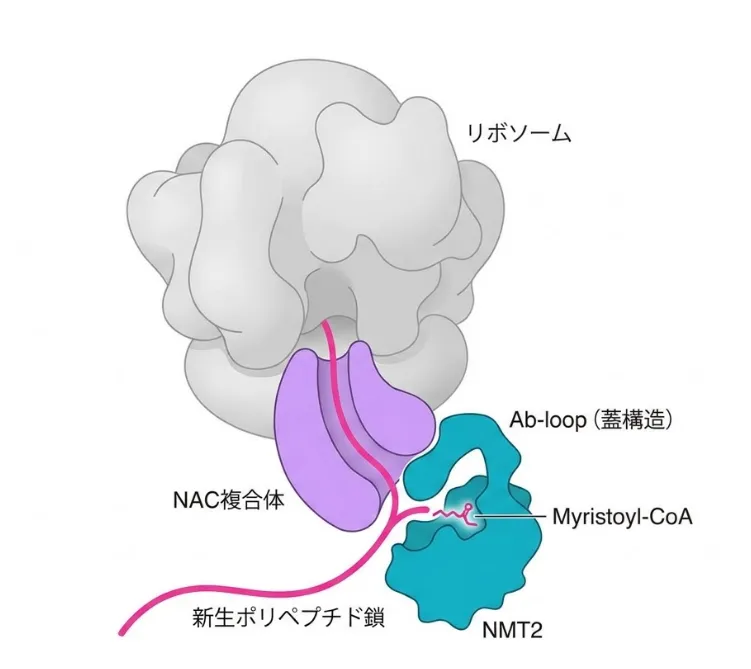
図:翻訳の「その場」で目印がつくしくみ。リボソームの出口トンネルから顔を出した新生ポリペプチド鎖に対し、NAC複合体が橋渡し役となってNMT2を呼び寄せる。NMT2はMyristoyl-CoAを保持し、Ab-loop(蓋構造)を使って生まれたてのタンパク質の先頭にミリスチン酸の目印をつける。単独ではリボソームにうまく結合できないNMT2も、NACがいることで結合が大きく強まる。
できたてのタンパク質は、リボソームの「出口トンネル」から顔を出します。そこで待ち構えているのがNAC(新生ポリペプチド結合複合体)という案内役です。研究チームは、リボソーム・NMT2・NACの3者が組み合わさった複合体をクライオ電子顕微鏡で解析し、NACがNMT2をリボソームに呼び寄せる橋渡し役になっていることを明らかにしました[3]。NMT2は単独ではリボソームにうまく結合できませんが、NACがいると結合が大きく強まります。
さらに、NMT2とNACは協力して、出口トンネルから続く「延長された通り道」をつくり、生まれたてのタンパク質を周囲から守りながら、NMT2の反応の場へと導きます[3]。この巨大な3者複合体は、リボソーム由来のRNAが留め具(クランプ)のように働いて安定化され、NMT2が翻訳の進み具合に合わせて先頭を正確につかまえられるよう向きが整えられています[3]。
興味深いのは、NMT1の構造解析で、下ごしらえ役のメチオニン切断酵素とNMT1が同時ではなく、順番に入れ替わりながら働くことが示された点です[2]。まずメチオニン切断酵素が働いて離れ、次にNMTが結合する——このリレー方式で逐次的な加工が実現します。なお、2026年に報告されたNMT1の構造解析では、目印づけを終えたあともNMT1が伸長中の新生鎖と結びつき続けることが示唆され、NACと協調したシャペロン様機能の可能性が指摘されています[2]。
NMT1とNMT2は、いざというとき別々に動く
2つの兄弟酵素は、酵素の中心部分(触媒モジュール)はよく似ていますが、先頭の非構造領域には大きな違いがあります。この違いは、細胞の中での居場所の調整や、特定の切断による働きの切り替えの土台になります。たとえばアポトーシス(計画的な細胞死)が起こるとき、NMT1とNMT2はそれぞれ異なる場所で切断され、別々の動きを示します。細胞は、こうした兄弟間の違いを使い分けているのです。
もう一つ重要なのが、両者の間の「連絡」です。がん細胞でNMT1を減らすと、埋め合わせるようにNMT2が増えることが報告されています[11]。逆にNMT2を減らしてもNMT1は変わりません。細胞が、目印づけの総量を一定以上に保とうとする厳密なしくみを持っていることを示しています。この「埋め合わせる力(冗長性)」は、NMT阻害に対する正常細胞と一部のがん細胞の感受性差を説明する要因の一つと考えられています。
がんの治療標的——NMT2低発現を弱点として利用する
血液がんの一部で、NMT2発現が大きく低下する
大規模ながんデータベースを使った解析から、NMT2の発現量はNMT1に比べて非常に大きく変動し、とくに血液がん(リンパ腫や白血病)で目立って低下していることがわかりました[5]。びまん性大細胞型B細胞リンパ腫(DLBCL)やバーキットリンパ腫ではNMT2タンパク質が低い例が確認され、乳がん・大腸がん・肺がんなどでも正常組織と比べてNMT2発現が低下する腫瘍が報告されています[5][11]。
この消失は、遺伝子そのものの欠けや変異だけでなく、主にエピジェネティックな抑制によって起きています。具体的には、NMT2遺伝子のスイッチ領域にあるDNAメチル化が過剰になることが、NMT2低下の直接の原因の一つとされています[5]。乳がんの解析でも、ある型ではメチル化の亢進によってNMT2が失われることが示されています。
さらに、NMT2が消えたがん細胞に、あえてNMT2を戻すと、細胞の生存能力が下がるという結果です[5]。これは、NMT2再発現が少なくとも一部のNMT2欠損がん細胞に不利に働くことを示しています。ただし、乳がんの大規模コホートでは、NMT2は多くの腫瘍で検出されなかった一方、NMT2が検出された群のほうが若年、高い組織学的グレード、低いホルモン受容体発現、高いKi67、p53陽性、全生存期間不良と関連しており、NMT2の腫瘍生物学的な意味は単純な「がん抑制遺伝子」とは言い切れません[11]。
「合成致死」という狙い撃ちの発想
2つの部品のうちどちらか片方が欠けても平気だが、両方同時に失われると細胞が死ぬという関係を「合成致死」といいます。正常細胞はNMT1とNMT2の両方を持つのに対し、NMT2が低下・欠損したがん細胞ではNMT1への依存性が高まることがあります。この差を利用してNMT阻害薬への感受性を高める考え方が、「合成致死に似た」治療戦略として研究されています。
正常な細胞は、NMT1とNMT2の両方が「埋め合わせる力(バッファー)」となって、生命維持に必要な目印づけを支えています[5]。しかしNMT2を失ったがん細胞は、この余裕がありません。ここに両方のNMTを止める薬を効かせると、複数のNMT基質の局在やシグナル伝達、ミトコンドリア機能が障害され、がん細胞の生存が損なわれます。一方、正常細胞では2つのNMTが存在することなどから、一部のNMT2低発現がん細胞との間に薬剤感受性の差が生じる可能性があります。前臨床研究では、この差が「治療の窓(安全域)」につながることが示唆されています[5]。
がん細胞が死ぬしくみは一つではありません。リンパ腫では、初期のB細胞受容体シグナルや、その中心にあるBTK(ブルトン型チロシンキナーゼ)の働きが強く損なわれます[13]。さらに、NMT1を遺伝子的に欠損させた細胞の詳しい解析からは、予想外にもシグナル系よりミトコンドリア関連のタンパク質が大きく減ることが判明しました[5]。その多くは呼吸鎖複合体Iに属しており、目印づけを止めることでがん細胞のエネルギー生産(酸化的リン酸化)が機能不全に陥り、代謝の弱点を突かれることが示されています[5]。
開発中の飲み薬「ゼレニルスタット」
この合成致死に似た選択性の考え方を臨床へ応用しようとしているのが、ゼレニルスタット(Zelenirstat/開発コードPCLX-001)という飲み薬です。これはNMT1とNMT2の両方を強く抑える、経口の低分子NMT阻害薬として開発されました[6]。試験管内では、血液がんの細胞がこの薬に対して非常に敏感であることが示されています[6]。
再発・難治のB細胞リンパ腫や進行した固形がんの患者さんを対象とした初めてのヒト臨床試験(第I相)では、29人が登録され、24人が用量制限毒性の評価対象となりました[6]。1日20mgから始めて210mgまでは用量を制限するような毒性はみられず、280mgのグループで消化器系の毒性が確認されました。この結果から、推奨される用量は1日210mgと判断されています[6]。主な副作用は軽度から中等度の吐き気・下痢・倦怠感などで、休薬や減量で回復する範囲でした[6]。
図2:ゼレニルスタット第I相試験の主な内容
対象と登録
再発・難治のB細胞リンパ腫と進行固形がん。計29人が登録。
用量
20mgから開始。280mgで消化器毒性。推奨用量は1日210mg。
安全性
主な副作用は吐き気・下痢・倦怠感。休薬・減量で回復する範囲。
※これは初期段階の試験の結果です。承認された治療ではありません。
また、どの患者さんがこの薬から恩恵を受けやすいかを見分けるため、1200種類のがん細胞株の解析から「ミリストイル化阻害感受性シグネチャー(54個の遺伝子群)」というスコアが同定されています[5]。このスコアは血液がんで特に高く、NMT2の低発現とあわせて、将来のコンパニオン診断(治療の効きやすさを見分ける検査)につながる候補バイオマーカーとして研究されています。ただし、患者さんでの予測性能はまだ臨床的に確立していません[5]。現在、急性骨髄性白血病(AML)を対象とした臨床試験も進められています[12]。
心不全と心臓——ここではNMT2は「守り手」
がんではNMT活性を抑える治療戦略が研究されていますが、心臓ではNMT2を増やす方向が検討されています。高血圧や心臓への負担が続くと、心筋細胞が大きくなり(肥大)、線維化などの病的リモデリングが進み、心不全へ進展することがあります。この過程で、NMT2は心臓を守るブレーキ役として働いていることがわかってきました。
心不全では、NMT2だけが特異的に減る
心臓に強い圧力負荷をかけた心不全モデルのマウスや、ヒトの心不全(拡張型心筋症など)の心筋を調べた研究で、重要な変化が観察されました。健康な心臓と比べて、心不全状態の心筋ではNMT2が大きく減っていたのです[8]。しかも、兄弟であるNMT1には大きな変化がありませんでした[9]。心臓のストレス応答において、NMT2がNMT1とは別の、独自の心筋保護の役割を持っていることを示す所見です。
その守りのしくみの中心にあるのが、MARCKS(マークス)というタンパク質です[8]。正常な状態では、NMT2がMARCKSに目印をつけて細胞膜へ適切につなぎとめ、そのことが下流のCaMKII–HDAC4という信号の過剰な活性化を抑えて、病的な肥大のスイッチが入るのを防いでいます[8]。NMT2が減ってMARCKSが膜に留まれなくなると、このブレーキが外れてしまうのです[8]。
図3:心臓におけるNMT2の「ブレーキ」のしくみ
🟢 NMT2が十分にある心臓
MARCKSが膜に係留され、CaMKII–HDAC4の暴走を抑制。肥大のスイッチが入りにくい。
🔴 NMT2が減った心臓
MARCKSが膜から離れ、ブレーキが外れる。肥大・線維化が進み、心不全が悪化。
遺伝子治療で「増やす」という新しい方向
NMT2が心臓のブレーキだとわかったことは、新たな治療標的としての可能性を示します。研究チームは、圧力負荷をかけたマウスに対して、アデノ随伴ウイルス9型(AAV9)というベクターを使って心筋にNMT2を増やす遺伝子治療を行いました。その結果、心機能低下と心筋の肥大・線維化などのリモデリングが改善し、心不全の進行が抑えられることが示されました[8]。逆に、AAV9でNMT2を減らすと、心機能の悪化やリモデリングが悪化しました[8]。
NMT2を標的とする心不全治療は、現時点では前臨床研究の段階です。AAVを用いたNMT2遺伝子導入は、マウスモデルで心機能低下や病的リモデリングを抑えたことから、病態そのものに作用する治療戦略の候補として研究されています[8][9]。がんではNMT経路を「抑える」、心臓ではNMT2を「増やす」——病態によって正反対の治療戦略が検討されている点は、この遺伝子を理解するうえで病態ごとにNMT2の機能を区別して評価する必要があります。
感染症・そのほかの役割と、活性の調節
ウイルスや寄生虫が「借りる」しくみ
多くの病原体は、自分のタンパク質に目印をつけるために宿主のNMTを借用します。たとえばヒト免疫不全ウイルス1型(HIV-1)では、GagやNefなどのウイルスタンパク質のN-ミリストイル化に宿主のNMTが関与し、膜局在やウイルス機能に重要であることが示されています[14]。そのため、NMTを狙う薬は、抗ウイルス薬としての可能性も検討されています。マラリア原虫や睡眠病の原因となる寄生虫でもN-ミリストイル化は不可欠で、NMTは有望な創薬標的として研究されています[4]。
染色体の転座で分断された例
発生や内分泌との関わりを示す臨床的な手がかりもあります。8番染色体と10番染色体のあいだの均衡型相互転座を持ち、性腺機能低下(精巣の低形成)がみられた男性の解析で、この転座の切断点がNMT2遺伝子を分断していたことが特定されました[1]。NMT2が、ヒトの正常な発生や内分泌の一部に関わっている可能性を示す例です。
活性の「音量つまみ」——ポリリン酸による調節
NMT2の活性が、細胞の状態に応じてどう調節されているかは長く不明でした。最近の生化学的な研究では、無機ポリリン酸(リン酸が数十〜数百つながった古くからある物質)が、NMT2の活性を直接抑えるという調節のしくみが報告されています[10]。この抑制は、NMT2の中にあるリジンに富んだ領域への静電的な結合を介して起こると考えられ、競合するペプチドを加えると活性がもとに戻る、可逆的な調節だとされています[10]。
この知見は、N-ミリストイル化が「一度つけたら終わりの固定タグ」にとどまらず、細胞内の状態に応じて動的に微調整されうるシステムだという可能性です[10]。ただし、この知見はまだ新しく、今後の追試と検証が待たれる段階です。現時点では、細胞レベルでの意義の全体像について明確なデータが十分にそろっているとは言えません。
NMT2は、タンパク質に脂肪酸の目印をつけて膜へ導く土台の酵素でありながら、がんでは治療標的、心臓では守り手という二つの顔を持ちます。翻訳のその場で働く精密な分子機械であることも、最新の構造解析で明らかになりつつあります。
よくある質問(FAQ)
🏥 遺伝子検査の結果の意味を、専門医と一緒に整理しませんか?
遺伝子や遺伝性疾患に関するご相談は、臨床遺伝専門医が運営するミネルバクリニックへ。遺伝子検査の設計から結果の解釈、遺伝カウンセリングまで、正確な診断に基づいて今後の対応を選べるよう、終始責任をもって支援します。
🏥 ミネルバクリニックの特徴
臨床遺伝専門医が運営する、稀有な医療機関です
✓ 遺伝子検査の設計・結果説明・遺伝カウンセリングまで一貫対応
✓ 必要な検査をターゲット法で精度よく行うことを重視
✓ 生涯にかかわる情報だからこそ、スピードより「正確性」を最優先
「患者のための医療を実現することを貫いています」
関連記事
参考文献
- [1] N-MYRISTOYLTRANSFERASE 2; NMT2 (Entry *603801). OMIM. [OMIM 603801]
- [2] Denk T, Monassa P, Musial J, et al. Structural basis of co-translational N-myristoylation in humans. Nat Commun. 2026;17:1191. doi:10.1038/s41467-025-67962-4. [PMC12858966]
- [3] Zdancewicz S, Maldosevic E, Malezyna K, Jomaa A. NAC couples protein synthesis with nascent polypeptide myristoylation on the ribosome. EMBO J. 2025;44(22):6320–6342. doi:10.1038/s44318-025-00548-4. [PMC12623983]
- [4] Kosciuk T, Price IR, Zhang X, et al. NMT1 and NMT2 are lysine myristoyltransferases regulating the ARF6 GTPase cycle. Nat Commun. 2020;11:1067. doi:10.1038/s41467-020-14893-x. [PMC7044312]
- [5] Beauchamp E, Gamma JM, Cromwell CR, et al. Multiomics analysis identifies oxidative phosphorylation as a cancer vulnerability arising from myristoylation inhibition. J Transl Med. 2024;22:431. doi:10.1186/s12967-024-05150-6. [PMC11075276]
- [6] Sangha R, Jamal R, Spratlin J, et al. A first-in-human phase I trial of daily oral zelenirstat, a N-myristoyltransferase inhibitor, in patients with advanced solid tumors and relapsed/refractory B-cell lymphomas. Invest New Drugs. 2024;42:386–393. doi:10.1007/s10637-024-01448-w. [PMC11327210]
- [7] Sangha R, Davies NM, Namdar A, et al. Novel, First-in-Human, Oral PCLX-001 Treatment in a Patient with Relapsed Diffuse Large B-Cell Lymphoma. Curr Oncol. 2022;29(3):1939–1946. doi:10.3390/curroncol29030158. [PMC8947478]
- [8] Tomita Y, Anzai F, Misaka T, et al. Targeting N-Myristoylation Through NMT2 Prevents Cardiac Hypertrophy and Heart Failure. JACC Basic Transl Sci. 2023;8(10):1263–1282. doi:10.1016/j.jacbts.2023.06.006. [PubMed 38094695]
- [9] Keepers BP, Jensen BC. On Your MARCKS…Get Set…Go: The Race to Explore Myristoylation in HF Is Underway. JACC Basic Transl Sci. 2023;8(10):1283–1284. doi:10.1016/j.jacbts.2023.08.007. [PMC10714165]
- [10] Martins I, Bailey K, Ge A, et al. N-Myristoyltransferase 2 Is Regulated by Polyphosphate-Driven Lysine Interactions. Biomolecules. 2026;16(8):1096. doi:10.3390/biom16081096. [MDPI Biomolecules]
- [11] Mackey JR, Lai J, Chauhan U, et al. N-myristoyltransferase proteins in breast cancer: prognostic relevance and validation as a new drug target. Breast Cancer Res Treat. 2021;186:79–87. doi:10.1007/s10549-020-06037-y. [PMC7940342]
- [12] Oral n-myristoyltransferase inhibitor zelenirstat for adults with relapsed/refractory acute myeloid leukemia (AML): a phase 1 trial in progress. Blood. 2025;146(Suppl 1):6959. doi:10.1182/blood-2025-6959. [ASH Blood]
- [13] Beauchamp E, Yap MC, Iyer A, et al. Targeting N-myristoylation for therapy of B-cell lymphomas. Nat Commun. 2020;11:5348. doi:10.1038/s41467-020-18998-1. [PMC7582192]
- [14] Hill BT, Skowronski J. Human N-myristoyltransferases form stable complexes with lentiviral Nef and other viral and cellular substrate proteins. J Virol. 2005;79(2):1133–1141. doi:10.1128/JVI.79.2.1133-1141.2005. [PMC538564]






