

目次
開始コドンとは、mRNAの上で「ここからタンパク質をつくり始める」と示す3つの塩基の並びのことで、ふつうはAUGです。AUGはアミノ酸のメチオニンを指定するので、できたばかりのタンパク質の先頭はメチオニンになります。DNAの配列で書くとATGです。この記事では、終止コドン(UAA・UAG・UGA)との違いと覚え方、リボソームが開始コドンを見つけるしくみ、原核生物との違い、そして遺伝子検査の結果に出てくる「開始コドンの変異」の読み方までを解説します。
⏱️ 30秒でわかる要約
🧬 Q. 開始コドンとは?何を指定する?
タンパク質の合成(翻訳)を始める合図になるコドンで、ふつうはAUGです。AUGはメチオニンを指定し、標準の遺伝暗号ではメチオニンを指定するコドンはAUGだけです。
🚦 Q. 終止コドンとの違いは?覚え方は?
開始コドンはAUGの1つで、アミノ酸(メチオニン)を指定します。終止コドンはUAA・UAG・UGAの3つで、どのアミノ酸も指定せず翻訳を終わらせます。覚え方は「8月(AUG)から始まる」「うわー(UAA)・うあぐ(UAG)・うがー(UGA)で終わる」。
🔤 Q. ATGとAUG、どっちが正しい?
どちらも同じ開始コドンです。mRNA(RNA)ではT(チミン)の代わりにU(ウラシル)を使うのでmRNAではAUG、DNAではATGと書きます。
開始コドンとは?AUGがメチオニンを指定する「翻訳の始まりの合図」
開始コドンは、mRNA(メッセンジャーRNA)の上で、タンパク質合成(翻訳)が始まる位置を示すコドンです。コドンは塩基3つの組で、1つのコドンが1つのアミノ酸、または「翻訳の終わり」を指定します。
ヒトを含むほとんどの生物で、開始コドンはAUGです。標準の遺伝暗号では、AUGはメチオニンを指定する唯一のコドンで、終止コドンはUAA・UAG・UGAの3つです[1]。開始コドンのAUGから3塩基ずつ区切って読む位置(読み枠)が決まり、そこから終止コドンまでがタンパク質に翻訳されます。
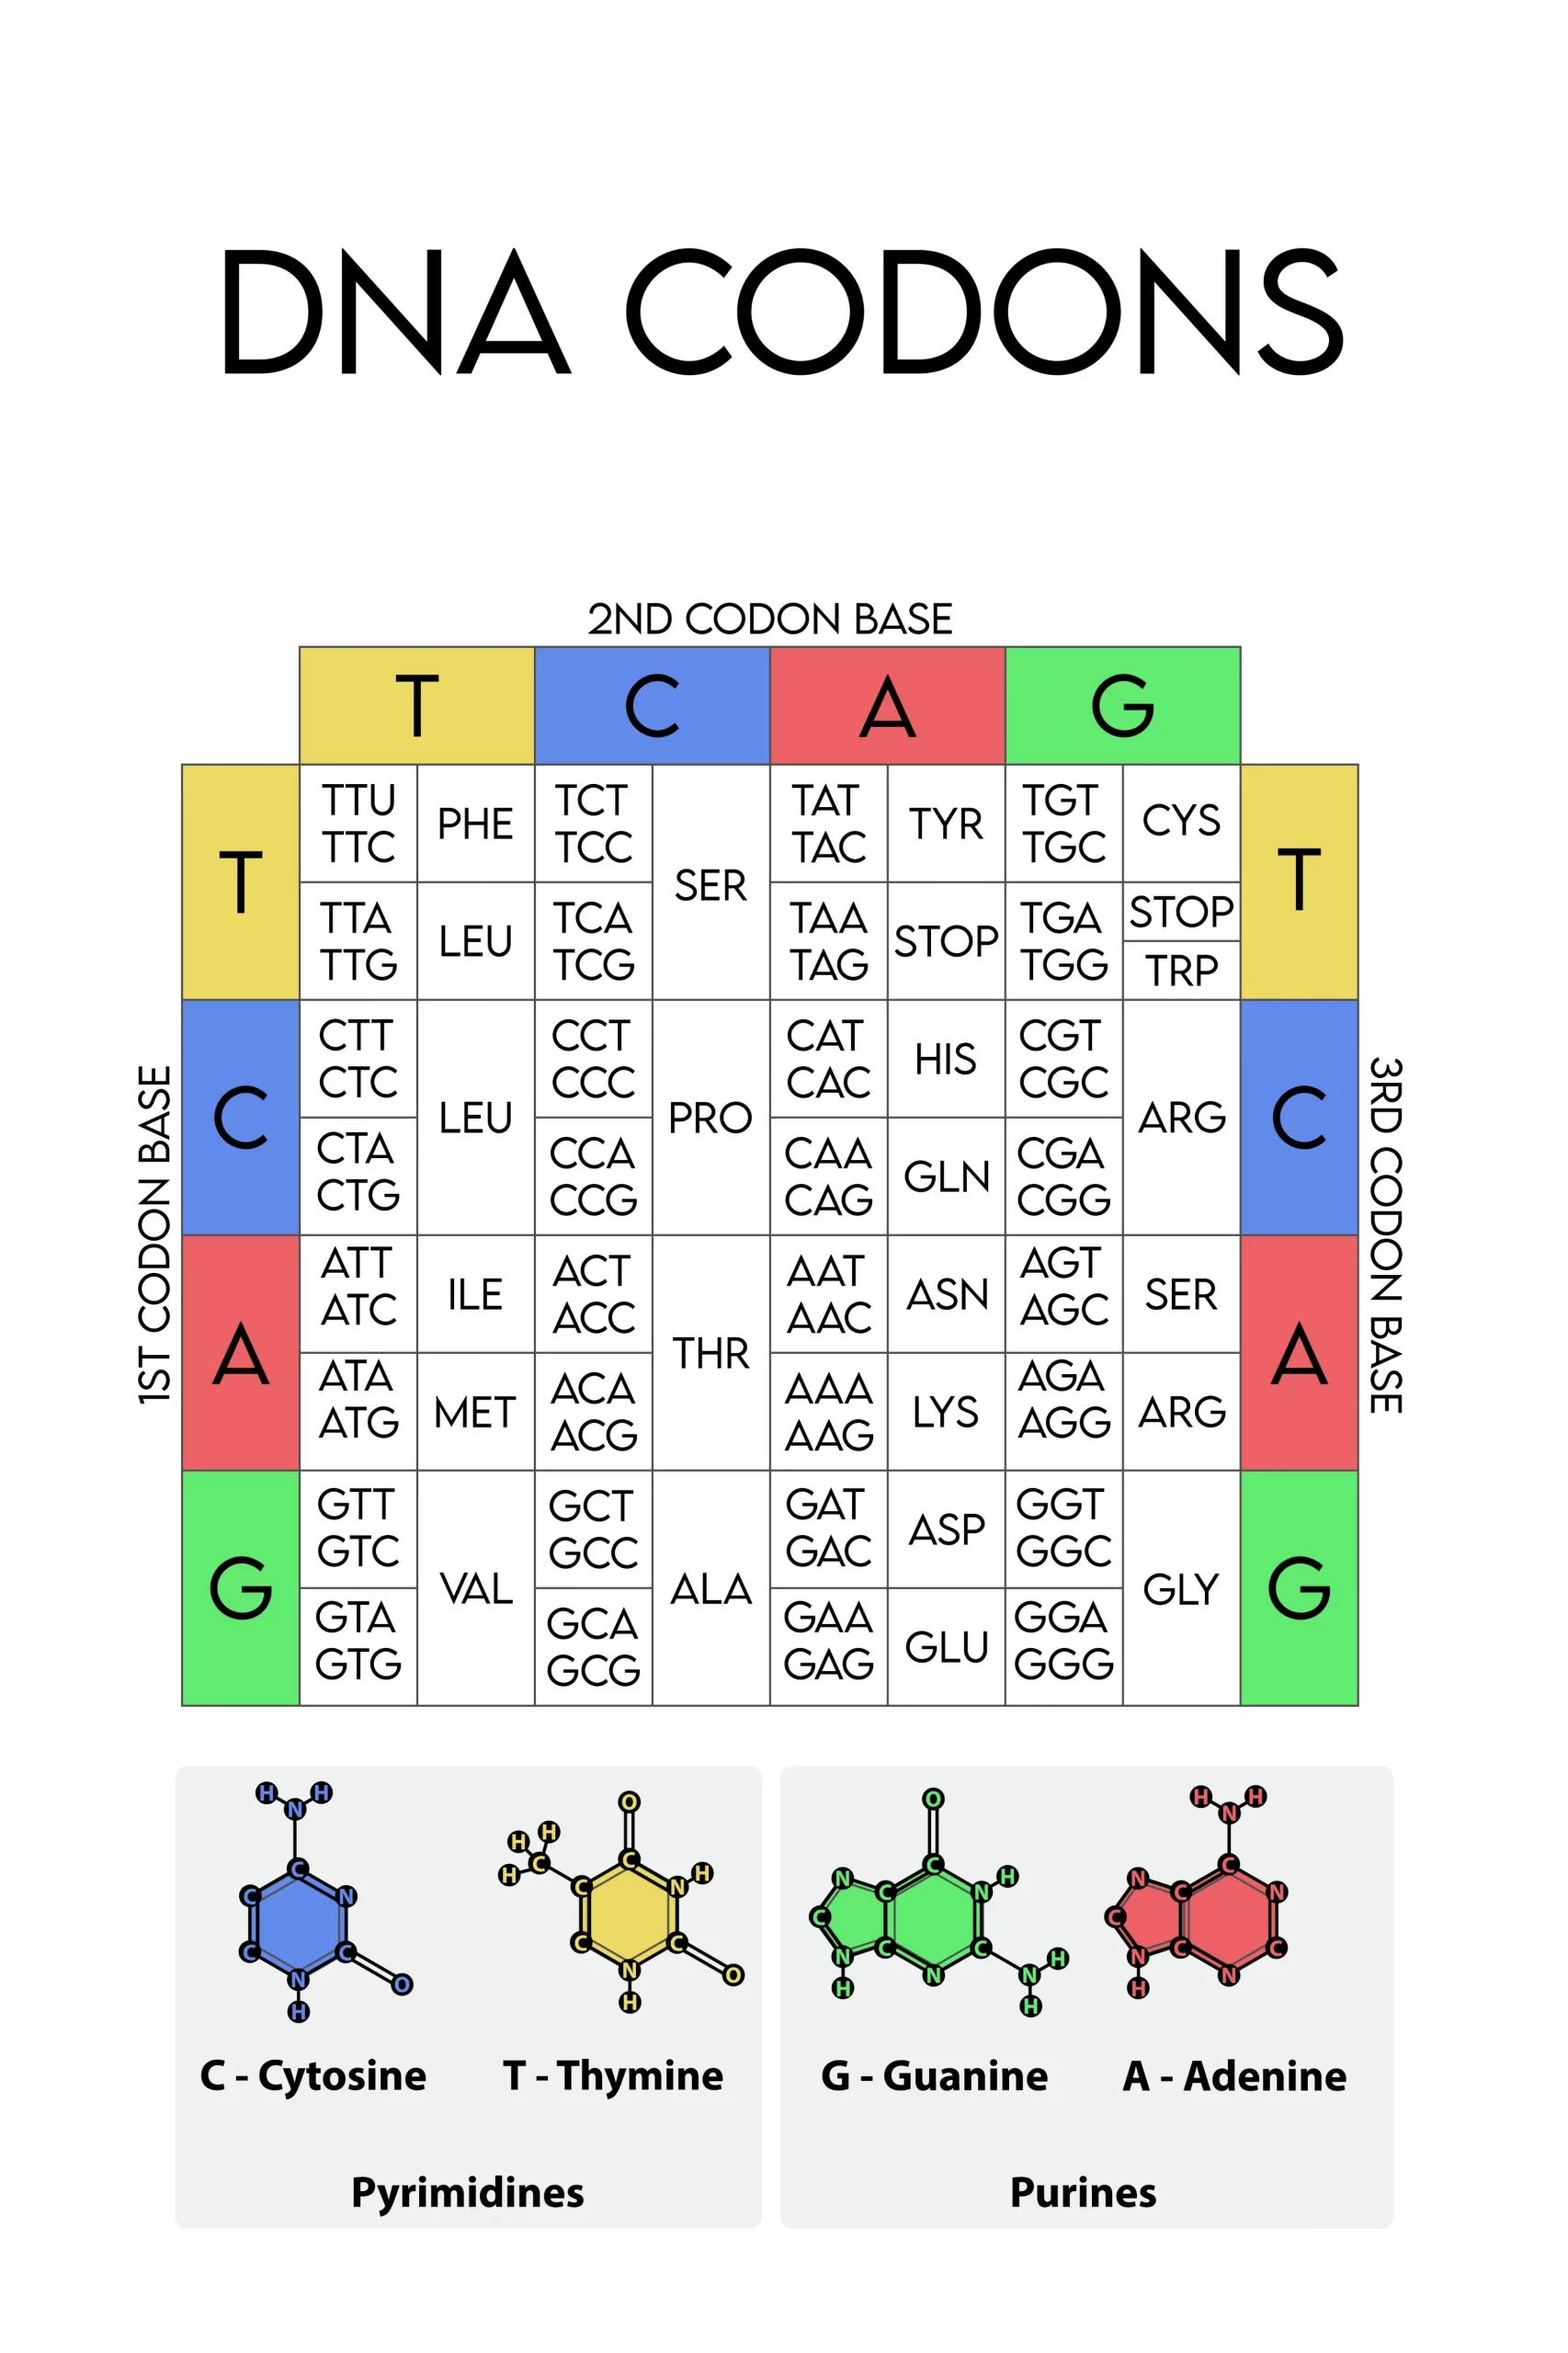
開始コドンと終止コドンの違い・覚え方
開始コドンと終止コドンは、どちらも翻訳の「区切り」を示しますが、はたらきが違います。いちばん大きな違いは、開始コドンはアミノ酸(メチオニン)を指定するのに対し、終止コドンはどのアミノ酸も指定しないことです。
🚦 開始コドンと終止コドンの比較
| 項目 | 開始コドン | 終止コドン |
|---|---|---|
| mRNAでの配列 | AUG | UAA・UAG・UGA |
| DNAでの書き方 | ATG | TAA・TAG・TGA |
| 数(標準の遺伝暗号) | 1つ | 3つ |
| アミノ酸 | メチオニンを指定する(原核生物ではホルミルメチオニンとして入る) | 指定しない |
| 覚え方 | 8月(AUG)から始まる | うわー(UAA)・うあぐ(UAG)・うがー(UGA)で終わる |
出典:NCBI The Genetic Codes(標準遺伝暗号表)[1]。終止コドンが終わらせるしくみは終止コドン(ストップコドン)とはで詳しく解説しています。
なお、AUGは翻訳の最初だけでなく、タンパク質の途中にあるメチオニンも指定します。翻訳の最初のAUGを読みとるのは、開始専用のtRNA(真核生物ではMet-tRNAi)です[3][6]。
DNAではATG、鋳型鎖ではCAT
RNAはT(チミン)の代わりにU(ウラシル)を使うので、mRNAのAUGはDNAの配列ではATGと書きます。遺伝子の配列を書くときはふつう、mRNAと同じ並びになるほうのDNA鎖(コード鎖)で書くので、遺伝子の配列表や検査の報告書ではATGとして出てきます。mRNAをつくるときに読まれるほうの鎖(鋳型鎖・アンチセンス鎖)では、ATGと向かい合う配列は5’→3’の向きでCATになります。
AUG以外の開始コドンもある
開始コドンはほとんどがAUGですが、例外もあります。標準の遺伝暗号表でも、UUGとCUGが開始コドンになりうると記載されています[1]。真核生物では、AUG以外のコドン(CUGなど)から翻訳が始まる例が、これまで考えられていたより多いことがリボソームの位置を調べる方法でわかってきており、発生やストレスのときのタンパク質づくりの調節にかかわること、がんや神経変性疾患との関係も報告されています[7]。
また、ヒトのミトコンドリアゲノムは核の遺伝子と少し違う遺伝暗号を使っており、AUGのほかにAUA・AUUも開始コドンとして使われます[1]。
開始コドンはどうやって認識されるのですか
真核生物では、リボソームの小さいほうの部品(40Sサブユニット)が、mRNAの先頭(5’末端)側から3塩基ずつ順に読み進め(スキャニング)、AUGを探します。これをスキャニング機構といいます[3]。
模式図。出典:Hinnebusch(Annu Rev Biochem, 2014)[3]をもとに作成。
① 40Sサブユニットには、eIF2というタンパク質がGTPと開始用のtRNA(メチオニンを運ぶMet-tRNAi)と組んだ複合体のほか、eIF1・eIF1A・eIF3・eIF5などの翻訳開始因子が集まります。② この複合体がmRNAの先頭に結合し、AUGを探して読み進めます。③ AUGにたどり着くと、開始用tRNAのアンチコドンがAUGと塩基対をつくり、eIF2-GDPが離れます。④ そこに大きいほうの部品(60Sサブユニット)が合体して80Sリボソームとなり、翻訳が始まります[3]。eIF2のはたらきがストレスで調節されるしくみはeIF2αキナーゼと統合的ストレス応答で解説しています。
「最初のAUG」とは限らない:コザック配列
リボソームが選ぶのは、原則として先頭から見て最初のAUGですが、AUGのまわりの配列によって選ばれやすさが変わります。脊椎動物の699のmRNAを調べた研究では、翻訳開始のまわりの共通配列は(GCC)GCCA/GCCATGGで、とくにAUGの3つ上流(−3の位置)がプリン(AまたはG)であることが最もよく保たれており、97%のmRNAでプリンでした[2]。この配列をコザック配列といいます。
AUGより前の部分は5’非翻訳領域(5’UTR)と呼ばれ、タンパク質にはなりませんが、その長さや構造、途中にあるAUG(上流AUG)が翻訳の効率に影響します。同じ研究では、上流AUGを持つmRNAは10%未満でした[2]。
💡 用語解説:アンチコドン
tRNAにある3つの塩基の並びで、mRNAのコドンと向かい合って塩基対をつくります。開始用tRNAのアンチコドンがAUGと対合することで、リボソームは「ここが開始コドンだ」と決めます[3]。コドンとアンチコドンの関係はコドンの解説ページでも説明しています。
転写開始点と開始コドンの違い
転写開始点と開始コドンは、名前は似ていますが、働く段階も、ある場所も違います。転写開始点はDNAの上で転写(DNAからmRNAをつくること)が始まる位置、開始コドンはmRNAの上で翻訳(mRNAからタンパク質をつくること)が始まる位置です。
転写開始点から開始コドンまでのあいだは、mRNAにはなるもののタンパク質にはならない5’非翻訳領域です。つまり、mRNAの先頭=転写開始点、タンパク質の先頭=開始コドンで、2つは同じ位置ではありません。この流れ全体はセントラルドグマとして整理されています。
🗺️ プロモーター・転写開始点・開始コドンの違い
| 用語 | ある場所 | かかわる段階 | はたらき |
|---|---|---|---|
| プロモーター | DNA(転写開始点の上流) | 転写 | RNAポリメラーゼや転写因子が結合し、転写を始めさせる領域 |
| 転写開始点 | DNA | 転写 | mRNAの1番目の塩基になる位置 |
| 開始コドン | mRNA(DNAではATG) | 翻訳 | タンパク質の1番目のアミノ酸(メチオニン)を指定する位置 |
開始コドンとプロモーターの違い
プロモーターはDNAの上にある「転写のスイッチ」にあたる領域で、RNAポリメラーゼや転写因子が結合して、遺伝子をmRNAに写しとる作業を始めさせます。プロモーター自体はふつうmRNAには写しとられません。
これに対して開始コドンは、写しとられたmRNAの中にある「翻訳のスタート地点」です。順番でいえば、プロモーター(転写のスイッチ)→ 転写開始点(mRNAの先頭)→ 5’非翻訳領域 → 開始コドン(タンパク質の先頭)と並びます。プロモーターは「どれだけmRNAをつくるか」、開始コドンとそのまわりの配列は「mRNAのどこから、どれだけタンパク質をつくるか」にかかわります。
開始コドン(通常はAUG)で指示されるメチオニンの除去
開始コドンのおかげで、できたばかりのタンパク質の先頭(N末端)はメチオニンになります。けれども、完成したタンパク質の先頭がいつもメチオニンとは限りません。翻訳のあとで先頭のメチオニンが外されることがあり、これをN末端メチオニン除去(NME)といいます。NMEは細菌や下等な真核生物では生きるのに欠かせないしくみで、タンパク質の寿命(分解されるまでの時間)の調節にもかかわることがわかってきています[8]。
大腸菌では、最初に入るのはホルミル基がついたメチオニン(ホルミルメチオニン)で、多くの場合、翻訳のあとでホルミル基とメチオニンの両方が外されます[6]。このように、翻訳のあとでタンパク質に加わる変化は翻訳後修飾の一つとして扱われます。
開始コドンがメチオニンな理由とは?
結論から言うと、答えは2段階あります。しくみとしての答えは「開始専用のtRNAがメチオニンを運ぶから」です。一方で、進化の中でなぜメチオニンに決まったのかには、決定的な答えがありません。そして意外なことに、実験ではメチオニン以外のアミノ酸からでも翻訳を始められることが示されています。
なぜ開始コドンはメチオニンなのか/ほかのアミノ酸ではダメなのか
① 開始専用のtRNAが、メチオニンを運ぶ
翻訳を始めるときは、タンパク質の途中のメチオニンを運ぶtRNAとは別の、開始専用のtRNA(開始tRNA)が使われます。真核生物ではMet-tRNAiがeIF2と組んでリボソームに運ばれ[3]、細菌ではホルミル基の付いたfMet-tRNAがリボソームのP部位に直接結合します[6]。開始コドンを読むのがこの開始tRNAなので、先頭にはメチオニンが入ります。
細菌では、AUGとは1文字違いのGUGやUUGから始まるときも、読むのは同じ開始tRNA(fMet-tRNA)で、最初に入るのはホルミルメチオニンです[6]。真核生物でも、AUG以外のコドンから始まる翻訳の多くはMet-tRNAiを使ってメチオニンから始まります。ただし例外もあり、CUGからロイシン、GUGからバリンで始まる例も報告されています[7]。
② ほかのアミノ酸ではダメなのか → 実験ではダメではない
開始tRNAのアンチコドン(コドンを読む3文字)を変えると、メチオニン以外のアミノ酸から翻訳を始められることが実験で示されています。大腸菌では、開始tRNAのアンチコドンをCAUからCUAに変えると、本来は終止コドンのUAGから翻訳が始まり、入ったのはメチオニンではなくグルタミンだと考えられました。生きた大腸菌の中でも、UAGからの開始はAUGの60〜70%の効率でした[11]。哺乳類の培養細胞でも、アンチコドンを変えた開始tRNAで、GUCからバリンで翻訳が始まりました。ただし、CAGからグルタミンで始める開始はごくわずかしか起こりませんでした[12]。
🧪 メチオニン以外から翻訳を始めた実験
実験のために遺伝子と開始tRNAを人工的に変えた結果で、ふつうの細胞の中で起きていることではありません。
つまり、メチオニンでなければ化学的に翻訳を始められない、というわけではありません。どのアミノ酸が先頭に入るかは、主に「開始tRNAがどのコドンを読み、どのアミノ酸を付けて運ぶか」で決まっています。
③ なぜメチオニンに固まったのか → 決定的な答えはない
では、なぜ生物は開始のアミノ酸をメチオニンに決めたのでしょうか。これには決定的な答えがありません。遺伝暗号そのものについては、Crickが1968年に、コドンとアミノ酸の割り当ては「偶然」で決まり、いったん決まると変えれば致命的になるので固定された、という「凍結された偶然(frozen accident)」説があります[13]。
3つの生物のグループ(細菌・古細菌・真核生物)の158種のtRNAを比べた研究では、開始tRNAの祖先はメチオニンのtRNAではなく、プロリン・グルタミン酸・トレオニンのtRNAだった可能性が示されました。また、メチオニンが開始のアミノ酸に選ばれたのは、翻訳開始の調節にかかわる「一炭素代謝」とメチオニンがつながっているためだ、という説があります[14]。
臨床遺伝専門医としては、次の3つのことも、メチオニンが開始のアミノ酸として定着したことに関係しているのではないかと考えています。
- 標準の遺伝暗号では、AUGはメチオニンだけを指定し、メチオニンを指定するのもAUGだけなので[1]、「始まりの合図」がほかのアミノ酸と紛れにくいこと。
- 細菌では、開始のメチオニンにホルミル基を付けてfMetにすることで、開始tRNAが開始因子IF2に選ばれやすくなり、伸長の段階には使われにくくなるので[6]、開始のメチオニンと途中のメチオニンを区別できること。
- 先頭のメチオニンは、翻訳のあとで切り取られることがあるので(N末端メチオニン除去)[8]、「とりあえずメチオニンで始めて、要らなければ後で外す」というしくみとセットになっていること。
ただし、この3つが定着の理由だと直接示した研究は確認できていません。確立した説ではなく、わかっている事実から考えた見方としてお読みください。
💡 用語解説:メチオニンとホルミルメチオニン
メチオニンは硫黄を含むアミノ酸の一つです。細菌では、開始用tRNAに結合したメチオニンにホルミル基が付けられ、ホルミルメチオニン(fMet)として最初に入ります。大腸菌では、このホルミル化がタンパク質合成に重要とされています[6]。アミノ酸の種類や記号はアミノ酸記号のページで確認できます。
原核生物の開始コドン
原核生物(細菌など)でも開始コドンの多くはAUGですが、AUG以外の開始コドンが使われる割合が真核生物より目立ちます。大腸菌では、開始コドンの約90%がAUG、約8%がGUG、約1%がUUGと報告されています[6]。どの開始コドンから始まっても、最初に入るのはホルミルメチオニンです[6]。
シャイン・ダルガルノ配列が開始コドンの目印になる
原核生物には、真核生物のように5’末端から読み進める方法とは別の目印があります。開始コドンの少し上流にあるシャイン・ダルガルノ(SD)配列です。大腸菌のmRNAでは、SD配列(GGAGG)がふつう開始コドンの7±2塩基上流にあり[6]、リボソームの16S rRNAの3’末端の配列と塩基対をつくります[5][6]。こうしてリボソームの小サブユニットが開始コドンの近くに置かれ、開始用tRNA(fMet-tRNA)がP部位でAUGと対合して翻訳が始まります[6]。
🦠 真核生物と原核生物の翻訳開始の違い
| 項目 | 真核生物(ヒトなど) | 原核生物(大腸菌など) |
|---|---|---|
| 主な開始コドン | AUG(まれにCUGなど) | AUG約90%・GUG約8%・UUG約1%(大腸菌) |
| 最初のアミノ酸 | メチオニン(Met-tRNAi)。まれにロイシン・バリンの例 | ホルミルメチオニン(fMet-tRNA) |
| 開始コドンの見つけ方 | 40Sが5’末端から読み進めて探す(スキャニング) | SD配列と16S rRNAの塩基対で位置が決まる |
| まわりの目印 | コザック配列(−3のプリン、+4のG) | 開始コドンの上流のSD配列(GGAGGなど) |
出典:Hinnebusch 2014[3]、Kozak 1987[2]、Laursenら 2005[6]、Kearse・Wilusz 2017[7]。
開始コドンの変異と遺伝子検査の読み方
開始コドンのATGが別の配列に変わると、その位置から翻訳が始まらなくなることがあります。これは遺伝子検査の報告書に出てくることがある変化で、臨床遺伝学では開始コドンの変異(start-loss、開始コドン消失)と呼びます。
報告書の「p.Met1?」「p.0」の意味
遺伝子の変化の書き方の国際ルール(HGVS命名法)では、開始コドン(タンパク質の1番目のメチオニン=Met1)の変化について、タンパク質がどうなるか予測できない場合はp.(Met1?)、タンパク質がつくられないと考えられる場合はp.0と書きます。開始コドンの変化を「p.Met1Thr」のように1つのアミノ酸が置きかわったかのように書くのは、翻訳への影響を正しく表していないので使わないとされています[9]。
病的かどうかの判断は「別の開始コドン」があるかで変わる
開始コドンが使えなくなっても、少し下流にある別のATG(同じ読み枠のメチオニン)から翻訳が始まり、先頭が少し短いタンパク質ができることがあります。そのため、開始コドンの変異は、ナンセンス変異やフレームシフト変異と同じようには扱われません。
バリアントの病的意義を5段階で判定するACMGガイドライン[4]には、遺伝子の働きが失われる変化(機能喪失型変異)を強い根拠とする「PVS1」という基準があります。ClinGenの作業部会は、開始コドンの変異にPVS1を「非常に強い」「強い」の強さで使うことは一般に勧めず、次のように使い分けるよう推奨しています[10]。
🧾 開始コドンの変異とPVS1の強さ(ClinGen SVI 2018)
| 状況 | PVS1の扱い |
|---|---|
| 別の開始コドンを使う、働くほかの転写産物がある | どの強さでも使わない |
| 別の開始コドンがなく、次のATGより手前に病的バリアントの報告がある | 中等度(PVS1_Moderate) |
| 別の開始コドンがなく、次のATGより手前に病的バリアントの報告がない | 補助的(PVS1_Supporting) |
出典:Abou Tayounら(Hum Mutat, 2018)[10]。実際の判定は、遺伝子ごとの知見やほかの根拠と合わせて行います。
つまり、報告書に開始コドンの変化が書かれていても、それだけで「病気の原因」と決まるわけではありません。下流に代わりの開始コドンがあるか、その遺伝子でどのような病的バリアントが報告されているかを調べたうえで判断されます。ミスセンス変異などほかの種類の変化との違いも含めて、結果の意味は遺伝カウンセリングで臨床遺伝専門医と確認することが大切です。

🩺 院長コラム【「1文字の変化」の重みは、場所で変わる】
開始コドンは、遺伝子の中のたった3文字です。それでも、ここが変わると、タンパク質がまったくつくられないこともあれば、少し短いタンパク質がつくられて働きがほとんど保たれることもあります。同じ「1文字の変化」でも、どこで起きたかによって意味が大きく違う、というのが遺伝子の結果を読むときの基本だと考えています。
だからこそ、報告書に「p.Met1?」と書かれていても、その記号だけで結論を出さないことが大切です。代わりの開始コドンの有無や、その遺伝子でこれまでに報告されている変化と照らし合わせて、一つずつ意味を確かめていく。それが臨床遺伝専門医の役割だと考えています。
🧬 遺伝子検査の結果の意味を、専門医と確認する
報告書に「開始コドン」「p.Met1?」「c.1A>G」などの記載があり意味が分からないときは、臨床遺伝専門医が常駐するミネルバクリニックの遺伝カウンセリングで、ACMGガイドラインにもとづく判定の根拠から確認できます。
まだ決めていない方は:遺伝カウンセリングとは | 臨床遺伝専門医とは
よくある質問(FAQ)
Q1. 開始コドンとは何ですか?
mRNAの上でタンパク質の合成(翻訳)が始まる位置を示すコドンです。ほとんどの生物でAUGで、メチオニンを指定します。DNAの配列ではATGと書きます。
Q2. 開始コドンが指定するアミノ酸は何ですか?
メチオニンです。標準の遺伝暗号では、メチオニンを指定するコドンはAUGの1つだけです。細菌では、最初に入るメチオニンにホルミル基が付いたホルミルメチオニンになります。
Q3. 開始コドンと終止コドンの違いは何ですか?
開始コドンはAUGの1つで、メチオニンを指定して翻訳を始めます。終止コドンはUAA・UAG・UGAの3つで、どのアミノ酸も指定せず、翻訳を終わらせます。覚え方は「8月(AUG)から始まる」「うわー(UAA)・うあぐ(UAG)・うがー(UGA)で終わる」です。
Q4. 開始コドンはATGとAUGのどちらですか?
どちらも同じ開始コドンです。RNAではT(チミン)の代わりにU(ウラシル)を使うので、mRNAではAUG、DNAの配列ではATGと書きます。
Q5. 開始コドンはAUGの1種類だけですか?
ほとんどはAUGですが、例外があります。標準の遺伝暗号表でもUUGとCUGが開始コドンになりうるとされ、大腸菌では開始コドンの約8%がGUG、約1%がUUGです。ヒトのミトコンドリアでは、AUGのほかにAUA・AUUも開始コドンとして使われます。
Q6. 原核生物の開始コドンは真核生物と何が違いますか?
原核生物でも主な開始コドンはAUGですが、最初に入るのはホルミルメチオニンです。また、真核生物のようにmRNAの先頭から読み進めて探すのではなく、開始コドンの上流にあるシャイン・ダルガルノ配列が16S rRNAと塩基対をつくることで、開始コドンの位置が決まります。
Q7. 遺伝子検査の結果にある「p.Met1?」とは何ですか?
開始コドン(タンパク質の1番目のメチオニン)に変化があり、タンパク質への影響が予測できないことを表す書き方です。下流に代わりの開始コドンがあるかなどで病的かどうかの判断が変わるため、結果の意味は臨床遺伝専門医と確認することをおすすめします。
Q8. 開始コドンはなぜメチオニンなのですか?ほかのアミノ酸ではダメなのですか?
しくみとしては、開始専用のtRNAがメチオニンを運ぶからです。ただし、ほかのアミノ酸ではダメというわけではなく、開始tRNAのアンチコドンを変えた実験では、大腸菌でグルタミン、哺乳類の培養細胞でバリンから翻訳が始まりました。進化の中でなぜメチオニンに決まったのかには決定的な答えがなく、遺伝暗号の割り当ては偶然で決まり固定されたとする説や、メチオニンと一炭素代謝とのつながりで説明する説があります。
関連記事
参考文献
- [1] National Center for Biotechnology Information. The Genetic Codes(1. The Standard Code/2. The Vertebrate Mitochondrial Code). [NCBI]
- [2] Kozak M. An analysis of 5′-noncoding sequences from 699 vertebrate messenger RNAs. Nucleic Acids Res. 1987;15(20):8125-8148. [DOI 10.1093/nar/15.20.8125] PMID: 3313277
- [3] Hinnebusch AG. The scanning mechanism of eukaryotic translation initiation. Annu Rev Biochem. 2014;83:779-812. [DOI 10.1146/annurev-biochem-060713-035802] PMID: 24499181
- [4] Richards S, Aziz N, Bale S, et al. Standards and guidelines for the interpretation of sequence variants: a joint consensus recommendation of the American College of Medical Genetics and Genomics and the Association for Molecular Pathology. Genet Med. 2015;17(5):405-424. [DOI 10.1038/gim.2015.30] PMID: 25741868
- [5] Shine J, Dalgarno L. The 3′-terminal sequence of Escherichia coli 16S ribosomal RNA: complementarity to nonsense triplets and ribosome binding sites. Proc Natl Acad Sci U S A. 1974;71(4):1342-1346. [DOI 10.1073/pnas.71.4.1342] PMID: 4598299
- [6] Laursen BS, Sørensen HP, Mortensen KK, Sperling-Petersen HU. Initiation of protein synthesis in bacteria. Microbiol Mol Biol Rev. 2005;69(1):101-123. [DOI 10.1128/MMBR.69.1.101-123.2005] PMID: 15755955
- [7] Kearse MG, Wilusz JE. Non-AUG translation: a new start for protein synthesis in eukaryotes. Genes Dev. 2017;31(17):1717-1731. [DOI 10.1101/gad.305250.117] PMID: 28982758
- [8] Giglione C, Boularot A, Meinnel T. Protein N-terminal methionine excision. Cell Mol Life Sci. 2004;61(12):1455-1474. [DOI 10.1007/s00018-004-3466-8] PMID: 15197470
- [9] HGVS Nomenclature. Protein: Substitution(translation initiation codon). Version 21.1.5. [HGVS Nomenclature]
- [10] Abou Tayoun AN, Pesaran T, DiStefano MT, et al. Recommendations for interpreting the loss of function PVS1 ACMG/AMP variant criterion. Hum Mutat. 2018;39(11):1517-1524. [DOI 10.1002/humu.23626] PMID: 30192042
- [11] Varshney U, RajBhandary UL. Initiation of protein synthesis from a termination codon. Proc Natl Acad Sci U S A. 1990;87(4):1586-1590. [DOI 10.1073/pnas.87.4.1586] PMID: 2406724
- [12] Drabkin HJ, RajBhandary UL. Initiation of protein synthesis in mammalian cells with codons other than AUG and amino acids other than methionine. Mol Cell Biol. 1998;18(9):5140-5147. [DOI 10.1128/MCB.18.9.5140] PMID: 9710598
- [13] Crick FH. The origin of the genetic code. J Mol Biol. 1968;38(3):367-379. [DOI 10.1016/0022-2836(68)90392-6] PMID: 4887876
- [14] Bhattacharyya S, Varshney U. Evolution of initiator tRNAs and selection of methionine as the initiating amino acid. RNA Biol. 2016;13(9):810-819. [DOI 10.1080/15476286.2016.1195943] PMID: 27322343
※本記事は一般の方に向けた情報提供を目的とするもので、個別の診断・検査の選択を示すものではありません。検査結果については臨床遺伝専門医にご相談ください。






