

目次
- 1 1. パーフォリンとグランザイムBとは ─ 「殺し屋」細胞の二大分子
- 2 2. 役割は対等ではない ─ 「入口」と「実行役」
- 3 3. 殺傷のしくみ ─ 膜に穴をあけて終わり、ではない
- 4 4. 分子の構造 ─ なぜパーフォリンは膜に、グランザイムBはタンパク質に働くのか
- 5 5. アポトーシス ─ グランザイムBは複数の回路を同時に切る
- 6 6. パイロトーシス ─ 「殺され方」を変えるもう一つの経路
- 7 7. HLHとの関係 ─ 「殺せないために炎症が止まらない」病気
- 8 8. がん免疫との関係 ─ 免疫監視と、腫瘍側の抵抗
- 9 9. 検査と遺伝診療 ─ 4つの階層を分けて考える
- 10 10. よくある誤解
- 11 まとめ ─ 一本の線ではなく、多段階のしくみとして
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

わたしたちの体の中では、ウイルスに感染した細胞やがん化しかけた細胞を見つけ出し、周りを傷つけすぎないように選んで取り除く「殺し屋」の細胞が働いています。その主役が細胞傷害性Tリンパ球(CTL)とナチュラルキラー(NK)細胞です。これらの細胞が標的を仕留めるときに使う二大分子が、膜に穴をあけるパーフォリン(perforin)と、細胞の中でハサミのように働くタンパク質分解酵素グランザイムB(granzyme B)です。この2つは「一対の殺傷分子」として並べて語られがちですが、実際の役割は対等ではありません。この記事では、パーフォリンとグランザイムBがどのように協力して細胞を殺すのか、そしてその破綻が家族性血球貪食性リンパ組織球症(HLH)という病気やがん免疫、さらにCAR-T・CAR-NKといった細胞療法とどうつながるのかを、遺伝医学の観点から解説します。
Q. パーフォリンとグランザイムBは、まず何をする分子ですか?
A. パーフォリンは標的細胞の膜に結合して穴(孔)をあけ、グランザイムBを細胞の中へ届ける「運び役」です。グランザイムBは細胞の中に入ると、細胞死のスイッチとなるタンパク質を切って、標的細胞を素早く自死(アポトーシス)へ導く「実行役」です。2つは対等ではなく、パーフォリンが複数のグランザイムに共通する「入口」であるのに対し、グランザイムBは主要な「実行役の1つ」という階層関係にあります。このしくみが生まれつき壊れると、感染をきっかけに免疫が止まらなくなるHLHという重い病気につながることがあります。
- ➤パーフォリン → 膜に穴をあけ、グランザイムを標的細胞へ届ける運び役(入口)
- ➤グランザイムB → 細胞内でタンパク質を切り、素早い細胞死を実行する主要な酵素
- ➤役割は非対称 → パーフォリンが失われると殺傷が広く崩れ、グランザイムB単独欠損は他のグランザイムで一部補われる
- ➤病気とのつながり → PRF1遺伝子の両アレル変異は家族性血球貪食性リンパ組織球症2型(FHL2)の原因になる
- ➤応用の広がり → がん免疫、CAR-T・CAR-NK細胞療法、HLHの機能診断まで、この経路が鍵を握る
🧬 パーフォリンとグランザイムBの基本情報
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. パーフォリンとグランザイムBとは ─ 「殺し屋」細胞の二大分子
わたしたちの免疫には、ウイルスに感染した細胞や、がん化しかけた異常な細胞を見つけて取り除く役割があります。この「細胞ごと壊す」仕事を担うのが、細胞傷害性Tリンパ球(さいぼうしょうがいせいT-リンパきゅう、CTL)とナチュラルキラー細胞(NK細胞)という2種類のリンパ球です。CTLとNK細胞は、細胞の中にあらかじめ用意しておいた「細胞傷害性顆粒(かりゅう)」という小さな袋に、パーフォリンとグランザイムという分子を蓄えています。標的細胞を見つけると、この顆粒を標的との接触面に放出して攻撃します[10]。
パーフォリンは、名前のとおり「膜に穴(perforation)をあける」タンパク質です。標的細胞の膜に結合して集まり、リング状の孔(あな)をつくります。グランザイムBは「顆粒(granule)の酵素(enzyme)」という名前が示すように、顆粒の中に入っているタンパク質分解酵素の一種です。パーフォリンがあけた通り道を使って標的細胞の中へ入り、細胞を自死へと導きます。この2つが協力する経路を「顆粒放出(グラニュール・エキソサイトーシス)経路」と呼びます[10]。
💡 用語解説:セリンプロテアーゼとは
プロテアーゼとは、タンパク質を特定の場所で切る「ハサミ」の役割をもつ酵素の総称です。セリンプロテアーゼは、その反応の中心にセリンというアミノ酸を使うタイプを指します。グランザイムBは、切る相手のアミノ酸配列のうち「アスパラギン酸(Asp)」というアミノ酸の直後を選んで切る性質が強く、この特徴から「Asp-ase(アスパーゼ)」とも呼ばれます[2]。
この経路の重要さは、パーフォリンをつくれないマウスを調べた研究で明確になりました。1994年に報告された研究では、パーフォリンを欠くマウスのCTLとNK細胞は、ウイルス感染細胞や移植片の細胞、NK細胞の標的となる細胞を試験管内でほとんど殺せませんでした。さらに、このマウスはリンパ球性脈絡髄膜炎ウイルス(LCMV)を排除できず、線維肉腫の腫瘍細胞を除去する効率も落ちていました[1]。この結果から、パーフォリンはCTLとNK細胞による細胞殺傷になくてはならない「効果分子(エフェクター分子)」だと位置づけられました。それまで試験管内で膜に穴をあける毒素として知られていたパーフォリンが、生体内の抗ウイルス免疫に不可欠な分子であることが、この研究ではっきりしたのです。
では、この2つの分子はどこでつくられているのでしょうか。生理的なパーフォリン・グランザイム経路の中心は、CD8陽性のCTLとNK細胞です。NK細胞では細胞傷害性顆粒が比較的いつでも準備されている一方、抗原に出会う前の「ナイーブ」なCD8陽性T細胞は、抗原の刺激と分化によってPRF1・GZMBを強く誘導し、実際に殺せるエフェクターCTLへと成熟していきます[10]。つまりパーフォリンやグランザイムBは、「いつでも誰でも持っている分子」ではなく、必要に応じてつくり出される性質のものです。
ここで見落とされやすいのが、グランザイムBの発現範囲がパーフォリンよりも明らかに広いという点です。CTLやNK細胞以外にも、免疫の状況に応じて一部のヘルパーT細胞や制御性T細胞、B系の細胞、肥満細胞(マスト細胞)などでグランザイムBが報告されており、こうした細胞ではパーフォリンを一緒に持たないことも少なくありません[11]。この場合、グランザイムBは細胞の外で、細胞外マトリックス(細胞と細胞のあいだを埋める足場)や接着に関わる分子を切る「パーフォリンに依存しない細胞外プロテアーゼ」として働きうると考えられています。したがって、組織を染めて「グランザイムB陽性=いま標的細胞を殺しているCTL・NK細胞」と即断することはできない、という点は診断の解釈で重要になります[11]。
2. 役割は対等ではない ─ 「入口」と「実行役」
パーフォリンとグランザイムBは、しばしば「一対の殺傷分子」としてセットで語られます。しかし、そのはたらきは対等ではありません。パーフォリンは、複数あるグランザイムすべてに共通する「入口」です。パーフォリンがなければ、グランザイムBだけでなく他のグランザイムも標的細胞の中に入れません。一方、グランザイムBは、細胞死を実行する主要な酵素ではあるものの、あくまで「実行役の1つ」にすぎません。グランザイムAなど、別のグランザイムによる代わりの経路が存在します[11]。
この非対称性は、それぞれの分子を欠くマウスの様子を比べるとよくわかります。グランザイムBをつくれないマウスのCTLは、標的細胞の中で素早くDNAを断片化し、アポトーシス(自死)を起こす力が明らかに落ちていました。ところが、長い時間をかければ殺傷そのものはかなり回復しました[2]。つまりグランザイムBは、細胞死に「速さと確実さ」を与える主役でありながら、いなくなっても他の経路が時間をかけて補う、という関係です。
対照的に、パーフォリンを欠く場合は、複数のグランザイムの送達を一度にすべて失うため、殺傷の障害がはるかに広範囲におよびます[1]。この違いが、後で述べるように、パーフォリンの遺伝子(PRF1)の変異がHLHという劇的なヒトの病気を引き起こす理由にもつながっています。
🩺 院長コラム【「同じ機能」と「同じ重要度」は違う】
遺伝子やタンパク質を学ぶとき、名前が並んで登場すると、つい「どれも同じくらい大事なのだろう」と考えてしまいがちです。けれども、パーフォリンとグランザイムBのように、機能が近くても体の中での「重み」がまったく違うことは珍しくありません。片方は多くの分子が通る一本道の入口、もう片方は複数ある実行役の一人。この階層の違いを押さえておくと、なぜ一方の遺伝子の変化だけが重い病気に直結するのか、という問いにも見通しがつきやすくなります。
臨床遺伝専門医として文献を踏まえると、「その分子が経路のどの位置にいるか」を意識することは、遺伝子の変化が体にどう響くかを読むうえでとても大切な視点です。
3. 殺傷のしくみ ─ 膜に穴をあけて終わり、ではない
「パーフォリンが細胞膜に大きな穴をあけ、そこからグランザイムBが単純に流れ込む」——長いあいだ、教科書ではこう説明されてきました。しかし現在では、このイメージだけでは不十分だと考えられています。実際のCTL・NK細胞による攻撃では、標的細胞を一瞬で溶かすほど大量のパーフォリンを広範囲にまくのではなく、免疫シナプス(killer細胞と標的細胞が接する狭い領域)に、細胞を溶かしきらない程度の少量を集中させることが重要とされています[6]。
2011年に報告された研究は、このプロセスを生きた細胞の観察で明らかにしました。まずパーフォリンが標的細胞の膜に一過性の小さな孔をつくると、カルシウムイオン(Ca²⁺)が細胞内へ流れ込みます。すると標的細胞は「膜が傷ついた」と感知し、傷を修復しようとして、傷ついた部分を袋(エンドソーム)として細胞内に取り込みます。このとき、パーフォリンとグランザイムBも一緒に袋の中へ運ばれます。そして、この袋の膜に改めてパーフォリンが孔をあけることで、グランザイムBが細胞質へ放出される、というしくみです[6]。
この発見によって、パーフォリンの役割は「細胞膜の穴をそのまま通す」だけではなく、細胞内に取り込まれた袋の膜を破って中身を細胞質へ逃がす、という段階も担うことがわかりました。条件によっては膜を直接通り抜ける経路も起こり得るため、2つのモデルは必ずしも排他的ではありませんが、少なくとも「大穴一発ですべてが決まる」という単純な図式ではないのです[6]。
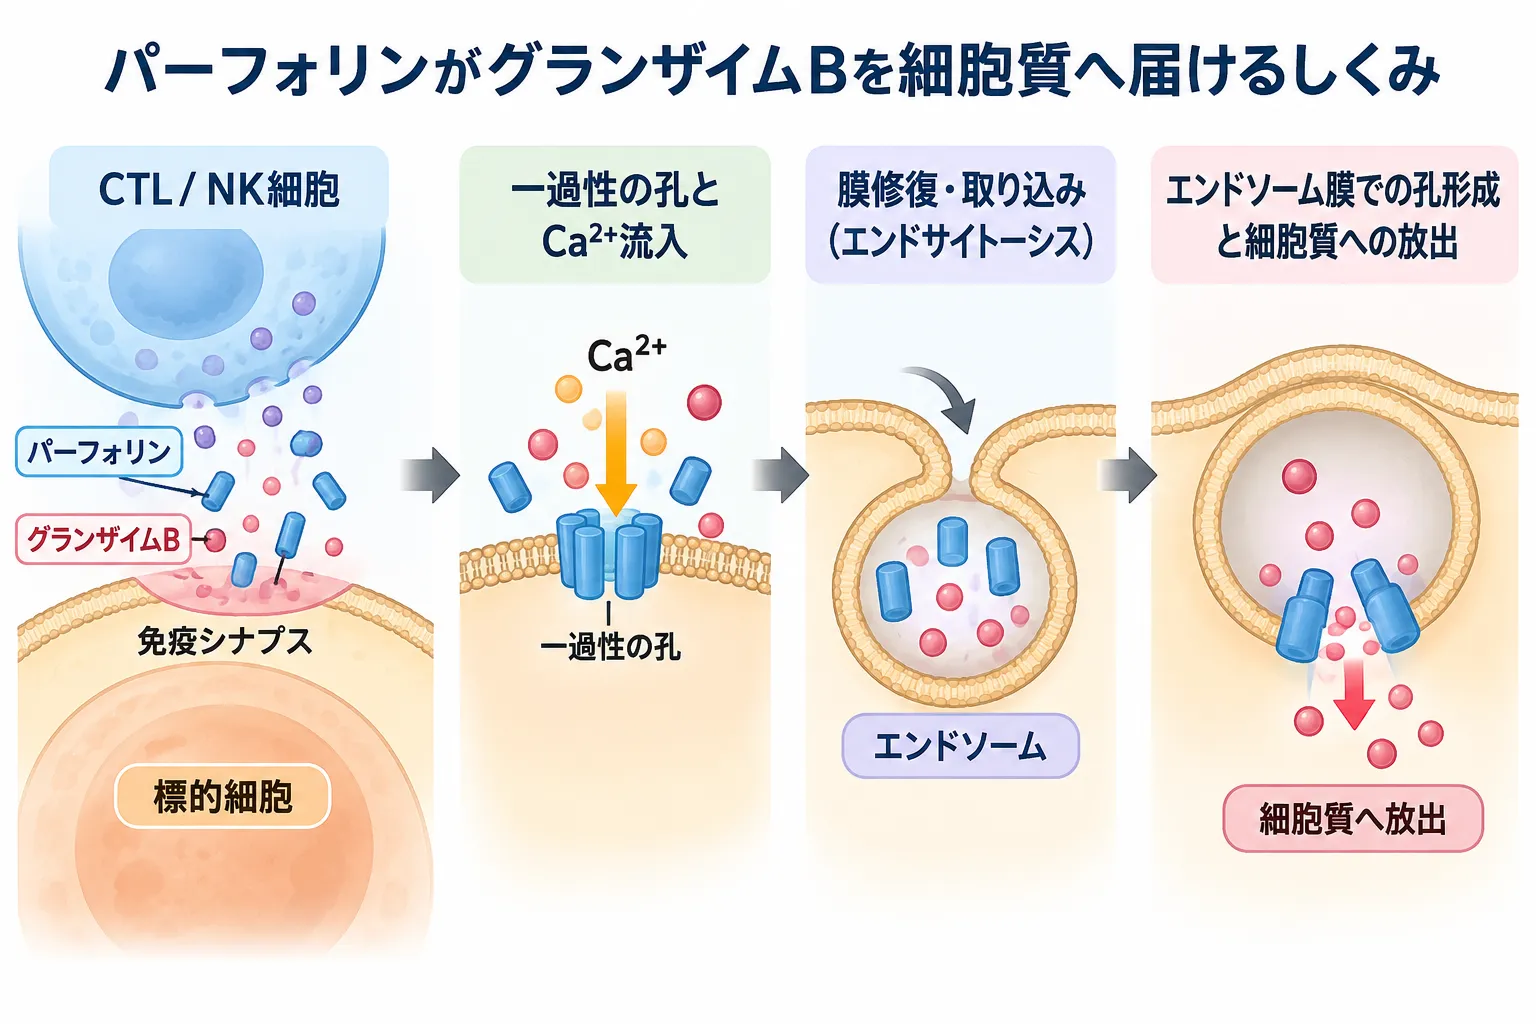
CTL・NK細胞から放出されたパーフォリンは標的細胞膜に一過性の孔を形成し、Ca²⁺流入をきっかけとする膜修復とエンドサイトーシスを誘導します。取り込まれたパーフォリンとグランザイムBはエンドソーム内に入り、パーフォリンがエンドソーム膜に孔を形成することで、グランザイムBが細胞質へ放出されます。
4. 分子の構造 ─ なぜパーフォリンは膜に、グランザイムBはタンパク質に働くのか
2つの分子が違う相手(パーフォリンは膜、グランザイムBはタンパク質)に働くのは、それぞれの立体構造が異なるからです。パーフォリンは膜そのものを標的にする孔形成タンパク質で、グランザイムBは多数の細胞内タンパク質を切るセリンプロテアーゼです。同じ顆粒の中に同居していても、狙う相手も、力を発揮するしくみもまったく別物なのです。2010年に報告されたパーフォリンの構造研究では、単量体(1個の分子)の結晶構造と、多数が集まってできた孔の電子顕微鏡像を組み合わせて、その仕組みが解き明かされました[5]。この研究では、パーフォリンのMACPFドメインが、補体という別の免疫防御分子(膜侵襲複合体)や、細菌がつくるコレステロール依存性の細胞溶解毒素と、構造のうえで共通の折りたたみを持つことも示されました。つまりパーフォリンは、生命が膜に穴をあけるために繰り返し使ってきた、由緒ある設計を受け継いでいるのです[5]。
パーフォリンは約67キロダルトン(分子の重さの単位)の分子で、細長い「鍵(かぎ)」のような形をしています。N末端側にはMACPF(膜侵襲複合体/パーフォリン)ドメインという部分があり、これが膜を貫く構造へと大きく形を変えて、複数の分子が集まって樽(たる)状の孔をつくります。C末端側にはC2ドメインという部分があり、これがカルシウムイオンに依存して、まず膜に結合する役割を担います[5]。つまりパーフォリンは、「カルシウムを合図に膜へ結合し、集まって形を変え、孔をつくる」という順序で働くのです。
💡 用語解説:活性化のしかたが2つの分子で違う
グランザイムBは、つくられた直後は働かない「前駆体(プロ酵素)」の状態で、余分な部分を切り落とされてはじめて酵素として動き出します。一方パーフォリンは、酵素のように切って活性化されるのではなく、顆粒の中に安全に貯蔵されたものが、放出後に中性の環境とカルシウムに出会うことで一気に膜結合・孔形成の力を発揮します。同じ「顆粒の分子」でも、スイッチの入り方が異なります。
グランザイムBのほうは、翻訳された直後は「プレプロ酵素」という形で、そのままでは働きません。細胞傷害性顆粒の中で、カテプシンC(別名DPPI)という別の酵素がグランザイムBのN末端にある2つのアミノ酸を切り取ることで、はじめて活性型になります[4]。DPPIをつくれないマウスでは、グランザイムAやBの量そのものは保たれているのに、余分な部分(プロダイペプチド)が残ったままで酵素活性がほとんど失われ、標的細胞のアポトーシスが強く障害されました[4]。これは、この切り落とし(プロセシング)が試験管内だけの現象ではなく、生体内で実際に必要な成熟の仕組みであることを示しています。
なお、「PRF1遺伝子の変化」「パーフォリンのタンパク質の量」「実際の機能」は、必ずしも一対一で対応しません。パーフォリンが折りたたまれる過程や、顆粒への輸送、カルシウム依存の膜結合、孔形成のいずれかを部分的に損なう変化があると、タンパク質の量が保たれていても機能不全を起こすことがあります[10]。この「量はあるのに働かない」という状態が、後で述べる検査の解釈を難しくする一因になります。
殺し屋細胞が「自分自身を殺さない」ためのしくみ
ここで一つ疑問が浮かびます。パーフォリンとグランザイムBは、細胞を殺すほど強力な分子です。それを大量に抱えているCTL・NK細胞は、なぜ自分自身を壊してしまわないのでしょうか。答えは、killer細胞が何重もの安全装置を備えているからです[10]。
まず、パーフォリンとグランザイムは、細胞傷害性顆粒という酸性の袋の中にまとめて蓄えられます。この顆粒は、もともと細胞内の分解を担うリソソームから派生した特別なオルガネラ(細胞内小器官)です。グランザイムBは中性の環境で最もよく働くため、顆粒内の酸性のpHは、その酵素活性を抑える方向に作用します。さらにグランザイムBは、セルグリシンというプロテオグリカンと複合体をつくって高い濃度で安全に収納されます[11]。
それでも、万が一グランザイムBが自分の細胞質に漏れてしまった場合に備えて、SERPINB9(PI-9)という阻害タンパク質が待ち構えています。これは「自爆を防ぐセルピン」として働き、漏れ出たグランザイムBを捕まえて無力化します[11]。加えて、標的を認識してからようやく顆粒が免疫シナプスへ向けて極性化し、その狭い領域でだけ放出されるという空間的な制御も加わります。つまり「顆粒に最初から完全に無害な分子だけが入っていて、放出後にはじめて活性化する」という単純な図ではなく、前駆体(プロ酵素)化・酸性環境・巨大分子との複合体化・内因性の阻害因子・局所的な放出を重ねた、多層の安全装置として理解するほうが正確です[10]。
5. アポトーシス ─ グランザイムBは複数の回路を同時に切る
細胞質に入ったグランザイムBは、Asp(アスパラギン酸)の直後を切るという性質を使って、細胞死に関わる多くのタンパク質を同時に攻撃します。主な経路の1つは、細胞死の「実行部隊」であるカスパーゼ3・カスパーゼ7を直接または間接的に活性化する道です。もう1つは、BID(ビッド)というタンパク質を切ることで、ミトコンドリアの外膜に穴があく反応(MOMP)を引き起こし、そこからさらに細胞死のシグナルが増幅される道です[11]。
💡 用語解説:アポトーシスとは
アポトーシスとは、細胞が周囲に炎症をまき散らさないように、静かに縮んで片づけられていく「計画的な自死」のことです。切り傷ややけどのように細胞が破れて内容物が漏れ出す「ネクローシス(壊死)」とは対照的に、炎症を起こしにくいのが特徴です。CTLやNK細胞が標的細胞を殺すとき、基本となるのはこのアポトーシスです。
さらにグランザイムBは、ICAD(アイキャド)というタンパク質なども直接切ることで、カスパーゼの経路を完全には使えない標的細胞に対しても、DNAの断片化や核の破壊を進めることができます[11]。つまりグランザイムBは、「カスパーゼ3を1つオンにするだけの酵素」ではなく、複数の細胞死の回路を同時に切っていく「分散型の実行役」と考えたほうが実態に合っています。ウイルスの中には、カスパーゼを止めることで感染細胞のアポトーシスを妨げるものがありますが、グランザイムBが複数の相手を並行して切れることは、その一点突破のブロックをかいくぐるうえで意味があると考えられています[11]。
ここで注意したいのが、ヒトとマウスでグランザイムBの性質が意外なほど違う点です。2006年の研究は、ヒトとマウスのグランザイム全体を比較し、同じ名前の分子でも基質(切る相手)の好みや殺傷効率が大きく異なることを示しました。ヒトには主要なグランザイムの遺伝子が5つ、マウスには約10あり、その進化の過程で性質が枝分かれしてきたのです[7]。このため、マウスの実験で見つかった「必須の相手」を、そのままヒトに当てはめることには慎重さが必要になります。BIDの切りやすさやカスパーゼの活性化効率などは、ヒトのグランザイムBを使った検証が特に重要とされています[7]。
6. パイロトーシス ─ 「殺され方」を変えるもう一つの経路
CTL・NK細胞が引き起こす細胞死は、アポトーシスだけではありません。2020年に報告された研究は、グランザイムBがGSDME(ガスダーミンE)というタンパク質を、カスパーゼ3と同じD270という場所で直接切ることを示しました。GSDMEを発現している腫瘍細胞では、これによってカスパーゼに依存しないパイロトーシス(細胞焦死、さいぼうしょうし)が始まります[8]。
💡 用語解説:パイロトーシスとアポトーシスの違い
パイロトーシスは、ガスダーミンというタンパク質が細胞膜に穴をあけることで起こる、炎症をともなう細胞死です。静かに片づけられるアポトーシスと違い、細胞が膨らんで破裂し、中身が周囲に漏れ出て免疫を刺激します。同じ細胞を殺す場合でも、標的細胞がどんなタンパク質を持っているかによって「殺され方」が変わり、炎症の起こりやすさや免疫の反応も変わってきます。
この研究では、パンカスパーゼ阻害剤を使った条件やカスパーゼ3を欠く条件でも、グランザイムBによるGSDMEの直接切断が確認されました[8]。つまり、「CTL・NKによる殺傷=炎症を起こさないアポトーシス」という古典的な図式は、標的細胞の側がGSDMEのようなガスダーミンを持っているかどうかによって変わる、ということです。なお、これは細菌感染などで働くカスパーゼ1・GSDMDを中心とした古典的なインフラマソーム型のパイロトーシスとは別の経路です。
この研究では、GSDMEを発現する腫瘍でマウスのGsdmeを欠損させると腫瘍の増殖が進み、逆にGSDMEを抑えられている腫瘍にGSDMEを発現させると増殖が抑えられました。そして、この腫瘍抑制作用は、パーフォリンを欠くマウスや、殺し屋リンパ球を除いたマウスでは失われました[8]。パイロトーシスが炎症というシグナルを通じて、局所の抗腫瘍免疫を強めることを示唆する結果です。ただし、炎症をともなう細胞死を増やすことがヒトの治療で常に望ましいとは限らないため、「GSDMEを増やせば細胞療法が必ず良くなる」と結論づけるのは早計です。これは有望な工学的仮説であって、標的組織への炎症毒性を含めた検証が必要な段階です[8]。
7. HLHとの関係 ─ 「殺せないために炎症が止まらない」病気
パーフォリンとヒトの病気を結びつけた決定的な研究が、1999年に報告されました。家族性血球貪食性リンパ組織球症(かぞくせいけっきゅうどんしょくせいリンパそしききゅうしょう、familial hemophagocytic lymphohistiocytosis:FHL/HLH)の患者さんで、PRF1遺伝子の両方のコピー(両アレル)にナンセンス変異やミスセンス変異が見つかり、患者リンパ球ではパーフォリンが著しく減るか失われ、細胞を殺す力も障害されていました[3]。このタイプは現在、家族性血球貪食性リンパ組織球症2型(FHL2)として位置づけられています。家族性HLH(FHL)は、T細胞やマクロファージが制御を失って活性化し、炎症性サイトカインを過剰につくり出す、常染色体潜性(劣性)遺伝の重い病気です[3]。
💡 用語解説:両アレル変異と常染色体潜性(劣性)遺伝
ヒトの遺伝子は、原則として父親由来・母親由来の2つのコピー(アレル)があります。常染色体潜性(劣性)遺伝の病気では、両方のコピーに病的な変化があってはじめて発症し、片方だけに変化がある人(保因者)は多くの場合発症しません。FHL2は、PRF1遺伝子の両方のコピーに病的な変化がある「両アレル変異」で起こります。
重要なのは、HLHの原因がPRF1だけではないことです。UNC13D、STX11、STXBP2、RAB27A、LYST、AP3B1など、細胞傷害性顆粒の輸送・接着・融合に関わる遺伝子の異常でも、よく似た過剰炎症の状態が生じます[9]。これは、「殺傷分子が存在するか」だけでなく、「必要な場所へ必要なタイミングで放出できるか」までが、免疫の恒常性にとって本質的だということを示しています。パーフォリンという弾薬があっても、それを正しく発射する装置が壊れていれば、結果は同じように破綻するのです。
HLHの病態は、一見すると逆説的です。CTLやNK細胞が感染細胞や活性化した免疫細胞を十分に取り除けないため、抗原による刺激が続き、T細胞やマクロファージの活性化とサイトカインの増幅を終息させられなくなると考えられています[10]。つまりパーフォリン欠損は、分類上は「免疫不全」でありながら、臨床的には激しい過剰炎症として現れます。「殺せないために炎症が止まらない」——この逆説が、HLHという病気を理解するうえでの鍵になります。この視点に立つと、HLHは単なる「炎症が過剰な病気」ではなく、細胞傷害顆粒の経路が壊れることで免疫応答を正しく終わらせられなくなる病気だと理解できます。
遺伝カウンセリングの観点からは、いくつか押さえておきたい点があります。FHL2をはじめとする家族性HLHは常染色体潜性(劣性)遺伝の形をとるため、両親がそれぞれ片方に病的な変化を持つ保因者である場合、次のお子さんが同じように両アレルに変化を受け継いで発症する確率は、一般的な常染色体潜性遺伝の考え方にもとづいて評価されます。また、発症したお子さんのきょうだいが保因者である可能性や、家系内での変化の受け継がれ方も、遺伝子の変化が特定できているかどうかによって説明の精度が変わります。どのタイプのHLHか(PRF1によるFHL2か、UNC13DなどによるFHL3〜5か)を分子レベルで確定することは、こうした家族への説明や、造血幹細胞移植を含む治療方針の検討においても意味を持ちます[9]。
🩺 院長コラム【「免疫が弱い」と「炎症が強い」は両立する】
免疫の病気というと、「弱くなって感染しやすくなる」か「強すぎて自分を攻撃する」か、どちらか一方をイメージしがちです。ところがHLHは、その両方が同時に起きます。標的をきちんと殺せない(免疫の一部が弱い)せいで、刺激が消えずに炎症が延々と続く(免疫が暴走する)のです。
多くの遺伝性疾患では、原因の特定までに複数の検査や時間を要することがあります。だからこそ、体の中で何が起きているのかを分子のレベルで理解しておくことは、診断や治療方針を検討するうえで重要です。
8. がん免疫との関係 ─ 免疫監視と、腫瘍側の抵抗
パーフォリンとグランザイムBの経路は、がんに対する免疫でも中心的な役割を果たします。1994年のパーフォリン欠損マウスの研究では、CTL・NK細胞による腫瘍細胞の排除も低下していました[1]。その後の研究とあわせて、パーフォリンに依存した「免疫監視(がん化した細胞を免疫が見張って取り除くしくみ)」が、腫瘍免疫の重要な柱であることが確立しました。ただし、実際の抗腫瘍免疫では、CTL・NK細胞はパーフォリン・グランザイム経路だけでなく、FasL(ファスエル)やTRAIL(トレイル)といった別の細胞死経路も使うため、「PRF1やGZMBの発現量=腫瘍を殺す力」と単純化することはできません[10]。
がんでは、この経路は二面性をもちます。免疫の側ではパーフォリン・グランザイムBが腫瘍細胞の排除を担う一方、腫瘍の側は、目印となる抗原を失ったり、MHC(自分の細胞であることを示す分子)を減らしたり、免疫チェックポイントを利用したりして、殺傷から逃れようとします[11]。中でも、グランザイムBを阻害するタンパク質「SERPINB9(PI-9)」は、本来は自分の細胞がうっかり漏れ出たグランザイムBから身を守るための生理的なしくみですが、腫瘍側で多くつくられると、グランザイムBに対する抵抗性という観点から研究の対象になっています[11]。
さらに、前の章で見たGSDMEの状態も、同じパーフォリン・グランザイムBの攻撃が「アポトーシス中心」になるか「パイロトーシスへ転換」されるかを左右します[8]。つまりがん免疫を考えるときには、殺し屋細胞の側の「殺す力」だけでなく、腫瘍細胞の側の「どう死ぬか(死に方の準備)」の両方を見る必要があるのです。免疫の強さと、腫瘍の抵抗のせめぎ合いが、実際の効き目を決めています。
細胞を殺す以外のグランザイムB ─ 自己免疫・慢性炎症との接点
グランザイムBには、標的細胞を内側から殺す働きのほかに、細胞の外で働く一面もあります。パーフォリンを伴わずに細胞外に存在するグランザイムBは、フィブロネクチン、ビトロネクチン、デコリンといった細胞外マトリックスや接着に関わるタンパク質を切り、組織のつくり替えや、接着を失うことによる細胞死(アノイキス)、炎症環境の形成に関わりうると報告されています[11]。この細胞外の働きは、関節炎や皮膚の自己免疫疾患などとの関連で研究されています。
自己免疫を考えるときは、2つの方向を分けて捉えると整理しやすくなります。1つはCTL・NK細胞による組織細胞の殺傷、もう1つは細胞外グランザイムBによる、細胞を殺さないタンパク質分解です。ただし、血液や組織の中でグランザイムBが増えているからといって、それだけで「グランザイムBが自己免疫の第一の原因だ」と結論づけるのは行きすぎです。疾患によって、細胞内のパーフォリン依存的なグランザイムBと、細胞外のパーフォリン非依存的なグランザイムBの寄与は異なり、ヒトでの治療標的としての妥当性はまだ一様ではありません[11]。「発現・相関」と「病気を実際に動かす因果」を分けて考える姿勢が、この領域では欠かせません。
感染症との関わり ─ ウイルスとの攻防
感染症でのこの経路の役割は病原体によって異なりますが、ウイルス感染細胞の除去は最も確立しています。パーフォリン欠損マウスでLCMVの排除が著しく障害されたことは、その古典的な証拠です[1]。逆に、PRF1や顆粒放出の異常を持つ人では、感染による刺激、とくに強く持続する免疫刺激がHLH発症の引き金になりうるため、感染の制御と免疫の制御は、この経路を介して密接につながっています[3]。前に述べたように、グランザイムBは複数の相手を並行して切れるため、ウイルスがカスパーゼを止めてアポトーシスを妨げても、その包囲網をかいくぐって細胞死を進めうると考えられています[11]。
治療標的としての難しさ
「パーフォリンやグランザイムBを薬で抑えれば、過剰な炎症を止められるのではないか」という発想は自然なものです。しかし、ここには大きな治療上の難しさがあります。パーフォリンを全身で抑えると、PRF1欠損症が示すように、抗ウイルス免疫や腫瘍の監視だけでなく、免疫応答を終息させる能力そのものを損ない、かえってHLHのような過剰炎症を招く可能性が理論的にあります[10]。つまりパーフォリンは、「強力だが、効かせてよい範囲が狭い」標的になりうるのです。グランザイムBについては、細胞内の殺傷はなるべく保ちながら、細胞外のグランザイムBを選択的に抑えるという戦略のほうが魅力的だと考えられていますが、これらはいずれも前臨床・探索段階の研究が中心で、パーフォリンやグランザイムBを直接抑えることが標準的な臨床治療として確立した段階には至っていません[11]。
💡 用語解説:CAR-T・CAR-NKとパーフォリン・グランザイムB
CAR-T細胞やCAR-NK細胞は、がんを狙い撃ちするように人工的に改変した細胞療法です。抗原を認識する部分は人工的に変えても、最終的に細胞を殺す装置の大部分は天然のCTL・NK細胞と共通で、免疫シナプスの形成から顆粒の放出、パーフォリン・グランザイムの送達という流れが主要な経路の1つになります。このため、細胞製品の性能を評価するときは、CARの構造だけでなく、顆粒への充填や脱顆粒、パーフォリン量、グランザイムB量なども重要な指標になると考えられています。
9. 検査と遺伝診療 ─ 4つの階層を分けて考える
パーフォリン系の検査が、いま最も実用化されているのがHLHの機能診断です。2017年に報告された研究では、HLHの評価を受けた1,614人を解析し、NK細胞の細胞内パーフォリン発現の低下によってPRF1の両アレル変異を検出する検査が、感度96.6%・特異度99.5%という高い性能を示しました[9]。一方、CD107aという分子を指標にした「脱顆粒アッセイ」は、顆粒を放出する仕組みの遺伝子異常をふるい分けるのに有用で、古典的なNK細胞の細胞傷害活性検査を単独で行うよりも、パーフォリンとCD107aを組み合わせた評価のほうが診断性能が高いことが示されました[9]。
この組み合わせは、仕組みのうえでも理にかなっています。パーフォリンの低下は「弾薬そのもの」の異常を、CD107aの低下は「顆粒を発射できない」異常を、それぞれ示唆するからです。ただし、パーフォリンの染色が正常だからといって安心はできません。発現量を保ちながら機能だけを失うPRF1のミスセンス変異は、パーフォリン染色だけでは完全には除外できないため、最終的には遺伝学的な評価と機能検査を統合して判断する必要があります[10]。
こうした検査を臨床の場で正しく読むには、この経路を4つの階層に分けて考えると理解しやすくなります。すなわち、①そもそも発現しているか(PRF1・GZMBの遺伝子とタンパク質)、②顆粒へ正しく収納・成熟しているか、③脱顆粒できるか、④標的細胞の中で細胞死のプログラムを完遂できるか、という4段階です。同じ「グランザイムBが多い」という結果でも、このどの階層を測っているかによって意味がまったく違ってきます[10]。HLHのパーフォリン検査とCD107a検査がうまく機能しているのも、異なる階層を別々に測っているからです。
遺伝診療の視点から見ると、パーフォリン・グランザイムBは「遺伝子の機能を、一つの数値だけで判断してはいけない」という教訓を与えてくれます。遺伝子の変化(バリアント)が見つかったとき、その変化が「量」に影響するのか「機能」に影響するのか、どの階層に効くのかを分けて考えることが、体への影響を読むうえで大切になります。当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行い、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのかを、中立の立場で整理しています。なお、パーフォリンやグランザイムBそのものの研究は基礎研究が中心の分野であり、ここでは「遺伝子の働きをどう読み解くか」という理解の土台として位置づけています。正確な診断に基づいてその後の判断ができるよう、判断材料を整理することが遺伝カウンセリングの役割です。
10. よくある誤解
誤解①「パーフォリンとグランザイムBは対等な相棒」
2つは対等ではありません。パーフォリンは複数のグランザイムに共通する「入口」で、失われると殺傷が広く崩れます。グランザイムBは主要な実行役ですが、単独で欠けても他のグランザイムが一部を補います[1][2]。
誤解②「パーフォリンは大穴をあけるだけ」
生理的な攻撃では、パーフォリンは一過性の小さな孔をつくって膜修復を誘導し、細胞内に取り込まれた袋の膜に改めて孔をあけてグランザイムBを放出します。「大穴一発」ではなく段階的なしくみです[6]。
誤解③「HLHは免疫が強すぎる病気」
HLHの本質は、標的を殺せないために刺激が消えず、結果として炎症が止まらなくなることです。「弱さ」と「暴走」が同時に起きる逆説的な病態で、パーフォリン欠損が引き金の1つになります[3]。
誤解④「グランザイムBが多ければよく殺せている」
グランザイムBが豊富でも、脱顆粒不全やパーフォリン不足、標的側の抵抗(SERPINB9など)があれば殺傷は弱くなります。発現量は「殺す力」そのものではなく、機能状態の一部にすぎません[11]。
まとめ ─ 一本の線ではなく、多段階のしくみとして
パーフォリンとグランザイムBは、しばしば一対の「殺傷分子」として並べて語られますが、仕組みのうえではパーフォリンが共有の送達プラットフォーム、グランザイムBが主要な実行酵素という階層関係にあります。これが、PRF1欠損がGZMB単独欠損よりも広範な殺傷障害を起こし、PRF1変異がHLHという劇的なヒトの病気につながる理由を説明します[1][3]。
同時にグランザイムBは、パーフォリンに依存した細胞内の殺傷酵素という枠を超えて、GSDMEを切ってパイロトーシスを起こす引き金にもなります[8]。この広がりが、がん、自己免疫、慢性炎症といった分野でグランザイムBの研究が拡大している理由です。ただしこの領域では、「発現・相関」と「病気を実際に動かす因果」を明確に分ける必要があり、治療標的としての成熟度は、FHLにおけるPRF1診断ほど高くはありません。
最も大切な視点は、CTL・NK細胞による標的細胞の死を「パーフォリンが穴をあけ、グランザイムBが入り、アポトーシスになる」という一本の線で捉えないことです。実際には、殺し屋細胞の側の転写・顆粒の成熟・輸送・脱顆粒・孔形成と、標的細胞の側の膜修復・SERPINB9・カスパーゼ/BID系・GSDMEなどが組み合わさって、殺傷の速さ、死の様式、炎症性、免疫原性が決まります[10]。この多段階性こそが、HLHの診断から腫瘍免疫、CAR-T・CAR-NKの設計までを一つの分子論でつなぐ、パーフォリン/グランザイムB系の本質です。
よくある質問(FAQ)
Q1. パーフォリンとグランザイムBは何をする分子ですか?
どちらも、細胞傷害性Tリンパ球(CTL)やナチュラルキラー(NK)細胞が、ウイルス感染細胞やがん化した細胞を殺すときに使う分子です。パーフォリンは標的細胞の膜に結合して孔(あな)をあけ、グランザイムを細胞の中へ届ける「運び役」です。グランザイムBは細胞の中に入ってから、細胞死に関わるタンパク質を切り、標的細胞を素早く自死(アポトーシス)へ導く「実行役」です。
Q2. この2つの役割はどう違うのですか?
役割は対等ではありません。パーフォリンは複数のグランザイムすべてに共通する「入口」で、これが失われるとグランザイムBを含むすべての送達が止まり、殺傷が広く崩れます。一方グランザイムBは主要な実行役ではあるものの、いなくなってもグランザイムAなど別の経路が時間をかけて一部を補います。パーフォリンが「共通の入口」、グランザイムBが「実行役の1つ」という階層関係にあります。
Q3. パーフォリンの遺伝子が関係する病気はありますか?
あります。パーフォリンをつくるPRF1遺伝子の両方のコピー(両アレル)に病的な変化があると、家族性血球貪食性リンパ組織球症2型(FHL2)という重い病気の原因になります。これは常染色体潜性(劣性)遺伝の病気で、標的細胞を十分に殺せないために免疫の刺激が消えず、結果として過剰な炎症が止まらなくなる、という逆説的な病態をとります。PRF1のほか、UNC13D・STX11・STXBP2など、顆粒の放出に関わる遺伝子の異常でも似た状態が起こります。
Q4. パイロトーシスとアポトーシスは何が違うのですか?
アポトーシスは、細胞が周囲に炎症をまき散らさずに静かに片づけられる「計画的な自死」です。一方パイロトーシスは、ガスダーミンというタンパク質が細胞膜に穴をあけ、細胞が膨らんで破裂し、中身が漏れ出て炎症を起こす細胞死です。2020年の研究で、グランザイムBがGSDME(ガスダーミンE)を直接切ってパイロトーシスを起こせることが示されました。標的細胞がGSDMEを持っているかどうかで、同じ攻撃でも「殺され方」が変わります。
Q5. パーフォリンやグランザイムBは検査で調べられるのですか?
HLHの機能診断では、NK細胞の細胞内パーフォリン発現や、CD107aという分子を使った脱顆粒アッセイが実用化されています。大規模な研究では、パーフォリンとCD107aを組み合わせた評価が、従来のNK細胞機能検査を単独で行うよりも診断性能が高いと報告されています。ただし、パーフォリンの染色が正常でも、量は保ちながら機能だけを失うタイプの変化は見逃されうるため、最終的には遺伝学的な評価や機能検査と統合して判断します。検査の必要性や結果の意味については、必ず主治医や臨床遺伝専門医にご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Cytotoxicity mediated by T cells and natural killer cells is greatly impaired in perforin-deficient mice. Nature. 1994. [PubMed 8164737]
- [2] Cytotoxic lymphocytes require granzyme B for the rapid induction of DNA fragmentation and apoptosis in allogeneic target cells. Cell. 1994. [PubMed 8137431]
- [3] Perforin gene defects in familial hemophagocytic lymphohistiocytosis. Science. 1999. [PubMed 10583959]
- [4] Dipeptidyl peptidase I is required for the processing and activation of granzymes A and B in vivo. Proc Natl Acad Sci U S A. 1999. [PMC17567]
- [5] The structural basis for membrane binding and pore formation by lymphocyte perforin. Nature. 2010. [PubMed 21037563]
- [6] Perforin pores in the endosomal membrane trigger the release of endocytosed granzyme B into the cytosol of target cells. Nat Immunol. 2011. [PubMed 21685908]
- [7] The major human and mouse granzymes are structurally and functionally divergent. J Cell Biol. 2006. [PubMed 17116752]
- [8] Gasdermin E suppresses tumour growth by activating anti-tumour immunity. Nature. 2020. [PubMed 32188940]
- [9] Perforin and CD107a testing is superior to NK cell function testing for screening patients for genetic HLH. Blood. 2017. [PubMed 28270454]
- [10] Perforin-mediated target-cell death and immune homeostasis. Nat Rev Immunol. 2006. [PubMed 17124515]
- [11] Cytotoxic and non-cytotoxic roles of the CTL/NK protease granzyme B. Immunol Rev. 2010. [PubMed 20536558]






