

目次
- 1 1. T細胞疲弊とは ─ 「疲れ」ではなく「別の状態」への変化
- 2 2. 疲弊・アナジー・老化 ─ 似て非なる3つの「働けない状態」
- 3 3. 疲弊T細胞の2つの顔 ─ TpexとTex
- 4 4. 疲弊を動かす分子の仕組み ─ TOXとNFATの偏り
- 5 5. エピジェネティックな「傷跡」 ─ なぜ元に戻りにくいのか
- 6 6. CD4+T細胞の疲弊 ─ 「助け」を失うと何が起きるか
- 7 7. 腫瘍微小環境 ─ がんの「陣地」が疲弊を後押しする
- 8 8. 免疫療法との関係 ─ 複数のブレーキを同時に外す
- 9 9. 次世代のCAR-T ─ 疲弊に「強い」細胞をつくる
- 10 10. 遺伝診療との接点 ─ 用語を臨床にどうつなぐか
- 11 よくある誤解
- 12 まとめ ─ 疲弊の理解が免疫療法を動かす
- 13 よくある質問(FAQ)
- 14 参考文献
- 15 関連記事

📍 クイックナビゲーション
がんや長引くウイルス感染とたたかう主役は、免疫の司令塔であるT細胞です。ところが、敵がしぶとく居座り続けると、T細胞はしだいに戦う力を失っていきます。この「働けなくなった状態」をT細胞疲弊(ティーさいぼうひへい/Exhaustion)といいます。単に疲れて休んでいるのではなく、遺伝子の使われ方そのものが書き換えられた、独自の状態です。この疲弊の仕組みを解き明かしたことが、免疫チェックポイント阻害薬やCAR-T療法といった、いま注目のがん免疫療法を生み出す土台になりました。この記事では、T細胞疲弊とは何か、なぜ元に戻りにくいのか、そして最新の治療や遺伝子診断とどうつながるのかを、遺伝専門医の視点でやさしく解説します。
Q. T細胞疲弊とは何ですか?まず結論だけ知りたいです
A. T細胞疲弊(Exhaustion)とは、がんや慢性感染のように敵の刺激が長く続いた結果、キラーT細胞などが本来の攻撃力を段階的に失っていく、独自の機能不全状態のことです。疲弊したT細胞は、PD-1をはじめとする「ブレーキ役の受容体(抑制性受容体)」をたくさん表面に出し、サイトカインを出す力や、がん細胞を殺す力が下がっていきます。この状態はTOXという司令塔と、遺伝子の使われ方(エピジェネティクス)の書き換えによって固定され、いったん深く進むと元に戻りにくくなります。この仕組みを逆手に取ったのが、ブレーキを外す免疫チェックポイント阻害薬です。
- ➤正体 → 敵の刺激が長引いた結果、T細胞が段階的に力を失う「独自の分化状態」。ただの疲労ではない
- ➤目印 → PD-1・LAG-3・TIM-3など複数のブレーキ役の受容体を同時に表面に出す
- ➤2つの顔 → 増える力を残した前駆細胞(Tpex)と、力尽きた終末疲弊細胞(Tex)に分かれる
- ➤元に戻りにくい理由 → TOXという司令塔と、エピジェネティックな「傷跡」で状態が固定される
- ➤治療との関係 → ブレーキを外す免疫チェックポイント阻害薬や、疲弊に強いCAR-T細胞の開発につながっている
🧬 T細胞疲弊の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | ティーさいぼうひへい/T細胞消耗。英語では T cell exhaustion(ティーセル・エグゾースチョン) |
| どんな状態か | がんや慢性感染で敵の刺激が長く続いた結果、T細胞が攻撃力を段階的に失う独自の機能不全状態 |
| 主な目印 | PD-1・LAG-3・TIM-3・CTLA-4・TIGITなどのブレーキ役の受容体を複数まとめて表面に出す |
| 失われる順番 | まずIL-2と増える力 → 次にTNF-α → 最後にIFN-γと殺傷力、という「階層的」な喪失 |
| 司令塔の分子 | 転写因子TOXと、NFAT・NR4Aなどの働きの偏り。遺伝子の使われ方が書き換えられる |
| 医療との関わり | 免疫チェックポイント阻害薬やCAR-T療法など、がん免疫療法の効き目を左右する |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査や治療を勧めるものではありません。
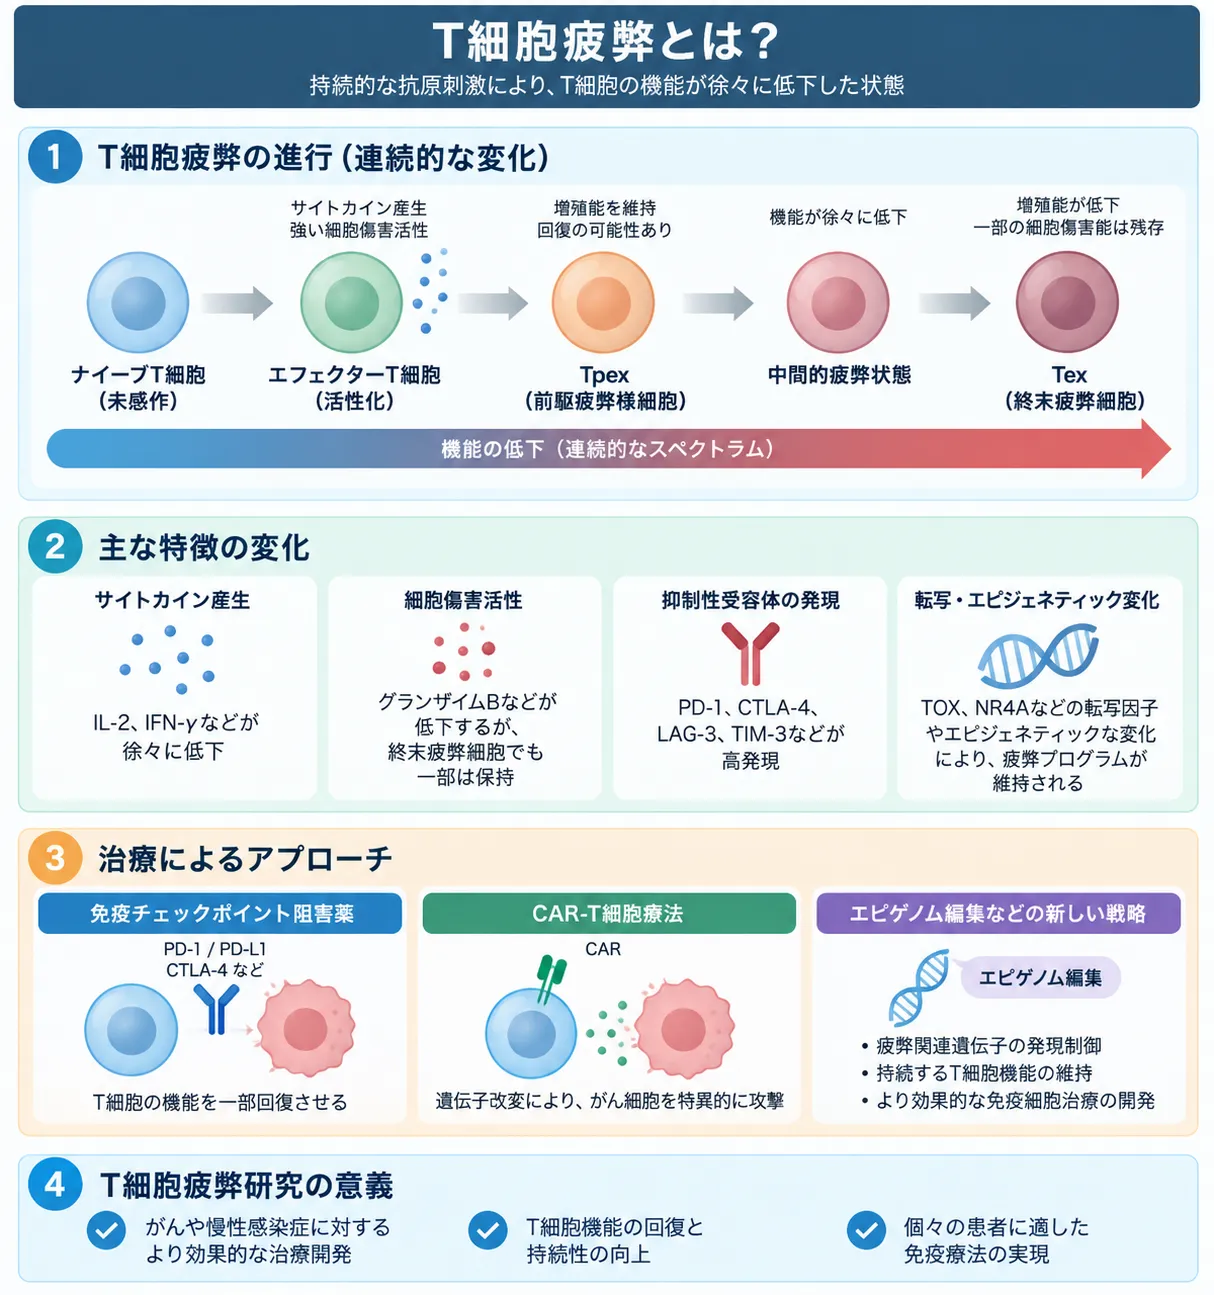
図:T細胞疲弊は、持続的な抗原刺激などを背景に、前駆細胞様疲弊T細胞(Tpex)から中間的な疲弊状態を経て、終末疲弊T細胞(Tex)へと進む連続的な変化として理解されています。進行に伴って増殖能やサイトカイン産生などの機能が低下し、PD-1などの抑制性受容体の発現や、TOX・NR4Aなどが関与する転写・エピジェネティックプログラムが形成されます。免疫チェックポイント阻害薬は主に増殖能を残したTpexの応答を促し、CAR-T細胞の疲弊耐性化やエピゲノム編集なども研究されています。
1. T細胞疲弊とは ─ 「疲れ」ではなく「別の状態」への変化
T細胞は、体に入り込んだウイルスや、がん細胞のような「自分ではない目印」を見つけて排除する、免疫の主役です。かぜのような急な感染では、敵を認識したT細胞が一気に増え、強い攻撃力を発揮して敵を片づけたあと、その一部が長生きするメモリーT細胞として残り、次の感染に備えます。ところが、がんやHIV、C型肝炎ウイルス(HCV)のように、敵をなかなか排除しきれない状況では、話が変わってきます。
敵の抗原(目印)と炎症の信号にT細胞が長く・強くさらされ続けると、その働きは段階的に落ちていきます。この機能不全の状態が「T細胞疲弊」です。大切なのは、これが「働きすぎて一時的にへばっている」だけの状態ではない、という点です。疲弊したT細胞は、遺伝子の使われ方や代謝の性質が、元気なT細胞ともメモリーT細胞とも異なる、独自の分化状態にあることがわかっています。この概念は、もともとマウスにリンパ球性脈絡髄膜炎ウイルス(LCMV)を慢性感染させる実験モデルの研究から提唱されました。
💡 用語解説:抗原・サイトカイン・抑制性受容体
抗原とは、免疫が「敵の目印」として認識する物質のことです。サイトカインは、免疫細胞どうしが連絡を取り合うために出すタンパク質で、IFN-γ(インターフェロンガンマ)やTNF-α、IL-2などがあります。抑制性受容体(ブレーキ役の受容体)は、T細胞の働きすぎを抑えるスイッチで、PD-1やCTLA-4が代表例です。疲弊したT細胞は、このブレーキ役をたくさん表面に出しているのが特徴です。
疲弊したT細胞のもう一つの特徴が、力を失う「順番」です。まず、増える力とIL-2というサイトカインを出す力が失われます。次にTNF-αを出す力が下がり、最後に、最も重い段階でIFN-γを出す力や、グランザイム・パーフォリンといった武器でがん細胞を殺す力が失われます。この段階的な喪失は「階層的(かいそうてき)」と呼ばれ、疲弊がゆっくり進む病態であることを示しています。
見方を変えると、疲弊は体を守るための仕組みでもあります。T細胞が力を出しすぎると、サイトカインが暴走したり、自分の健康な組織まで傷つけたりする危険があります。排除しきれない敵を前にして、T細胞があえて力をゆるめることは、自分の体への深刻なダメージ(免疫病理)を避けるための「安全弁」として進化した、と考えられています。ただし、この自己防衛の仕組みが、がんの周りではがん細胞に都合よく利用されてしまい、免疫ががんを見逃す原因になります。
2. 疲弊・アナジー・老化 ─ 似て非なる3つの「働けない状態」
がんの周りや慢性の炎症のもとでは、T細胞が「うまく働けない状態」になりますが、その中身は一つではありません。疲弊(Exhaustion)は、アナジー(Anergy)や老化(Senescence/セネッセンス)という別の状態としっかり区別して理解する必要があります。これらは表面の目印を一部共有し、がんの周りで混在しますが、生まれるきっかけも、元に戻せるかどうかも、まったく異なります。
アナジー ─ 「不完全な出会い」で眠ってしまう
アナジーは、ナイーブT細胞(まだ敵に出会っていないT細胞)が、抗原提示細胞から「敵がいる」という信号(シグナル1)は受け取ったのに、「本当に攻撃してよい」という共刺激の信号(シグナル2)が足りないときに起きる、無反応の状態です。これは、自分自身を攻撃してしまう自己反応性のT細胞を眠らせ、自己免疫を防ぐための末梢性寛容(まっしょうせいかんよう)という仕組みとして働きます。敵の刺激が長く続くことで起きる疲弊とは違い、最初の出会いの「状況」で決まる点が特徴です。
老化 ─ 分裂を重ねて「引退」する
T細胞の老化は、細胞分裂をくり返すうちに染色体の端(テロメア)が短くなり、DNAの傷や加齢によって、これ以上分裂できなくなる終末的な状態です。老化したT細胞は共刺激の受け皿であるCD28を失い、代わりにCD57やKLRG1といった目印を出します。最大の特徴は細胞周期が完全に止まることで、これはp16・p21・p53といった細胞周期のブレーキ遺伝子が強く働くために起こります。疲弊細胞がサイトカインを出せなくなるのに対し、老化細胞はIL-6やIL-8などの炎症性サイトカインを出し続け、周囲の炎症をかえって悪化させることもあります。
🔬 疲弊・アナジー・老化の違い
| 特徴 | 疲弊(Exhaustion) | アナジー(Anergy) | 老化(Senescence) |
|---|---|---|---|
| 主なきっかけ | 敵の刺激が長く続く+炎症 | 共刺激が足りない不完全な活性化 | 分裂のくり返し・DNA損傷・加齢 |
| 起きる段階 | 働いていたT細胞が独自の道へ | 初めて敵に出会ったとき | メモリー/終末分化した細胞 |
| 増える力 | 段階的に低下(前駆細胞は維持) | ほぼなし(IL-2不足) | 完全になし(不可逆な停止) |
| 主な目印 | PD-1・LAG-3・TIM-3などを共発現 | 固有の目印は乏しい | CD28喪失・CD57+・KLRG1+ |
| 治療の切り口 | 免疫チェックポイント阻害薬で再活性化 | 共刺激やIL-2の付与 | 老化関連の経路・代謝への介入 |
※3つの状態はがんの周りで混在します。どの状態が主かによって、有効な治療の考え方が変わります。
この3つを分子レベルで見分けることは、適切な免疫療法を設計するうえでとても重要です。たとえば、疲弊であればブレーキを外す治療が効く可能性がありますが、老化のように細胞周期が完全に止まった細胞には、同じ手が通用しにくいのです。「働けない」と一括りにせず、その中身を見極める――これが、いまのがん免疫学の基本的な姿勢になっています。
🩺 院長コラム【「機能が落ちている」の中身を分けて考える】
遺伝性腫瘍の診療でも、「働きが落ちている」という一言の中に、まったく別の仕組みが隠れていることをよく経験します。同じ「機能低下」でも、原因が違えば打つ手も変わる。T細胞の疲弊・アナジー・老化を区別する話は、私が日々向き合っている「同じ結果に見えても、たどってきた道筋で対応が変わる」という考え方と地続きです。
免疫の世界でも、「T細胞が効いていない」で思考を止めず、それが疲弊なのか、眠っているだけ(アナジー)なのか、引退(老化)なのかを見極める。この一段深い問いが、次にどんな治療が届きうるかを大きく左右します。細かい区別のように見えて、実は治療の入口を決める大切な分かれ道なのです。
3. 疲弊T細胞の2つの顔 ─ TpexとTex
かつては、疲弊とは元気なT細胞がだんだん弱っていく「一本道」だと考えられていました。しかし、1個ずつの細胞の遺伝子を読む技術(単一細胞RNAシーケンス)などが進んだことで、疲弊したT細胞の集団の中には、はっきり性格の異なる2つのタイプがあることがわかってきました。疲弊は、元気な細胞の延長線上にあるのではなく、早い段階で枝分かれする「独自の道」だったのです。
長く続く
(前駆細胞様)
(終末疲弊)
攻撃できない
Tpex ─ 増える力を残した「幹細胞のような」疲弊細胞
1つめは前駆細胞様疲弊T細胞(Tpex/ティーペックス)です。疲弊した集団の中で、いわば「幹細胞」のような役割を果たす大切なタイプです。最大の目印は、TCF-1(遺伝子名Tcf7)という転写因子を持ち続けていることです。TCF-1は、T細胞の幹細胞のような性質を保ち、早すぎる力尽きを防ぐ、司令塔のような役割を担います。TpexはPD-1をほどほどに出しますが、TIM-3など他のブレーキ役の受容体は少なく、限られたサイトカインしか出せない代わりに、強い自己複製能(自分を増やす力)を残しています。
臨床の面で決定的に重要なのは、免疫チェックポイント阻害薬(抗PD-1抗体など)に応じて爆発的に増え、免疫を立て直すのは、このTpexに限られるという点です。ある研究では、がんの中にいるTCF-1+PD-1+のT細胞が、チェックポイント治療に対する増殖の主役であり、この集団を取り除くと治療の効果が失われることが示されました[1]。つまり、チェックポイント治療は「疲弊した細胞を元に戻す」というより、「増える力を残したTpexを増やす」ことで効いている、という理解が広がりました[2]。
Tex ─ 力尽きた「終末疲弊」の細胞
Tpexから分化の最終段階に達したのが終末分化型疲弊T細胞(Tex/テックス)です。ここまで来ると、TCF-1は完全に失われ、代わりにTOX(トックス)という転写因子が高く発現します。表面にはPD-1がとても高いレベルで出るのに加え、TIM-3・LAG-3・TIGIT・CD244・CD160など複数のブレーキ役が同時に並びます。多機能性を失い、IFN-γを出す力もがん細胞を殺す力も大きく下がり、自分を増やす力も失っています。この細胞にチェックポイント治療をしても、細胞そのものが力を取り戻すことはありません。ただし完全な無力ではなく、限られた範囲で敵の制御に寄与し続けているという見方もあります。
4. 疲弊を動かす分子の仕組み ─ TOXとNFATの偏り
疲弊という状態は、特定の転写因子(遺伝子のスイッチを操るタンパク質)の働き方と、遺伝子の使われ方の書き換えによって、強く固定されています。まず、その中心にある「バランスの崩れ」から見ていきましょう。
NFATとAP-1のバランスが崩れる
ふつうのT細胞が敵を認識すると、T細胞受容体からの信号でNFATという転写因子が核に入ります。同時に、CD28などの共刺激からの信号で、AP-1という別の因子(c-Junなどの組み合わせ)ができます。核の中でNFATとAP-1が手を組むと、IL-2やIFN-γといった攻撃用の遺伝子が力強くオンになります。ところが、敵の刺激が長く続き、共刺激が足りない状況では、AP-1(特にc-Jun)の働きが落ちてしまいます。
相棒のAP-1を失った「ひとりぼっちのNFAT」は、攻撃用の遺伝子をうまくオンにできません。その代わり、NFATはTOXやNR4Aといった別の因子と手を組むようになります。このNFAT-TOX/NR4Aという異常な組み合わせへの切り替わりが、ブレーキ役の受容体(PD-1など)を増やし、攻撃力を抑える「疲弊プログラム」を直接動かします。実際に、CAR-T細胞にc-Junをたくさん作らせて正常なバランスを取り戻すと、疲弊に強くなることが実験で示されており、この仕組みの重要性を裏づけています[3]。
💡 用語解説:転写因子とは
転写因子とは、遺伝子の「オン・オフ」を切り替えるスイッチの役割をするタンパク質です。どの遺伝子を、いつ、どれくらい使うかを決めています。NFAT・AP-1・TOX・NR4Aは、いずれもT細胞の運命を左右する転写因子です。同じT細胞でも、どの転写因子が主に働くかによって、元気な戦士になるか、疲弊した状態になるかが変わってきます。転写因子について詳しくはこちら。
TOX ─ 疲弊の「司令塔」
近年、疲弊の遺伝子プログラムとエピジェネティックな変化を始動させ、指揮する中心的な司令塔(マスターレギュレーター)がTOXであることが特定されました。マウスの研究では、TOXは元気な細胞やメモリー細胞の形成にはほとんど不要な一方、疲弊細胞ができるためには必須であり、TOXがないと疲弊細胞そのものが形成されないことが示されました[4]。TOXは、長く続くT細胞受容体の信号(特にひとりぼっちのNFATを介したカルシウム信号)によって誘導されます。
興味深いことに、TOXはただの「働きを落とす因子」ではありません。ふつう、刺激されすぎたT細胞は死んでいくはずですが、TOXはT細胞をその死から守り、疲弊したまま生き延びさせます[4]。つまりTOXは、「攻撃力を下げる」代わりに「細胞を生かす」ことで、体を守る安全弁の中核として働いているのです。攻撃力と生存を天秤にかけ、生存を選ぶ――この巧妙な仕組みが、疲弊という状態の本質を物語っています。
5. エピジェネティックな「傷跡」 ─ なぜ元に戻りにくいのか
疲弊したT細胞を、元気な細胞やメモリー細胞と決定的に分けるのが、そのエピジェネティックな状態です。エピジェネティクスとは、DNAの配列そのものは変えずに、どの遺伝子を使いやすくし、どの遺伝子を使いにくくするかを決める、いわば遺伝子の「付箋(ふせん)」のような仕組みです。DNAのメチル化や、DNAを巻き取るヒストンの修飾によって、遺伝子の使いやすさが全体的に変わります。
💡 用語解説:エピジェネティクスとクロマチン
DNAは、ヒストンというタンパク質に巻きついてクロマチンという構造をつくっています。この巻き取りがゆるむと遺伝子は使いやすく(開いた状態)、きつく巻かれると使いにくく(閉じた状態)なります。エピジェネティクスは、この「開く・閉じる」を調整する仕組みです。DNAの文字(配列)は同じでも、どこが開いているかで細胞の性格が決まります。疲弊細胞では、この開き方が独特のパターンに書き換えられています。
疲弊したT細胞では、ブレーキ役の受容体やTOXなどの疲弊関連遺伝子のあたりが「開いた(使いやすい)」状態に保たれ、逆にIFN-γやグランザイムBといった攻撃分子のあたりは「閉じた(使いにくい)」状態になっています。TOXは、この疲弊に特有のクロマチンの地図を書き換える働きそのものを担っており、転写と同時にエピジェネティックな再編成を進める中心にいることが示されています[4]。
そして最も重要なのが、この書き換えが時間とともに「傷跡(スカー)」として深く刻み込まれることです。C型肝炎ウイルス(HCV)に慢性感染した患者さんが、直接作用型抗ウイルス薬(DAA)で完治し、ウイルスが体から消えたあとでも、HCVに反応していたキラーT細胞のエピジェネティックな傷跡は残ったままだったことが報告されています。とりわけTOXやHIF1Aといった遺伝子の近くにある「スーパーエンハンサー」と呼ばれる領域の書き換えが元に戻らず、正常なメモリー細胞の働きを取り戻せないことが示されました[5]。
この「エピジェネティックな柔軟性の欠如」は、PD-1をブロックする薬だけでは、深く疲弊したT細胞を根本から永続的に元に戻すのが難しい理由を、分子のレベルで説明してくれます。ブレーキを外しても、遺伝子の使われ方そのものが書き換えられていれば、細胞は元の力を取り戻しきれないのです。だからこそ、傷跡そのものを書き換えようとする新しい研究(後の章で紹介します)が注目を集めています。
6. CD4+T細胞の疲弊 ─ 「助け」を失うと何が起きるか
疲弊の研究は、長らくCD8+T細胞(キラーT細胞)を中心に進んできました。しかし近年、CD4+T細胞(ヘルパーT細胞)もまた疲弊することがわかり、その重要性が見直されています。CD4+T細胞は、免疫応答全体の「指揮者」として、キラーT細胞を最適に立ち上げたり、B細胞の抗体づくりを助けたりと、多くの役割を担っています。
特に、長引く感染のもとで、濾胞性ヘルパーT細胞(Tfh)が出すIL-21というサイトカインは、キラーT細胞が前駆細胞(Tpex)の状態を保ち、重い終末疲弊に陥るのを防ぐために、とても重要です。HIVやHCVの患者さんでは、CD4+T細胞によるIL-21の産生量が、キラーT細胞の働きやウイルス制御の良し悪しと関係することが知られています。
CD4+T細胞自身が疲弊すると、増える力が落ちるだけでなく、こうした「助け(ヘルプ)」の力が失われ、PD-1やTIM-3などのブレーキ役を出すようになります。適切な助けを奪われた状態で立ち上げられたキラーT細胞は、二次的に増える力に生まれつきの欠陥を抱え、急速に終末疲弊に似た状態へと進んでしまいます。つまり、CD4+T細胞の疲弊は、単にヘルパー機能が失われるだけでなく、間接的にキラーT細胞の疲弊を加速させ、免疫全体の崩れを招く引き金になるのです。がん免疫を総合的に理解するうえで、見落とせない視点です。
7. 腫瘍微小環境 ─ がんの「陣地」が疲弊を後押しする
T細胞の疲弊は、敵の抗原による刺激だけで決まるわけではありません。がんの周りに広がる腫瘍微小環境(しゅようびしょうかんきょう/TME)という「陣地」全体が、疲弊を積極的に後押しします。この環境では、T細胞のエネルギーの使い方(代謝)まで作り替えられてしまいます。
がん細胞はさかんに糖(グルコース)を消費するため、その周りではT細胞が使う糖が枯渇し、酸素も足りない低酸素の状態になります。糖の奪い合いはT細胞を代謝的な飢餓状態に追い込み、低酸素はHIF-1αという因子を安定させて、疲弊に関わるエピジェネティックな変化に関与すると考えられています。栄養と酸素の乏しい戦場では、T細胞は本来の力を発揮できないのです。
さらにTMEには、制御性T細胞(Treg)や骨髄由来抑制細胞(MDSC)といった、免疫にブレーキをかける細胞が集まっています。これらが出すIL-10やTGF-β、IL-35といった抑制性のサイトカインは、キラーT細胞の攻撃力を直接そぎ、疲弊を加速させます。栄養の奪い合い、低酸素、そして抑制細胞との相互作用――こうした要素が相乗的に働いて、T細胞を深い疲弊へと追い込んでいくのです。がんは、免疫の安全弁を巧みに利用して、自分に有利な陣地をつくり上げているといえます。
8. 免疫療法との関係 ─ 複数のブレーキを同時に外す
T細胞疲弊の仕組みが解き明かされたことは、そのままがん免疫療法の進歩に直結しました。免疫チェックポイント阻害薬(抗PD-1抗体など)は、疲弊細胞が出しているブレーキを外すことで、Tpexを増やし、抗腫瘍の反応を立て直します。しかし、多くの患者さんで最初から効かなかったり、いったん効いても後で効かなくなったりすることがあります。これは、疲弊が進んだT細胞がPD-1だけでなく、LAG-3・TIM-3・TIGITなど複数のブレーキを同時にかけているためです。
💡 用語解説:免疫チェックポイントとは
免疫チェックポイントとは、免疫が暴走しないよう働きを抑える「ブレーキの仕組み」のことです。PD-1やCTLA-4、LAG-3などが代表例です。がん細胞は、このブレーキを利用してT細胞の攻撃をかわします。免疫チェックポイント阻害薬は、このブレーキを外すことで、T細胞ががんを再び攻撃できるようにする薬です。ニボルマブ(抗PD-1抗体)などが知られています。
PD-1とLAG-3の二重ブロックという証拠
この「重ねがけされたブレーキ」を臨床で乗り越えられることを示した強い証拠が、未治療の進行期の悪性黒色腫(あくせいこくしょくしゅ/メラノーマ)の患者さん714名を対象とした国際共同試験「RELATIVITY-047」です。この試験では、抗PD-1抗体のニボルマブ単独と、ニボルマブに抗LAG-3抗体のレラトリマブを加えた二重ブロックが比較されました[6]。
中央値で33.8か月の追跡データにおいて、併用群は単独群と比べて、病気が進まない期間(無増悪生存期間・PFS)の中央値を4.6か月から10.2か月へと2倍以上に延長しました(ハザード比0.79)。客観的な奏効率も併用群43.7%、単独群33.7%と差がつきました[6]。さらに長期の4年時点の解析でも、4年間病気が進まなかった割合は併用群30.6%対単独群23.6%、生存していた割合は52.0%対42.8%と、持続的な利益が確認されています[7]。
💡 なぜ「二重ブロック」が意味を持つのか
疲弊が進んだT細胞は、PD-1だけでなくLAG-3など複数のブレーキを同時に踏んでいます。PD-1という1つのブレーキを外すだけでは、他のブレーキが効いたままのため、十分に力を取り戻せないことがあります。RELATIVITY-047は、PD-1とLAG-3という2つのブレーキを同時に外すことで、より多くの患者さんで抗腫瘍効果を引き出せることを示しました。疲弊の分子メカニズムの理解が、そのまま治療戦略に翻訳された好例です。
なお、こうした薬の効果や安全性、使える範囲は、がんの種類や病状、国や時期によって異なり、今後も更新されていきます。ここでは「疲弊の仕組みを標的にする」という考え方の一例として紹介しています。実際の治療の判断は、必ず主治医とご相談ください。
9. 次世代のCAR-T ─ 疲弊に「強い」細胞をつくる
CAR-T細胞療法(キメラ抗原受容体T細胞療法)は、患者さん自身のT細胞を取り出して、がんを狙い撃つ受容体を人工的に組み込み、体に戻す治療です。血液のがんで大きな成功を収めた一方、固形がんでは、TMEの強い抑制と長引く刺激によって、CAR-T細胞が急速に疲弊してしまうという壁に直面しています。この壁を破るため、ゲノム編集や合成生物学の技術で、細胞そのものを「疲弊に強く」つくり替える研究が進んでいます。
c-Junを足してバランスを立て直す
前の章で見たように、疲弊の一因はAP-1(c-Jun)の働きの低下でした。そこで、CAR-T細胞の中にc-Junをたくさん作らせる戦略が開発されました。増やしたc-Junが、疲弊を動かす異常な因子の組み合わせから抑制的な因子を追い出し、正常なNFAT-AP-1のバランスを強制的に取り戻します。その結果、c-Junを多く作るCAR-T細胞は、抗原がなくても続く「トニック信号」による疲弊に強くなり、IL-2を出す力を保ち、複数のマウスがんモデルで終末分化を抑えながら腫瘍の増殖を強く抑えました[3]。生物学の基礎的な欠陥を、工学的に「補う」画期的な手法です。
TOXやNR4AをCRISPRで取り除く
疲弊プログラムの下流を直接断ち切る戦略として、CRISPR-Cas9という遺伝子編集の道具で、疲弊の司令塔であるTOXやNR4A遺伝子を破壊(ノックアウト)するアプローチも実証されています。NR4Aの3つの遺伝子をすべて欠損させたCAR-T細胞は、長く刺激されても抑制プログラムが起動せず、TMEの中で強い攻撃力と増える力を保ち、頑強な抗腫瘍効果を発揮しました。
ブレーキを「アクセル」に変える人工受容体
細胞膜の上で信号を逆転させる戦略もあります。PD-1/CD28キメラスイッチ受容体は、外側にPD-1、内側に強力な共刺激分子CD28を持たせた人工受容体です。ふつう、T細胞のPD-1ががん側のPD-L1と結合すると抑制の信号が伝わりますが、この受容体では、PD-L1との結合が細胞内でCD28を介した「活性化・生存の信号」に変換されます。TMEの抑制的なPD-L1が、むしろCAR-T細胞を強く刺激する燃料に変わるのです。ブレーキをアクセルに変える、という発想の転換です。
共刺激ドメインで代謝を調整する
CARに組み込む共刺激ドメイン(CD28か4-1BBか)の違いも、疲弊への強さを左右します。CD28型は解糖系を優先して急速に強く働く反面、疲弊しやすい傾向があります。対照的に4-1BB型は、ミトコンドリアの働きを高め、長生きするメモリー型への分化を助け、長期の腫瘍制御で持続力を発揮します。患者さんの病状やがんの性質に応じて、これらを使い分けることが、疲弊を避ける鍵になります。
エピジェネティックな傷跡を書き換える
さらに先を行く研究として、疲弊のエピジェネティックな固定そのものを解除しようとするエピゲノム編集(CRISPR-dCas9等)が注目されています。DNAを切らない不活性型のCas9(dCas9)に、メチル化やアセチル化を操作する酵素をつないで、狙った遺伝子座のクロマチンの状態を、DNA配列を変えずに書き換える技術です。DNAを切るノックアウトと違い、遺伝子発現を可逆的・動的に制御できるため、細胞治療のより安全で精密な選択肢になりうると期待されています。疲弊細胞で閉じてしまった攻撃遺伝子を特異的に開き直し、細胞を「若返らせる」研究が急速に進んでいます。これらはまだ基礎研究や前臨床が中心の段階ですが、疲弊の不可逆性という壁を越える次世代の入口として、大きなフロンティアを開いています。
10. 遺伝診療との接点 ─ 用語を臨床にどうつなぐか
T細胞疲弊は、免疫学の基礎概念ですが、遺伝診療とも接点があります。それは、がん免疫療法の効き目を予測するという文脈です。がんの中にTpex(増える力を残した前駆細胞)がどれくらいいるか、腫瘍がPD-L1をどれくらい出しているか、T細胞のエピジェネティックな状態がどうなっているか――こうした「バイオマーカー」を、遺伝子の発現やマルチオミクス(複数の分子情報を統合する解析)で読み解く研究が進んでいます。免疫の状態を分子のレベルで測ることは、個別化医療の一部になりつつあります。
また、疲弊に関わる分子には、遺伝子として理解されているものが数多くあります。たとえば免疫チェックポイントに関わるCD96遺伝子のように、T細胞の働きを調整する受容体をコードする遺伝子が知られています。疲弊という現象を「どの遺伝子が、どう使われているか」という視点で眺めることは、遺伝子の機能を読み解く訓練にもなります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった結果がご本人やご家族にとってどういう意味を持つのか、といった点です。なお、T細胞疲弊そのものは、がん免疫療法の研究が中心の領域であり、日常の遺伝子検査で直接測る対象ではありません。ここでは「免疫と遺伝子の働きをどう読み解くか」という理解の土台として位置づけています。正確な診断に基づいて、次の一歩を選んでいただくための知識の一つとして、お役立てください。
よくある誤解
誤解①「疲弊は一時的な疲れ」
疲弊は「働きすぎて休んでいる」状態ではなく、遺伝子の使われ方が書き換えられた独自の分化状態です。だからこそ、深く進むと元に戻りにくく、単に休ませても回復しません。
誤解②「PD-1をブロックすれば元に戻る」
チェックポイント治療は、疲弊細胞を元に戻すというより、増える力を残したTpexを増やすことで効いています。終末疲弊した細胞そのものが、力を取り戻すわけではありません。
誤解③「疲弊は体に悪いだけ」
疲弊は、もともと免疫の暴走から体を守る「安全弁」として進化したものです。がんに利用されると困りますが、それ自体は自己防衛の仕組みでもあります。
誤解④「疲弊は克服できない」
c-Jun過剰発現やCRISPRによる編集、エピゲノム編集など、疲弊に強い細胞をつくる研究が急速に進んでいます。不可逆と思われた傷跡を書き換える試みも始まっています。
まとめ ─ 疲弊の理解が免疫療法を動かす
T細胞疲弊(Exhaustion)は、もともと免疫の暴走から体を守るために進化した自己防衛の仕組みですが、がんや慢性感染では、病気の進行を許す最大の壁になります。かつては単なる「機能の枯渇」と見なされていた疲弊は、いまでは独自の転写・エピジェネティックプログラムに支配され、前駆細胞(Tpex)から終末疲弊細胞(Tex)へと枝分かれする、固有の分化の道であることがわかりました。司令塔TOXの働き、NFAT-AP-1バランスの崩れ、そしてエピジェネティックな傷跡が、この状態を強く固定しています[4][5]。
臨床では、RELATIVITY-047が示したように、PD-1とLAG-3という複数のブレーキを同時に外すことで、治療成績を改善できることが実証されました[6]。さらに、c-Junの過剰発現やPD-1/CD28キメラスイッチ受容体といった合成生物学、そしてCRISPR-dCas9によるエピゲノム編集は、細胞そのものを「疲弊に強く」つくり替える力をもたらしています[3]。患者さん一人ひとりのT細胞の状態を精密に解析し、最適な細胞療法を届ける――疲弊の分子基盤の解明は、がん免疫療法の次の飛躍を牽引する、確かな道標になっています。
よくある質問(FAQ)
Q1. T細胞疲弊とは何ですか?
T細胞疲弊(Exhaustion)とは、がんや慢性のウイルス感染のように、敵の刺激が長く続いた結果、キラーT細胞などが本来の攻撃力を段階的に失っていく機能不全の状態です。単なる疲労ではなく、遺伝子の使われ方が書き換えられた独自の分化状態である点が特徴です。疲弊した細胞は、PD-1などのブレーキ役の受容体を複数まとめて表面に出し、サイトカインを出す力やがん細胞を殺す力が下がっていきます。
Q2. 疲弊は「疲れ」とは違うのですか?
違います。「疲れ」は休めば回復しますが、疲弊はエピジェネティクス(遺伝子の使われ方)そのものが書き換えられた状態で、深く進むと休んでも元に戻りにくくなります。実際、C型肝炎ウイルスを薬で完治させ、ウイルスが体から消えたあとでも、疲弊のエピジェネティックな「傷跡」が残ることが報告されています。だからこそ、疲弊は独立した分化状態として扱われます。
Q3. TpexとTexの違いは何ですか?
Tpex(前駆細胞様疲弊T細胞)は、TCF-1という因子を持ち、自分を増やす力を残した「幹細胞のような」細胞です。免疫チェックポイント阻害薬に応じて増えるのは、主にこのTpexです。一方Tex(終末分化型疲弊T細胞)は、TOXが高く出て、複数のブレーキ役を並べ、攻撃力も増える力も失った細胞です。チェックポイント治療をしても、Texそのものが力を取り戻すことはありません。
Q4. 免疫チェックポイント阻害薬は疲弊とどう関係しますか?
免疫チェックポイント阻害薬(抗PD-1抗体など)は、疲弊細胞が出しているブレーキを外す薬です。ただし、疲弊した細胞を元に戻すというより、増える力を残したTpexを増やすことで効いています。疲弊が進んだ細胞はPD-1以外にもLAG-3やTIM-3など複数のブレーキをかけているため、進行例では複数のブレーキを同時に外す併用療法が試みられています。治療の判断は必ず主治医とご相談ください。
Q5. 疲弊は克服できるのですか?
克服に向けた研究が急速に進んでいます。CAR-T細胞にc-Junを多く作らせて疲弊に強くする方法、CRISPRでTOXやNR4Aを取り除く方法、ブレーキをアクセルに変える人工受容体、そしてエピゲノム編集で傷跡そのものを書き換える試みなどです。多くはまだ基礎研究や前臨床の段階ですが、不可逆と思われてきた疲弊を乗り越える道筋が見え始めています。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Intratumoral Tcf1+PD-1+CD8+ T Cells with Stem-like Properties Promote Tumor Control in Response to Vaccination and Checkpoint Blockade Immunotherapy. Immunity. 2019. [Immunity 50:195-211]
- [2] Defining CD8+ T cells that provide the proliferative burst after PD-1 therapy. Nature. 2016. [PubMed 27501248]
- [3] c-Jun overexpression in CAR T cells induces exhaustion resistance. Nature. 2019. [PubMed 31802004]
- [4] TOX transcriptionally and epigenetically programs CD8+ T cell exhaustion. Nature. 2019. [PMC6713202]
- [5] Epigenetic scars of CD8+ T cell exhaustion persist after cure of chronic infection in humans. Nat Immunol. 2021. [PubMed 34312547]
- [6] Three-Year Overall Survival With Nivolumab Plus Relatlimab in Advanced Melanoma From RELATIVITY-047. J Clin Oncol. 2025. [PubMed 39671533]
- [7] Nivolumab plus relatlimab in advanced melanoma: RELATIVITY-047 4-year update. Eur J Cancer. 2025. [PubMed 40513285]






