

目次
- 1 1. Rhebとは ─ 脳で見つかった「成長のスイッチ」
- 2 2. RhebはどうやってmTORC1を動かすのか
- 3 3. アクセルとブレーキ ─ Rhebの珍しい制御のしくみ
- 4 4. Rhebはどこで働くのか ─ リソソームから核まで
- 5 5. Rheb1とRheb2 ─ よく似た2つの兄弟の役割の違い
- 6 6. mTORC1以外の顔 ─ 細胞死の制御と神経の再生
- 7 7. Rhebの変異とてんかん ─ 限局性皮質異形成II型・片側巨脳症
- 8 8. Rhebとがん ─ 珍しいけれど特徴的な変異
- 9 9. Rhebを狙う新しい薬 ─ NR1という挑戦
- 10 10. 遺伝診療との接点 ─ Rhebの理解が診断にどう役立つか
- 11 よくある誤解
- 12 まとめ ─ 小さなスイッチが照らす、しくみと治療のつながり
- 13 よくある質問(FAQ)
- 14 参考文献
- 15 関連記事

📍 クイックナビゲーション
細胞は、栄養やホルモンの信号を受け取って「いま成長してよいか」を絶えず判断しています。その判断の中心にあるのがmTORC1(エムトールシーワン)という装置で、これを直接オンにする分子スイッチがRheb(レブ/Ras Homolog Enriched in Brain)です。Rhebは、がん遺伝子として有名なRasと同じ仲間(低分子量Gタンパク質)に属する小さなタンパク質で、脳をはじめ全身の細胞で成長・代謝の司令塔として働いています。近年、このRhebの遺伝子に生じた変化が、子どもの難治性てんかんの原因になったり、一部のがんを引き起こしたりすることがわかってきました。さらに、Rhebを直接狙う新しいタイプの薬も研究が進んでいます。この記事では、Rhebとは何か、どのように細胞の成長を制御しているのか、そして遺伝性の病気や最新の治療とどうつながるのかを、臨床遺伝学の観点から解説します。
Q. Rhebとは何ですか?まず結論だけ知りたいです
A. Rhebとは、細胞の成長を統括する装置「mTORC1」を直接オンにする分子スイッチで、Rasと同じ仲間の低分子量Gタンパク質(小さなGタンパク質)です。GTPという分子と結びつくと「オン」、それが分解されると「オフ」になり、この切り替えで細胞に「成長してよい」という信号を送ります。ふだんはブレーキ役のTSC複合体によって厳しく抑えられていますが、脳の一部の細胞でRhebの体細胞変異が起きるとスイッチが入りっぱなしになり、難治性てんかんの原因(限局性皮質異形成II型など)になることがあります。一部のがんとも関わり、Rhebを狙う新薬の研究も進んでいます。
- ➤正体 → Rasと同じ仲間の低分子量Gタンパク質。約21kDaの小さなタンパク質で、酵母からヒトまで広く保存されている
- ➤主な仕事 → 細胞の成長装置mTORC1を直接活性化する「オン専用スイッチ」
- ➤制御のしかた → アクセル(GEF)ではなく、ブレーキ役TSC複合体を外すことでオンになる、という珍しい仕組み
- ➤てんかんとのつながり → 脳の体細胞モザイク変異が、限局性皮質異形成II型・片側巨脳症の原因になる
- ➤治療への展望 → RhebのSwitch II領域を狙う新しい阻害薬NR1などが研究されている
🧬 Rhebの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・正式名 | レブ。Ras Homolog Enriched in Brain(脳に多く存在するRas類似タンパク質)の略。もともとラットの脳で活動依存的に発現が誘導される遺伝子として見つかった |
| 分類 | Rasスーパーファミリーに属する低分子量Gタンパク質(低分子量GTPアーゼ)。約21kDa |
| 主なはたらき | 細胞の成長装置mTORC1を直接活性化する。細胞増殖・細胞周期・オートファジー・エネルギー代謝の制御に関わる |
| ヒトのパラログ | Rheb1(7番染色体)とRheb2/RhebL1(12番染色体)の2種類。役割は同じではない |
| 関連する病気 | 限局性皮質異形成II型・片側巨脳症(難治性てんかん)、一部のがん(腎細胞がん等) |
| 医療との関わり | 体細胞モザイク変異による脳形成異常の原因遺伝子。mTORC1を狙う治療(ラパマイシン等)や新薬研究の標的 |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. Rhebとは ─ 脳で見つかった「成長のスイッチ」
Rhebは、細胞の中で信号を伝えるGタンパク質の一種です。もともとは、ラットの脳で神経の活動に応じてすばやく発現が高まる遺伝子として同定され、「脳に多く存在するRas類似タンパク質(Ras Homolog Enriched in Brain)」という名前が付けられました[1]。約21kDa(キロダルトン)という小さなタンパク質ですが、その役割は細胞の運命を左右するほど大きなものです。今日では、細胞の成長・増殖・エネルギー代謝を統括するmTORC1という装置を直接オンにする、もっとも重要な活性化因子として知られています[1]。
Rhebは、酵母からヒトまで、細胞に核を持つ生き物(真核生物)に広く保存されています。一方で、細菌などの原核生物には存在しません[1]。進化の非常に早い段階から受け継がれてきたという事実は、Rhebが生命の基本的なしくみに関わっていることを物語っています。インスリンなどのホルモン、アミノ酸の量、酸素の状態、細胞のエネルギー残高——こうしたさまざまな環境の情報を統合し、「いま成長すべきか、休むべきか」を細胞に伝える、いわば分子のスイッチとして働いているのです。
💡 用語解説:低分子量Gタンパク質とGTP
低分子量Gタンパク質(低分子量GTPアーゼ)とは、GTPというエネルギーを持った分子と結びついて「オン」、GTPがGDPに分解されると「オフ」になる、小さなスイッチ役のタンパク質です。がん遺伝子で有名なRasもこの仲間です。オンのときだけ相手の分子に信号を渡せるので、「GTPと結合しているかどうか」がスイッチの入り切りにあたります。Rhebは、このスイッチが「オン」のときにmTORC1を活性化します。
Rhebが属するRasファミリーのタンパク質は、いずれも「GTPと結合したオンの状態」と「GDPと結合したオフの状態」を行き来することで信号を制御します。ただし、後で詳しく述べるように、Rhebのスイッチの切り替え方は、同じ仲間のRasとはかなり違った、独特のものです。この「ふつうと違う制御のしくみ」こそが、Rhebを理解するうえでの一番の見どころになります。
2. RhebはどうやってmTORC1を動かすのか
Rhebの一番大切な仕事は、mTORC1という巨大なタンパク質の複合体を活性化することです。mTORC1は、細胞が「成長してよい」と判断したときに、タンパク質の合成を促し、細胞を大きくし、増殖のスイッチを入れる中心的な装置です。Rhebは、このmTORC1に直接くっついて、その働きを引き出します。近年、クライオ電子顕微鏡という技術で、活性化した状態のRhebとmTORC1がくっついた立体構造が3.4オングストロームという高い解像度で解明され、そのしくみの全体像が見えてきました[2]。
Rhebが結合する場所には特徴があります。RhebはmTORC1の「反応を起こす中心部(キナーゼ活性中心)」から物理的に離れた場所にくっつきます[2]。ところが、この離れた場所への結合が引き金となって、mTOR分子の全体に大きな形の変化が波及します。ふだんmTORC1は自分自身を抑え込む「折りたたまれた」形をとっていますが、Rhebが結合するとその自己抑制が解除され、反応の中心部が基質(4E-BP1やS6K1といった、成長の信号を次に伝えるタンパク質)を処理しやすい配置に組み変わるのです[2]。
💡 用語解説:アロステリック(離れた場所からの制御)
タンパク質の「働く中心」から離れた場所に別の分子がくっつくことで、タンパク質全体の形が変わり、働きがオン・オフされる仕組みをアロステリック調節といいます。鍵穴に鍵を差し込むのではなく、少し離れたレバーを引くと鍵穴側が開く、というイメージです。Rhebは、まさにこのアロステリックな仕組みでmTORC1のロックを外しています。
がんで見つかるmTORの活性化変異の多くは、この「自己抑制の形」を保つための部品にあたる場所に集まっています[2]。つまり、そうした変異は、Rhebが結合したときと同じ「自己抑制が外れた状態」を、Rhebなしでも勝手に作り出してしまうわけです。Rhebによる正常な活性化のしくみを知ることは、そのまま、病気で経路が暴走するしくみを理解することにつながります。
Rheb自身は、6本のβシートと5本のαヘリックスからなる小さな構造を持ち、GTPと結合した状態とGDPと結合した状態とで、2か所の「スイッチ領域」(Switch I・Switch II)の形が変化します[3]。GTPと結合したオンのRhebは、mTORC1をしっかり抱え込める形をとり、強く相互作用できるようになります[3]。とくにSwitch Iという領域は、GTPが結合するとmTOR側の特定の部分と直接触れ合い、これが「中間状態」から「完全にオンの状態」への移行を引き起こす引き金になることが、構造解析からわかっています[4]。このSwitch II領域は、後で述べる新しい薬の標的としても重要になります。
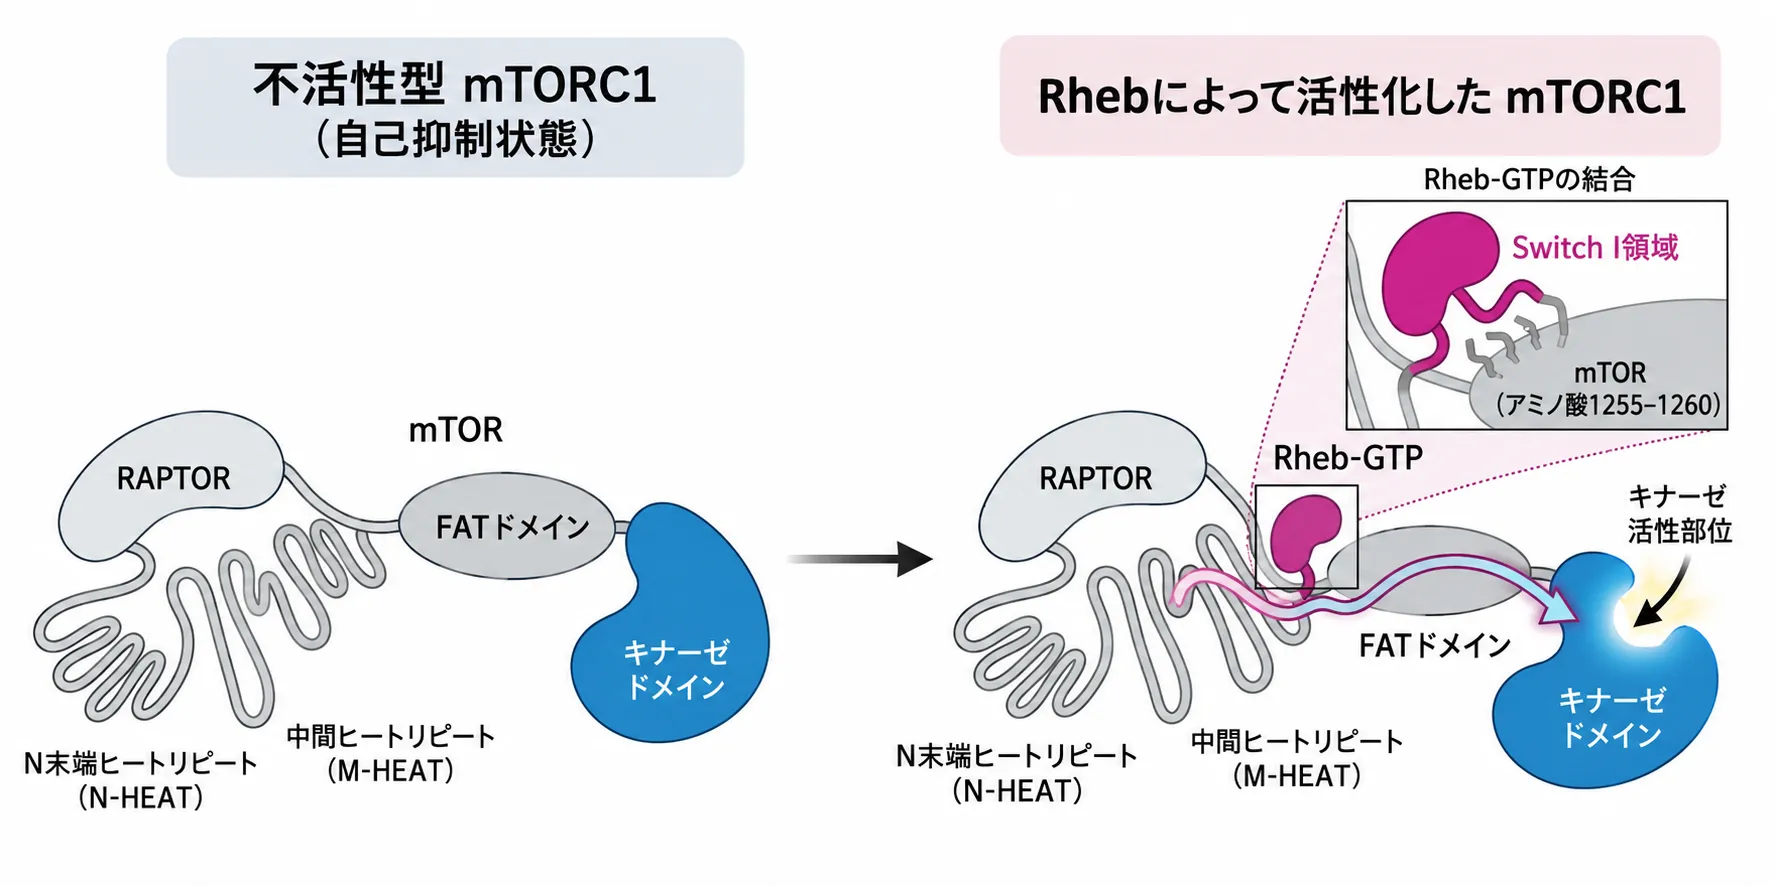
RhebはmTORの反応中心(キナーゼ活性部位)から離れた場所に結合します。左の不活性型では、mTORが自分自身を抑え込む「折りたたまれた」形をとっています。右のようにRheb-GTPが結合すると、その離れた場所での結合が引き金となってmTOR全体の形が変わり(アロステリックな変化)、キナーゼ活性部位が基質を処理できる配置に組み変わって活性化します。拡大図は、RhebのSwitch I領域がmTORのアミノ酸1255〜1260付近と直接触れ合う様子を示しています。
🩺 院長コラム【小さなスイッチが決める大きな運命】
私はもともと医学部で分子生物学の授業が一番好きで、いまでも自分を「分子オタク」と呼んでいます。Rhebのようなタンパク質を眺めていると、たった21kDaの小さな分子が、細胞に「育て」と命じる巨大な装置のスイッチを握っている、その設計の妙にいつも驚かされます。
そして臨床遺伝専門医として見ると、この「スイッチ」の話は決して基礎研究だけの話ではありません。スイッチが入りっぱなしになる、たった一つの遺伝子の変化が、子どもの脳の形と、その後のてんかんを左右する。分子のしくみと患者さんの症状が地続きであることを、Rhebはとてもわかりやすく教えてくれます。
3. アクセルとブレーキ ─ Rhebの珍しい制御のしくみ
ふつう、低分子量Gタンパク質のオン・オフは、2種類の助っ人によって細かく調整されます。GTPを分解して「オフ」にするのを助けるGAP(ギャップ)と、GDPをGTPに入れ替えて「オン」にするのを助けるGEF(ジェフ)です。ところが、Rhebのオン・オフの調整は、同じRasファミリーの他のメンバーとは根本的に違う、ちょっと変わったやり方をしています。
ブレーキ役はTSC複合体 ─ 結節性硬化症の原因遺伝子
Rhebのブレーキ役(GAP)として働くのが、TSC複合体です。これは、結節性硬化症(けっせつせいこうかしょう、TSC)という病気の原因遺伝子がつくるタンパク質、TSC1(ハマルチン)とTSC2(チュベリン)に、TBC1D7という部品が加わってできています[3]。TSC複合体は、TSC2の働きによってRhebのGTP分解を約50倍に加速し、Rhebを「オフ」に傾けます[1]。つまり、TSC複合体が正常に働いているあいだは、Rhebは抑えられ、mTORC1も過剰に働きません。
💡 用語解説:GAPとGEF ─ ブレーキとアクセル
GAPはGTPの分解を助けてスイッチを「オフ」にする係(ブレーキ)、GEFはGDPをGTPに交換してスイッチを「オン」にする係(アクセル)です。多くのGタンパク質は、このブレーキとアクセルの両方で細かく制御されます。ところがRhebには、はっきりしたアクセル役(GEF)が見つかっていません。ここがRhebの大きな特徴です。
このTSC2のブレーキのかけ方も、実は変わっています。ふつうのRas用のブレーキ役(GAP)は、「アルギニンフィンガー」と呼ばれる指のような部品を差し込んでGTPの分解を助けます。ところがRhebは、その差し込み口にあたる位置にもともとアルギニンを持っているため、この標準的なやり方が使えません[1]。そこでTSC2は、代わりに「アスパラギン・サム(asparagine thumb)」と呼ばれる別の部品(Asn1643というアミノ酸)を使ってGTPの分解を助けます[5]。Rhebのブレーキは、普通とは違う特別な設計になっているのです。
見つからないアクセル役 ─ Rhebは「ブレーキを外す」ことでオンになる
Rhebの生物学で長年の謎とされてきたのが、はっきりしたアクセル役(GEF)が見つかっていないことです[1]。かつてTCTPというタンパク質がRhebのアクセル役ではないかと報告された時期もありましたが、その後の厳密な検証で、両者は相互作用せず、mTORC1への影響も確認できないことが示され、この説は否定されました[1]。
なぜアクセル役がいなくても大丈夫なのでしょうか。それは、Rhebがもともと非常に高い割合(20%以上)で自発的にGTPと結合した状態を保っているからです[1]。つまりRhebは、放っておいても半ばオンになりやすい性質を持っています。だからこそ、環境の信号は主に「TSC2というブレーキを外す」ことを通じてRhebをオンに傾けます。Rhebの活性化は、アクセルを踏み込むことではなく、ブレーキを解除することに頼っている——これがRhebの制御の一番の特徴です。この理解は、後で述べる「なぜTSC複合体の異常がmTORC1の暴走につながるのか」を考えるうえで欠かせません。
4. Rhebはどこで働くのか ─ リソソームから核まで
RhebがmTORC1をうまく活性化するには、細胞内の適切な「場所」に居る必要があります。長いあいだ、その舞台は主にリソソーム(細胞内の消化・リサイクル工場)の表面だと考えられてきました[3]。Rhebは、C末端という「しっぽ」の部分にファルネシル化という脂質の飾り付け(プレニル化の一種)を受けます[3]。この脂ののりを目印にして、Rhebはリソソームなどの膜に張り付き、そこでアミノ酸の信号によって呼び寄せられたmTORC1と出会うのです。
💡 用語解説:ファルネシル化(脂質の飾り付け)
タンパク質ができあがった後に、化学的な飾りを付け加えて働きや居場所を調整することを翻訳後修飾といいます。ファルネシル化は、その一種で、タンパク質のしっぽに「ファルネシル」という脂の鎖を付ける修飾です。脂は水になじまず膜になじむので、この飾りが付いたタンパク質は細胞内の膜に張り付きやすくなります。Rhebはこの飾りを使ってリソソーム膜に居場所を得ます。
ただしRhebの膜へのくっつき方は、他のRasファミリーと比べるととても弱く、一時的なものです[6]。この「弱いくっつき方」はむしろ好都合で、Rhebが細胞内のあちこちを動き回るのを可能にしています。また、アミノ酸が足りない状態から栄養を与え直すと、mTORはリソソームへと移動しますが、Rheb自身の局在は大きく変化しないことが示されています[6]。
近年、この「Rhebはリソソームで働く」という定説をくつがえす発見がありました。オンの状態のRhebが細胞の核の中にも存在し、核の中でmTORC1の働きを保つのに欠かせない役割を果たしていることがわかったのです[8]。薬でファルネシル化を止めると、リソソームでのmTORC1の働きは予想どおり下がるのに、核の中のmTORC1の働きは下がりませんでした[8]。さらに、ファルネシル化される部分をあらかじめ取り除いたRhebは、むしろ核に集まって、核の中のmTORC1を強く活性化しました[8]。細胞は、脂の飾りの有無を使い分けることで、リソソームでの代謝の制御と、核の中での遺伝子発現の制御という、2つのmTORC1の働きを別々にコントロールしている可能性が見えてきたのです。
5. Rheb1とRheb2 ─ よく似た2つの兄弟の役割の違い
ヒトのゲノムには、進化の途中で遺伝子が複製された結果、よく似た2つのRheb遺伝子があります。Rheb1とRheb2(別名RhebL1)です。両者はアミノ酸レベルで約51%が同じで[9]、実験的にどちらも過剰に働かせるとmTORC1経路を活性化できます。しかし、体の中での発現パターンや、発生における重要さ、実際の役割には、はっきりした違いがあります。
🧬 Rheb1とRheb2(RhebL1)の比較
| 項目 | Rheb1 | Rheb2(RhebL1) |
|---|---|---|
| 染色体の位置(ヒト) | 7番染色体(7q36) | 12番染色体(12q13.1) |
| 発現する場所 | 全身に広く(骨格筋・心筋・腸などで特に多い) | 脳・神経系にかたよって多い |
| 個体発生での重要さ | 必須。欠くと胎生致死(胎生中期までに死亡) | 欠いても正常に発育できる |
| 働きを抑えたとき | mTORC1の下流(S6)のリン酸化が大きく低下する | S6のリン酸化にほとんど影響しない |
※発生における必須性・発現パターンの違いは、マウスを用いた研究に基づく知見です。
マウスの研究は、Rheb1の絶対的な重要さをはっきり示しています。Rheb1を生まれつき欠くマウスの胚は、研究系によって差はありますが、胎生中期までに死亡します[10]。胚は全体的に小さく、細胞死が目立ち、mTORC1の下流にあたるS6や4E-BP1のリン酸化(成長の信号)が大きく抑えられています[10]。一方、Rheb2(RhebL1)を欠くマウスは、正常に育ち、子孫も残せます[10]。また、培養細胞でRheb1の働きを抑えるとS6のリン酸化が強く下がるのに対し、RhebL1を抑えても影響が出ないことも確かめられています[11]。少なくとも通常の状態では、Rheb2はRheb1の単純な予備ではなく、別の役割を担っていると考えられています。
6. mTORC1以外の顔 ─ 細胞死の制御と神経の再生
Rhebは、mTORC1を活性化するだけの分子ではありません。細胞の生死を決めるアポトーシス(プログラムされた細胞死)の制御や、神経の軸索の再生といった、別の場面でも重要な働きをします。
細胞を死ににくくする ─ FKBP38を介した働き
Rhebは、アポトーシスの制御に直接関わることができます。その相手が、FKBP38というタンパク質です。FKBP38は、ミトコンドリアや小胞体という細胞小器官にいて、細胞死を防ぐ働きを持つタンパク質(Bcl-2やBcl-XL)を引き寄せ、その働きを抑える方向に調整しています[12]。
成長因子や栄養が豊富にある環境では、オンの状態のRhebがFKBP38に直接結合し、Bcl-2やBcl-XLをFKBP38から引きはがします[12]。解放された細胞死を防ぐタンパク質が働くことで、細胞はさまざまな死の刺激に対して抵抗力を持つようになります[12]。つまりRhebは、「成長せよ」という信号を送るのと同時に、「まだ死ぬな」という信号も送っているのです。栄養が足りているときに細胞が増え、生き延びやすくなるのは、理にかなった仕組みだといえます。
傷ついた神経を再生させる ─ Rheb(S16H)の可能性
大人の脳や脊髄の神経(中枢神経)は、いったん傷つくと再生する力がとても弱いことが、治療上の大きな壁になっています。ところが、常にオンの状態になるように改変したRheb(Rheb(S16H)という変異型)を使うと、この壁を越えられる可能性が示されています。Rheb(S16H)は、GTP結合型の割合が高く、TSC1/TSC2によるGAP活性に抵抗性を示すため、恒常活性型として広く用いられています[13]。
アデノ随伴ウイルス(AAV)を使ってRheb(S16H)を成体の神経細胞に導入した動物研究では、損傷後の軸索再伸長や神経保護が報告されています[13]。これは基礎研究の段階ですが、Rhebの活性を高める操作が神経回路の修復研究につながりうることを示す知見です。同じ「Rhebのオンが続く」という現象が、次に述べるように、場所と細胞によっては病気の原因にもなる——同じスイッチの二面性が、ここによく表れています。
7. Rhebの変異とてんかん ─ 限局性皮質異形成II型・片側巨脳症
Rhebの遺伝子に生じた変化は、mTORC1の信号を時間的・空間的に乱し、深刻な大脳皮質の形成異常を引き起こすことがあります。その代表が、限局性皮質異形成(げんきょくせいひしついけいせい、FCD)II型と、病因を共有する関連する皮質形成異常である片側巨脳症(へんそくきょのうしょう、HME)です[14]。
FCD II型やHMEは、大脳皮質の層構造が乱れ、異常に大きな神経細胞(異形ニューロン)やバルーン細胞と呼ばれる細胞が現れる病気で、小児期の薬剤抵抗性てんかん(薬でおさえにくいてんかん)のもっとも主要な原因の一つです[14]。従来、これらはMTORやTSC1/2、DEPDC5などの遺伝子の変化による「mTORオパチー(mTOR経路の病気の総称)」として理解されてきました。近年、非常に精度の高い遺伝子解析(超深度シーケンス)によって、Rheb遺伝子の脳だけに生じた体細胞変異(モザイク変異)が、これらの病気を直接引き起こすことがわかってきました[14]。
💡 大切なポイント:Rhebの変異は「遺伝子が原因でも、遺伝はしない」
FCD II型やHMEの多くは、受精後の脳の発生の途中で、一部の神経のもとになる細胞にだけRhebなどの体細胞モザイク変異が生じることで起こります。変異は脳の一部の細胞にとどまり、血液や卵子・精子には無いことが多いため、親から子へ受け継ぐ「遺伝性」とは仕組みが異なります。「遺伝子の変化が原因」ではあっても、「家族に遺伝する」とは限らない——ここが遺伝カウンセリングでとても大切になる点です。
💡 用語解説:ミスセンス変異とモザイク
ミスセンス変異とは、DNAの1文字が変わることでタンパク質の1つのアミノ酸が別のものに置き換わる変化です。モザイクとは、体の一部の細胞だけが異なる遺伝情報を持っている状態を指します。FCD II型では、脳の一部の細胞にだけRhebのミスセンス変異があるモザイクの状態になっています。
患者さんの脳の組織から見つかったRhebのミスセンス変異(p.Y35L、p.E40Vなど)は、RhebがGTPと結合する力を高め、その場所のmTORC1を過剰に活性化させます[14]。注目すべきことに、こうした変異を持つ細胞の割合(モザイクの割合)は、脳の病変の大きさと直接的に関係していることが示されています。ごく狭い範囲にとどまるFCDから、脳の半分全体に及ぶHMEまで、重症度に幅があるのは、この変異細胞の割合の違いによるものと考えられています[15]。
動物モデルでも、胎児期のマウスの脳にRhebのY35L変異を導入すると、異形ニューロンの形成、神経細胞の移動の遅れ、そして脳波の異常とてんかん発作という、FCD II型そっくりの状態が再現されます[14]。重要なのは、これらの異常がmTOR阻害薬であるラパマイシンの投与によって大きく改善したことです[14]。原因がmTORC1の過剰活性化にあることの、力強い裏づけといえます。現在では、てんかんの原因部位を調べるために留置される脳内電極に付着したごく微量の脳組織から、mTOR経路遺伝子の低頻度体細胞変異を検出できる可能性が示されています。ただし、この報告で実際に検出されたのはAKT3およびDEPDC5の変異であり、RHEB変異の電極付着組織からの検出が実証されたわけではありません[16]。
8. Rhebとがん ─ 珍しいけれど特徴的な変異
ヒトのがんでRhebそのものの変異が見つかる頻度は、Ras(KRASなど)と比べるとまれです。しかし、複数のヒトがんでは、RHEBの過剰発現や遺伝子座の増幅が報告されています[17]。さらに、腎臓のがんの一種(淡明細胞型腎細胞がん)などでは、Rheb Y35Nという発がん性の変異が見つかっています[18]。
このY35N変異は、がんの生物学的に非常に興味深い特徴を持っています。一般的な発がん性のRas変異(G12Vなど)は、「自分でGTPを分解する力を完全に失う」ことでオンになりっぱなしになります。ところがRheb Y35N変異は、自分でGTPを分解する力はむしろ高まっているのに、TSC2(ブレーキ役)による分解の助けだけをまったく受けつけなくなるのです[18]。つまり、ブレーキが効かなくなることでオンの状態が優位になり、mTORC1が暴走します。前の章で述べた「Rhebはブレーキを外すことでオンになる」という特徴を思い出すと、この変異がなぜ強力なのかがよくわかります。ブレーキそのものを無効化してしまうからです。
💡 用語解説:オンコジーン(がん遺伝子)
オンコジーン(がん遺伝子)とは、変化することで細胞を無秩序に増殖させ、がんの原因となる遺伝子のことです。Rasが代表例です。Rhebも、Y35Nのような変異でmTORC1を暴走させるとき、がん遺伝子として振る舞います。ただしRhebのがん変異は、Rasに比べるとずっとまれです。
なお、当院の院長は、がん薬物療法専門医の資格を持つ臨床遺伝専門医として、がんに関わる遺伝子の変化を文献に基づいて解説しています。がんとRhebの関わりは研究が進んでいる分野であり、ここでは病気のしくみを理解するための情報として位置づけています。
9. Rhebを狙う新しい薬 ─ NR1という挑戦
mTORC1の暴走は、がん・てんかん・代謝の病気・神経の病気など、幅広い重い病気の根っこにあります[19]。現在使われているmTOR阻害薬のラパマイシン(およびその仲間)は、mTORの一部の働きを完全には止められないことや、長く使うとインスリン抵抗性などの副作用が出ることが課題でした[19]。そこで、上流にあるRhebそのものを直接止められないか、という発想が生まれました。
この難しい課題に挑んだのが、NR1という低分子化合物です[19]。表面がなめらかなGタンパク質を小さな薬で狙うのは非常に難しい(「くすりにしにくい=undruggable」)とされてきましたが、NR1はRhebのSwitch IIという領域にぴったり結合し、RhebによるmTORC1の活性化を選んで止めることに成功した、初めての化合物です[19]。
💡 NR1の魅力:mTORC1だけを止めて、mTORC2は残す
NR1の大きな利点は、細胞の成長に関わるmTORC1を強く抑えながら、もう一つの複合体mTORC2の働きにはほとんど影響しない点にあります[19]。mTORC2まで止めてしまうと副作用が出やすくなりますが、NR1はそこを避けられる可能性があります。マウスの実験でも、腎臓や骨格筋でmTORC1の働きを持続的に下げつつ、mTORC2への影響を避けられることが確認されています[19]。
同じように「くすりにしにくい」とされてきたRasファミリーでは、KRAS G12C阻害薬のように、特定の変異を狙い撃つ薬がすでに実用化されています。Rhebを狙うNR1は、まだ研究段階ではありますが、こうした「くすりにしにくい標的」を攻略する流れの一つとして、研究が進められています。将来的に、FCD II型のような難治性てんかんや、mTORC1が暴走するタイプのがんに対する、副作用の少ない分子標的治療につながる可能性が期待されています。なお、これらの薬はまだ臨床で使えるものではなく、治療に関する判断は必ず主治医とご相談ください。
10. 遺伝診療との接点 ─ Rhebの理解が診断にどう役立つか
Rhebは、日常の遺伝子検査でひんぱんに名前が挙がる遺伝子ではありません。それでも、Rhebの理解は遺伝診療にいくつかの大切な視点を与えてくれます。
第一に、「変異の場所と種類で、遺伝の仕方が変わる」という点です。FCD II型やHMEのように脳だけに生じた体細胞変異は、血液の検査では見つからないことが多く、通常のかたちでは家族に遺伝しません。同じ遺伝子でも、変異が体のどこにあるかによって、「子どもに伝わるのか」「きょうだいの再発リスクはどうか」という答えが変わります。遺伝医学では、同じ遺伝子でも変異の種類や存在する組織によって、診断・遺伝形式・家族への影響の評価が変わるという考え方が重要です。
第二に、「原因が一つの経路に集約されると、治療の糸口が見える」という点です。FCD II型・HME・結節性硬化症は、原因遺伝子こそ違っても、いずれもmTORC1経路の過剰活性化という共通点でつながっています(mTORオパチー)。だからこそ、ラパマイシンのようなmTOR阻害薬や、Rhebを直接狙う新薬が、複数の病気に横断的に効く可能性が出てきます。原因分子を正しく突き止めることが、治療の選択肢に直結するのです。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのかを、中立の立場で一緒に整理します。Rhebのような分子のしくみを理解しておくことは、正確な診断に基づいて選択肢を検討するための土台になります。なお、Rhebそのものは基礎研究が中心の分野であり、ここでは「遺伝子の働きをどう読み解くか」という理解の土台として位置づけています。
よくある誤解
誤解①「小さなタンパク質だから役割も小さい」
Rhebは約21kDaの小さな分子ですが、細胞の成長装置mTORC1を直接オンにする司令塔の一つです。Rheb1を欠いたマウスの胚は生き延びられません。大きさと重要さは別問題です。
誤解②「Rhebの変異=必ず遺伝する」
FCD II型やHMEの原因となるRhebの変異の多くは、脳の一部の細胞だけに生じた体細胞モザイク変異です。血液には無いことが多く、通常は家族に遺伝しません。「遺伝子が原因」でも「遺伝する」とは限りません。
誤解③「Rhebはアクセルで活性化する」
多くのGタンパク質はアクセル役(GEF)でオンになりますが、Rhebには明確なアクセル役が見つかっていません。Rhebはブレーキ役TSC2を外すことでオンに傾く、という珍しい仕組みで働きます。
誤解④「なめらかなGタンパク質は薬にできない」
かつてはそう考えられていましたが、RhebのSwitch II領域を狙うNR1のように、特定の場所に結合してmTORC1だけを止める化合物の研究が進んでいます。「くすりにしにくい標的」への挑戦は続いています。
まとめ ─ 小さなスイッチが照らす、しくみと治療のつながり
Rhebは、Rasと同じ仲間でありながら、細胞の成長・代謝・生存、そして神経回路の構築までを根っこで支える、精巧な分子スイッチです。クライオ電子顕微鏡による活性化のしくみの解明、TSC2による独特のブレーキの発見、そして核の中で働く新しい顔の発見は、Rhebの理解を大きく塗り替えてきました[2][8]。
同時に、子どもの難治性てんかんをもたらす脳の体細胞モザイク変異(FCD II型・HME)や、一部のがんの発がん変異(Y35N)の特定によって、Rhebの信号の乱れが深刻な病気の引き金になることが明らかになりました[14][18]。そして、RhebのSwitch II領域を狙い、mTORC2を残しながらmTORC1だけを抑えるNR1のような新しい化合物の登場は、既存薬とは異なる選択的なmTORC1制御法につながる可能性を示しています[19]。分子の小さなスイッチを深く知ることが、正確な診断と、より副作用の少ない治療の選択へとつながっていく——Rhebは、そのことをよく示してくれる分子です。
よくある質問(FAQ)
Q1. Rheb(レブ)とは何ですか?
Rheb(Ras Homolog Enriched in Brain)とは、細胞の成長を統括する装置mTORC1を直接オンにする分子スイッチで、がん遺伝子で有名なRasと同じ仲間の低分子量Gタンパク質です。約21kDaの小さなタンパク質で、酵母からヒトまで広く保存されています。GTPと結合すると「オン」になり、mTORC1を活性化して細胞に「成長してよい」という信号を送ります。
Q2. Rhebの変異は子どもに遺伝しますか?
多くの場合、遺伝しません。限局性皮質異形成II型や片側巨脳症の原因となるRhebの変異は、受精後の脳の発生の途中で、脳の一部の細胞にだけ生じる「体細胞モザイク変異」であることが多く、血液や卵子・精子には無いことが一般的です。そのため、通常のかたちでは家族に遺伝しません。「遺伝子が原因」ではあっても「遺伝する」とは限らない、という点が重要です。ただし個々のケースで状況は異なるため、詳しくは臨床遺伝専門医にご相談ください。
Q3. Rhebと結節性硬化症(TSC)はどう関係していますか?
結節性硬化症の原因遺伝子がつくるTSC1・TSC2は、Rhebのブレーキ役(GAP)として働き、Rhebをオフに保っています。結節性硬化症ではこのブレーキが壊れるため、Rhebがオンになりっぱなしになり、mTORC1が過剰に活性化して、さまざまな臓器に病変ができます。RhebとTSCは、同じmTORC1経路の「スイッチ」と「ブレーキ」の関係にあります。
Q4. Rheb1とRheb2の違いは何ですか?
ヒトにはよく似た2つのRheb遺伝子があります。Rheb1は全身に広く発現し、発生に必須で、欠くとマウスの胚は生き延びられません。一方Rheb2(RhebL1)は脳・神経系に多く、欠いてもマウスは正常に育ちます。培養細胞でも、Rheb1を抑えるとmTORC1の下流の信号が大きく下がるのに対し、Rheb2を抑えても影響が出にくいことが知られています。Rheb2はRheb1の単純な予備ではなく、別の役割を担っていると考えられています。
Q5. Rhebを狙う薬はもう使えるのですか?
まだ研究段階です。RhebのSwitch II領域に結合してmTORC1の活性化を選んで止めるNR1という化合物が報告されており、mTORC2を残しながらmTORC1だけを抑えられる可能性が注目されています。ただし、これは基礎研究・前臨床の段階であり、臨床で使える薬ではありません。mTOR経路を抑える薬としては、すでにラパマイシン(およびその仲間)が一部の病気で使われています。治療に関する判断は必ず主治医とご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Rheb G-Proteins and the Activation of mTORC1. [PMC4241847]
- [2] Mechanisms of mTORC1 activation by RHEB and inhibition by PRAS40. Nature. 2017. [PubMed 29236692]
- [3] Unraveling the Role of Ras Homolog Enriched in Brain (Rheb1 and Rheb2). [PMC10855792]
- [4] Structural basis for mTORC1 activation on the lysosomal membrane. [PMC12448111]
- [5] Structural insights into TSC complex assembly and GAP activity on Rheb. [PMC7804450]
- [6] Weak membrane interactions allow Rheb to activate mTORC1. [Mol Biol Cell]
- [7] Specific Activation of mTORC1 by Rheb G-protein in Vitro. J Biol Chem. 2009. [PubMed 19299511]
- [8] Rheb Regulates Nuclear mTORC1 Activity Independent of Farnesylation. [PMC9667991]
- [9] Recent Progress in the Study of the Rheb family GTPases. [PMC4134338]
- [10] Zou J, Zhou L, Du XX, et al. Rheb1 is required for mTORC1 and myelination in postnatal brain development. Dev Cell. 2011;20(1):97-108. doi:10.1016/j.devcel.2010.11.020. [PubMed 21238928]
- [11] Effects of RhebL1 silencing on the mTOR pathway. [PubMed 21655954]
- [12] Rheb GTPase controls apoptosis by regulating interaction of FKBP38 with Bcl-2 and Bcl-XL. [PubMed 20048149]
- [13] Therapeutic Potential of AAV1-Rheb(S16H) Transduction against Neurodegeneration. [Int J Mol Sci 2021]
- [14] A brain somatic RHEB doublet mutation causes focal cortical dysplasia type II. Exp Mol Med. 2019. [PubMed 31337748]
- [15] Gradient of brain mosaic RHEB variants causes a continuum of cortical dysplasia. [PMC7886042]
- [16] Detection of brain somatic mutations in focal cortical dysplasia. [PMC10261848]
- [17] Lu ZH, Shvartsman MB, Lee AY, et al. Mammalian target of rapamycin activator RHEB is frequently overexpressed in human carcinomas and is critical and sufficient for skin epithelial carcinogenesis. Cancer Res. 2010;70(8):3287-3298. [PMC2855737]
- [18] Point mutations of the mTOR-RHEB pathway in renal cell carcinoma. Oncotarget. 2015. [PubMed 26255626]
- [19] A small molecule inhibitor of Rheb selectively targets mTORC1 signaling. Nat Commun. 2018. [PubMed 29416044]






