

目次
- 1 1. 興奮収縮連関(EC coupling)とは ─ 電気を力に変えるしくみ
- 2 2. T管とトライアド ─ EC couplingの舞台となる構造
- 3 3. 骨格筋と心筋の違い ─ 「形」で伝えるか「カルシウム」で伝えるか
- 4 4. EC couplingに登場する分子たち
- 5 5. 最小の部品セット ─ 5つの分子で再現できる
- 6 6. T管はどう作られ、保たれるのか
- 7 7. SOCEとCEU ─ カルシウムを補充するもうひとつのしくみ
- 8 8. EC couplingが関わる病気
- 9 9. 遺伝診療との接点 ─ 用語を知ることがなぜ大切か
- 10 10. よくある誤解
- 11 まとめ ─ 電気と力をつなぐ精巧なしくみ
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
筋肉は、神経から届いた電気の信号を、ほんの一瞬で実際の収縮へと変換しています。この「電気を力に変える」しくみが興奮収縮連関(こうふんしゅうしゅくれんかん/EC coupling)です。その舞台になるのが、筋肉の細胞の奥深くまで電気を届ける横行小管(おうこうしょうかん/T管)と、そこに筋小胞体が寄り添ってできるトライアド(三つ組み)という小さな構造です。この記事では、EC couplingとは何か、T管やトライアドがどんな形をしていて、どの分子がどう働いているのか、そしてこのしくみの乱れがどんな遺伝性の病気につながるのかを、臨床遺伝学の観点も含めて解説します。
Q. 興奮収縮連関(EC coupling)とは何ですか?まず結論だけ知りたいです
A. 興奮収縮連関(EC coupling)とは、筋肉の細胞膜に伝わった電気的な興奮(活動電位)を、細胞の中のカルシウム濃度の上昇に変え、それによって筋肉を収縮させる一連のしくみのことです。骨格筋では、電気信号がT管を伝って細胞の奥まで届き、T管の膜にある電位センサー(CaV1.1)が形を変え、その構造変化が筋小胞体にあるカルシウムの出口(RyR1)へ伝わって開口を促します。心臓の筋肉では少し違うしくみが使われており、この違いが両者の性質を分けています。この装置に関わる遺伝子の変化は、悪性高熱症(あくせいこうねつしょう)などの病気の原因になります。
- ➤意味 → 電気の興奮を、カルシウムを介して筋肉の収縮に変換するしくみ
- ➤舞台 → 電気を筋肉の奥へ運ぶT管と、そこに筋小胞体が挟まってできるトライアド
- ➤主役 → 電位センサーのCaV1.1と、カルシウムの出口であるRyR1という2つの分子
- ➤骨格筋と心筋の違い → 骨格筋は「形の変化」で、心臓は「カルシウムそのもの」で信号を伝える
- ➤病気とのつながり → RYR1やCACNA1S、STAC3などの変化が悪性高熱症や先天性ミオパチーの原因になる
🧬 興奮収縮連関(EC coupling)の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | こうふんしゅうしゅくれんかん/EC coupling/ECC(excitation–contraction coupling) |
| 意味 | 筋細胞膜の電気的興奮を、細胞内カルシウム上昇と筋収縮へ変換する一連の過程 |
| 舞台となる構造 | 横行小管(T管)と、その両側を筋小胞体の終末槽が挟むトライアド(三つ組み) |
| 中心となる分子 | 電位センサー CaV1.1(CACNA1S)と、カルシウム放出チャネル RyR1(RYR1) |
| 骨格筋と心筋の違い | 骨格筋は構造変化を直接伝える「機械的共役」、心筋はカルシウムがカルシウムを呼ぶ「CICR」 |
| 医療との関わり | 悪性高熱症、RYR1関連ミオパチー、心不全などで、このしくみが破綻する |
※本記事は興奮収縮連関に関する医学用語解説です。特定の検査を勧めるものではありません。
1. 興奮収縮連関(EC coupling)とは ─ 電気を力に変えるしくみ
私たちが歩いたり、心臓が拍動したり、息を吸ったりできるのは、筋肉が縮むからです。その筋肉に「縮め」と命じるのは、神経から届く電気の信号です。興奮収縮連関(EC coupling)とは、この電気の信号(膜の興奮)を、筋肉の収縮という物理的な動きへと橋渡しする一連のしくみを指します[23]。
もう少していねいに順を追うと、こうなります。まず神経からの指令で筋肉の細胞膜に活動電位(膜を走る電気の波)が発生します。骨格筋では、この電気の波が横行小管(T管)という細い管を通って筋線維の奥まで一気に伝わります。T管の膜には電圧の変化を感じ取るセンサーがあり、それが引き金となって、細胞の中にあるカルシウムの貯蔵庫(筋小胞体)から大量のカルシウムイオンが放出されます。放出されたカルシウムが収縮装置にくっつくと、フィラメント同士が滑り込み、筋肉が縮む、という流れです[23]。
💡 用語解説:カルシウムイオンは「収縮のスイッチ」
筋肉の中では、カルシウムイオン(Ca²⁺)が収縮のオン・オフを切り替える鍵になっています。ふだんは筋小胞体という袋の中に厳重にしまわれていますが、電気の信号が届くとどっと外へ放出され、収縮装置の一部であるトロポニンCというタンパク質に結合します。すると、アクチンとミオシンという2種類のフィラメントが滑り合えるようになり、筋肉が縮みます。収縮が終わると、カルシウムはポンプ(SERCA)によって再び袋の中に戻され、筋肉はゆるみます[23][3]。
ここで大切なのが、骨格筋の場合、一回の収縮を始めるのに、細胞の外からカルシウムが流れ込む必要は必ずしもないという点です[2]。電位センサーそのものが形を変え、その形の変化が筋小胞体の出口へ直接伝わって扉を開ける——いわば「押しボタン式」に近いしくみです。この直接的なつながりこそ、骨格筋のEC couplingの最大の特徴です。電圧固定という手法で観測される「膜内電荷移動」は、この電位センサーが動いたことを電気的に捉えた指標で、1970年代から「膜内電荷の移動が筋小胞体のカルシウム放出を引き起こす」という対応関係が、EC couplingのしくみの核心だと考えられてきました[1]。もっとも、CaV1.1のどの部分の動きがRyR1の開口へ最も直接伝わるのかは、いまも完全には解明されていない研究上の課題として残されています[19]。
2. T管とトライアド ─ EC couplingの舞台となる構造
EC couplingを成り立たせているのは、筋肉の細胞の中にある精巧な立体構造です。まず横行小管(T管)とは、細胞の表面の膜(筋鞘)が筋線維の内部へ深く入り込んでできた、細い管の集まりです。外の世界とつながった膜が奥まで伸びているので、表面で起きた電気の興奮を、太い筋線維の芯まで遅れなく届けることができます[23]。
そのT管に、カルシウムの貯蔵庫である筋小胞体の端(終末槽)が両側からぴったり寄り添います。1本のT管を、2つの筋小胞体の終末槽が挟み込むこの三層構造がトライアド(三つ組み)です[3]。哺乳類の骨格筋では、トライアドはサルコメア(筋節)のA帯とI帯の境目あたりに規則正しく並んでいます。一方、心臓の筋肉では、T管に筋小胞体が片側だけ接するダイアド(二つ組み)が一般的です[23]。
▲ トライアド=1本のT管を2つの筋小胞体終末槽が挟む三層構造
この接合部を電子顕微鏡で詳しく調べたのが、1970年のフランツィーニ=アームストロングの古典的研究です。カエルの筋肉では、T管と筋小胞体の膜が約12〜14ナノメートル(nm)の距離をおいて向かい合い、約30nmの間隔で筋小胞体の膜から小さな突起(「フット=足」構造)が規則正しく並んでいることが示されました[1]。現代の記述では、この隙間はおよそ10nm前後とされることが多いのですが、これは矛盾ではなく、標本の作り方や生き物の種類による測定の違いとして理解するのが適切です。
💡 用語解説:ナノメートル(nm)ってどれくらい?
1ナノメートルは、1ミリメートルの100万分の1という、とても小さな長さの単位です。T管と筋小胞体の隙間である約10nmは、髪の毛の太さのおよそ1万分の1にあたります。EC couplingは、これほど微細な膜と膜のあいだで、電気の情報がやりとりされている現象なのです。
なお、トライアドの数や密度は筋線維の種類によっても異なります。モルモット骨格筋では、T管全体の表面密度は速筋線維と遅筋線維でおおむね同程度である一方、速筋線維では筋小胞体と接合するT管の割合が高く、junctional feetの体積密度も遅筋線維より高いことが報告されています[25]。つまり、速筋と遅筋の違いは単純な「T管の総量」ではなく、接合部として使われるT管の割合やカルシウム放出装置の密度などにも表れます。同じ骨格筋でも、使われ方に応じて構造が微妙に作り分けられているわけです。
この「フット」の正体が、のちにカルシウムの出口であるRyR1だと判明します。そして1988年、ブロックらは膜を割って内部を観察する手法(フリーズフラクチャー)を用いて、T管の膜側に4個一組のダイヤモンド型の粒子のかたまりを見つけました。これが電位センサーCaV1.1チャネル複合体が4つ並ぶ「テトラッド」で、その配置が筋小胞体側のRyR1の4回対称構造にきれいに対応していたのです[4]。ここで、電気信号が膜と膜のあいだを構造的に伝わるという考え方が、目に見える形で裏づけられました。
さらに2024年、Xuらは凍らせた組織をそのまま立体的に観察するクライオ電子線トモグラフィー(cryo-ET)という最新技術で、生きた状態に近いトライアドの内部構造を約16.7オングストローム(約1.7nm)の解像度で解き明かしました[5]。RyR1が筋小胞体の膜の上で二列に並び、それに対応してCaV1.1のテトラッドも二列を作ること、そしてテトラッドがすべてのRyR1ではなく、一つおきのRyR1に結合しているという長年の予想が、立体構造として直接確かめられたのです[5]。
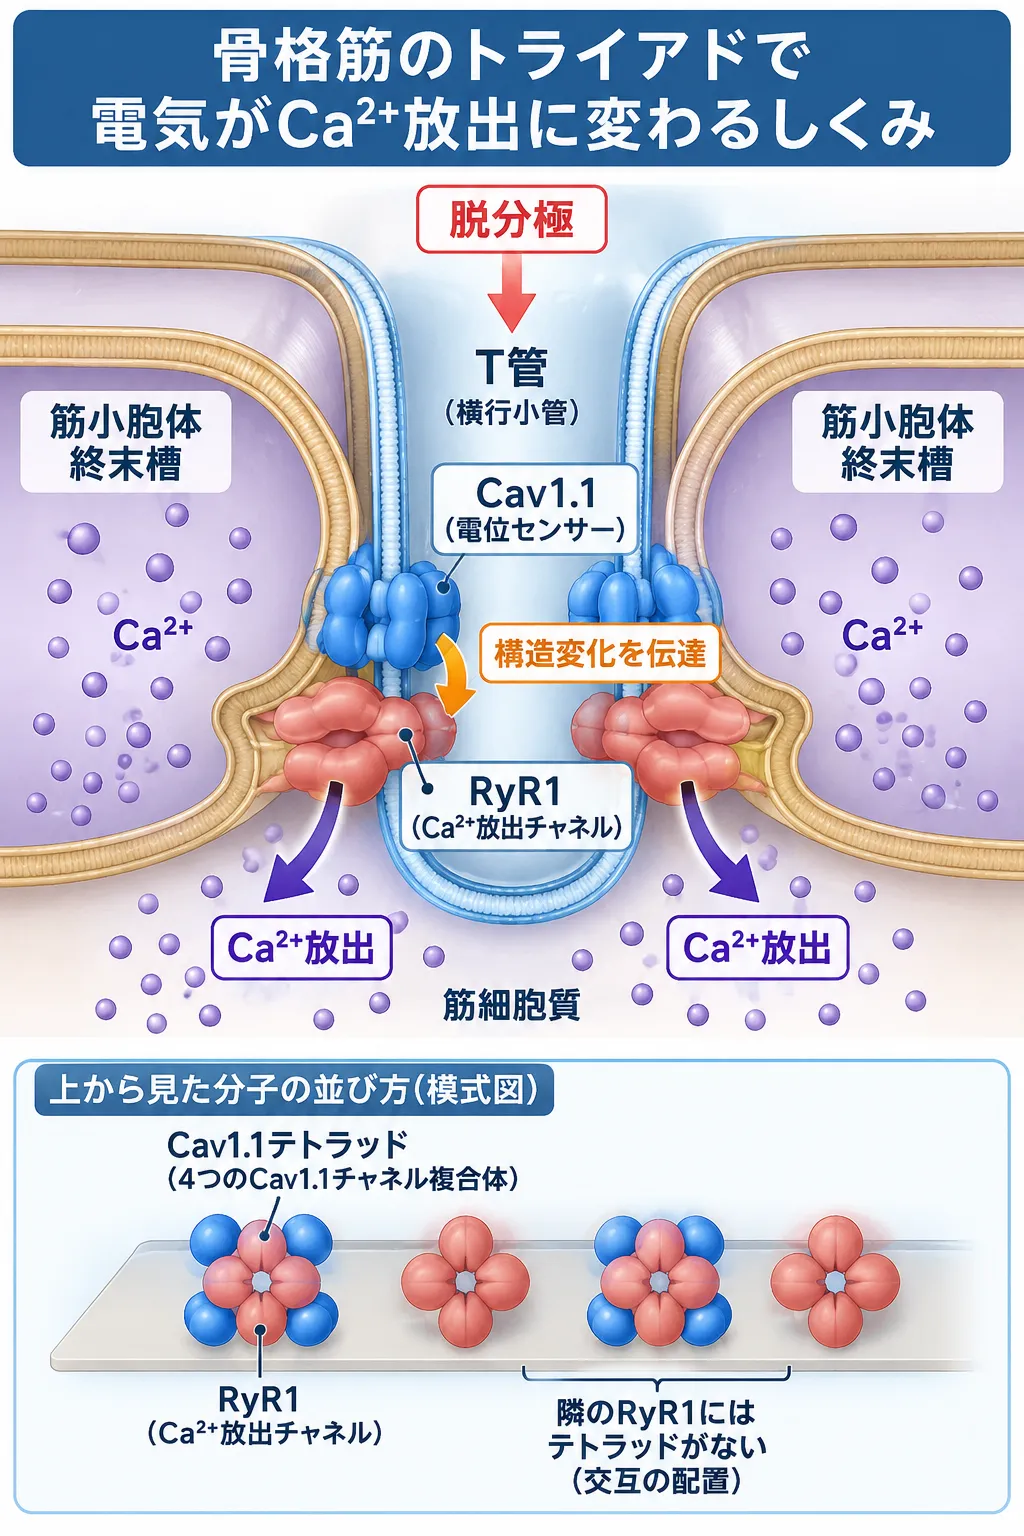
骨格筋では、活動電位による脱分極がT管のCaV1.1に感知され、その構造変化が筋小胞体膜のRyR1へ伝わることでCa2+が筋細胞質へ放出されます。トライアドではCaV1.1チャネル複合体が4つ並ぶテトラッドがRyR1と対応して配置され、すべてのRyR1ではなく交互のRyR1にテトラッドが対応する特徴的な配列を形成します。
🩺 院長コラム【「見えないもの」を積み重ねて確かめる】
EC couplingの研究の歴史は、「近くにある」という観察を、どうやって「本当につながって働いている」という証明にまで高めていくかの積み重ねでした。電子顕微鏡でT管と筋小胞体が接している様子が見えても、それだけでは機能的につながっている証拠にはなりません。逆に、電気を加えてカルシウムが出たとしても、それがどの構造を通ったのかは分かりません。
1970年のフット構造、1988年のテトラッド、そして2024年のcryo-ETと、道具が進歩するたびに、少しずつ確かな像が結ばれてきました。遺伝子検査で見つかった変化が体にどう影響するのかを読み解くときにも、これと同じ姿勢が役に立ちます。一つの手がかりだけで結論を急がず、複数の証拠を突き合わせて判断していく——それは臨床遺伝における基本的な姿勢です。
3. 骨格筋と心筋の違い ─ 「形」で伝えるか「カルシウム」で伝えるか
同じEC couplingでも、骨格筋と心臓の筋肉(心筋)では、電気の信号を筋小胞体に伝える方法が根本的に異なります。この違いを理解すると、両者の性質の差がすっきり見えてきます。
骨格筋では、T管にある電位センサーCaV1.1(別名DHPR)が電圧の変化を感じ取ると、それ自身が形を変えます。その構造の変化が、すぐそばにあるRyR1へ機械的・直接的に伝わって、カルシウムの扉を開けます。このしくみを「機械的共役(コンフォメーション共役)」と呼びます。カルシウムイオンそのものが仲立ちをする必要がないのが特徴です[6]。
一方、心筋では、T管にあるCaV1.2という別の電位依存性チャネルを通って、まず細胞の外からカルシウムが少量流れ込みます。この流入したカルシウムが引き金となって、心筋型のカルシウム出口RyR2を開き、筋小胞体からさらに大量のカルシウムが放出されます。この「カルシウムがカルシウムを呼ぶ」しくみをカルシウム誘発性カルシウム放出(CICR)といいます[6]。
▲ 骨格筋は「形」で、心筋は「カルシウム」で信号を伝える
この違いを鮮やかに示したのが、1990年のタナベ(田辺)とビームらの実験です。彼らは、電位センサーが働かない筋肉(筋発生不全マウスの筋管)に、心筋型のカルシウムチャネル(CaV1.2)の設計図を導入しました。すると、その筋肉のEC couplingは、外からのカルシウム流入に依存する「心筋型」に切り替わったのです[6]。どの分子を入れるかで信号の伝わり方が変わるという、この決定的な結果は、骨格筋型と心筋型の違いが分子レベルで決まっていることを証明しました。
💡 用語解説:CaV1.1(DHPR)とRyR1
CaV1.1は、骨格筋のT管にある電位依存性カルシウムチャネルで、遺伝子名はCACNA1Sです。歴史的にDHPR(ジヒドロピリジン受容体)とも呼ばれます。骨格筋では、カルシウムを通す働きよりも、電圧の変化を感じ取ってRyR1に伝える「電位センサー」としての役割が中心です。一方RyR1は、筋小胞体にある巨大なカルシウム放出チャネルで、遺伝子名はRYR1です。4つの同じ部品が集まった構造をしており、その大部分が細胞質側に突き出て「フット」を形づくっています[4]。
この根本的な違いのために、骨格筋ではCaV1.1のカルシウムを通す能力を抑えてもEC couplingを維持できる場合があるのに対し、心筋ではL型カルシウム電流を抑えるとRyR2を開く引き金そのものが弱まってしまいます[6]。心臓が拍動ごとに確実に収縮するためには、外からのカルシウム流入が欠かせないのです。実際、心筋の細胞からT管を切り離す実験では、活動電位の間に流れ込むカルシウムがおよそ60%減り、T管を通るカルシウム流入が細胞表面のおよそ2.2倍にのぼることが示されました[7]。心臓では、T管こそが収縮の引き金を引く主要な現場なのです。
4. EC couplingに登場する分子たち
EC couplingは、CaV1.1とRyR1という2つの主役だけで成り立っているわけではありません。多くの補助的な分子が、電位センサーの配置や安定化、カルシウムの貯蔵、膜どうしの橋渡しを支えています。ここでは主な登場人物を整理します。
🧬 EC couplingに関わる主な分子
| 分子(遺伝子) | 主なはたらき |
|---|---|
| CaV1.1(CACNA1S) | 骨格筋の電位センサー。電圧の変化を感じ取り、RyR1を構造的に活性化する[4][5] |
| RyR1(RYR1) | 筋小胞体のカルシウム放出チャネル。CaV1.1に開けられる標的[4] |
| CaVβ1a(CACNB1) | CaV1.1の細胞質側の補助部品。配置や機能、RyR1との共役を支える[8] |
| STAC3(STAC3) | アダプター(つなぎ役)。電気の信号をRyR1へ伝える段階に必須[9] |
| ジャンクトフィリン(JPH1/JPH2) | T管と筋小胞体の2枚の膜を一定の距離に橋渡しする[10] |
| カルセクエストリン(CASQ1/CASQ2) | 筋小胞体の中でカルシウムを大量にためる貯蔵タンパク質[11] |
| トリアジン(TRDN)/ジャンクチン | カルセクエストリンとRyRをつなぎ、貯蔵と放出を調節する[12] |
| SERCA(ATP2A1など) | 放出されたカルシウムを筋小胞体へ回収し、筋肉をゆるめる[3] |
| BIN1/カベオリン3(CAV3) | T管の膜の曲がりを作り、T管の形成を助ける[13] |
| CaV1.2(CACNA1C)/RyR2 | 心筋型の電位センサーとカルシウム放出チャネル[6] |
※CACNA1Sは骨格筋型、CACNA1Cは心筋型のチャネルで、別々の遺伝子です。
このなかで、電位センサーからRyR1への信号の受け渡しに欠かせないのがSTAC3です。STAC3を働かなくしたマウスでは、電気刺激による筋小胞体からのカルシウム放出と収縮が失われます。ところが、RyRを直接開く薬(作動薬)には反応が残るため、STAC3は「筋小胞体がカルシウムをためられない」のではなく、「脱分極をRyR1へ伝える段階」に必須であることが分かります[9]。このSTAC3の遺伝子変化は、後で述べるように、先天性のミオパチーの原因にもなります。
2枚の膜を適切な距離に保つ役割を担うのがジャンクトフィリンです。一方の端を筋小胞体の膜に固定し、細胞質側の部分でT管の膜に近づくことで、両者を一定の間隔に保ちます。骨格筋ではJPH1が、心筋ではJPH2が特に重要です。ジャンクトフィリンは単なる「すきま調整のスペーサー」ではなく、CaV1.1のC末端領域と直接結びついて、CaV1.1を接合部に集める働きも持つことが分かっています[24]。
筋小胞体の中でカルシウムを大量にためこむのがカルセクエストリンです。カルシウムとゆるく結合する性質を持ち、筋小胞体の中の遊離カルシウム濃度を上げすぎることなく、大量のカルシウムを保持できます。骨格筋の速筋ではCASQ1が、心筋ではCASQ2が主に働きます[11]。トリアジンとジャンクチンは、このカルセクエストリンとRyRを結ぶ橋渡し役です。トリアジンを失った筋肉では、筋小胞体の終末槽が小さくなり、カルセクエストリンが減り、カルシウムの貯蔵能力と筋力が低下することが報告されています[12]。
収縮が終わったあと、放出されたカルシウムを筋小胞体へ回収して筋肉をゆるめるのがSERCAというポンプです。SERCAはATP(細胞のエネルギー通貨)を使ってカルシウムを袋の中へ汲み戻し、次の収縮に備えます。速筋ではSERCA1a、心筋や遅筋ではSERCA2aが主に働きます。EC couplingを「脱分極からカルシウム放出まで」と狭く捉えたとしても、繰り返し収縮できる生理的なサイクルを回すには、このSERCAによる回収が欠かせません[3]。放出と回収が両輪となって、はじめて筋肉は何度も収縮と弛緩を繰り返せるのです。
5. 最小の部品セット ─ 5つの分子で再現できる
EC couplingを成立させるには、いったい何が必要なのでしょうか。この問いに正面から答えたのが、2017年のペルニらの再構成実験です。彼らは、もともと筋肉ではない培養細胞(tsA201細胞)に、EC couplingに関わる分子を一つずつ導入していきました[8]。
その結果、CaV1.1、RyR1、CaVβ1a、STAC3、ジャンクトフィリン2(JPH2)の5つをそろえると、外からのカルシウム流入に依存しない電圧誘発性のカルシウム放出と、CaV1.1のテトラッド構造を、筋肉以外の細胞でも再現できることが示されました[8]。これは、骨格筋型の直接的なEC couplingを成り立たせる「最小限の部品セット」に近いものと考えられます。
▲ この5つで骨格筋型EC couplingを筋肉以外の細胞でも再現できた
ただし、生きた筋肉のトライアドが完全に働くためには、これら5つに加えて、カルセクエストリン、トリアジン、ジャンクチン、膜の脂質、細胞骨格など、さらに多くの調節役が必要になります[8]。「最小限で動く」ことと「本来のとおりに働く」ことは別だという点は、覚えておきたいところです。この「必要な因子」と「十分な因子」を切り分けられるようになったことが、再構成実験の大きな意義でした。
6. T管はどう作られ、保たれるのか
T管は、単なる「電線」ではありません。細胞表面の膜とつながっているのに、そこに含まれるタンパク質や脂質の組み合わせは高度に特殊化された、いわば独立した膜の器官です[13]。骨格筋のT管はCaV1.1やBIN1というタンパク質に富み、コレステロールも多く含みます。
このT管がどう作られるのか、以前は「細胞表面の膜がただ奥へ伸び込む」という静かなイメージで捉えられていました。しかし近年は、膜の輸送と捕捉を含む動きのあるモデルへと理解が移っています。2020年のホールらは、透明で観察しやすいゼブラフィッシュの筋肉を用いた生体イメージングなどを組み合わせ、「エンドサイトーシス捕捉(endocytic capture)」というしくみを提唱しました。まず細胞表面から一時的な管が内側に取り込まれ、それが筋原線維や筋小胞体によって空間的に捕まえられて安定化し、さらに膜が供給されて伸びていく、という考え方です[14]。
また、2023年のルメルルらは、BIN1というタンパク質が細胞表面でリング状の土台を作り、そこにカベオリン3(CAV3)を含む小さなくぼみ(カベオラ)を集めて、T管の出発点になることを、高解像度の観察で示しました[13]。BIN1は膜を曲げる性質を持ち、T管の形成に重要な役割を果たしています。
💡 用語解説:BIN1とカベオリン3
BIN1(アンフィファイシン2)は、膜を弓なりに曲げる性質を持つタンパク質で、T管の管状構造を作るのに欠かせません。カベオリン3(CAV3)は、細胞膜の小さなくぼみ「カベオラ」を作る筋肉特有のタンパク質です。どちらも、T管が正しい形に組み上がるための「型枠」のような役割を担っており、これらの遺伝子の変化は筋肉の病気につながることがあります[13]。
T管は成熟したあとも、固定された不変の構造ではありません。ジャンクトフィリン、BIN1、カベオリン3、細胞骨格などが接合部の形を保ち、運動や加齢、病気に応じて作り替えられていきます[13]。この「作り替えられる」という性質は、次に述べるカルシウムの補充のしくみとも深く関わっています。
7. SOCEとCEU ─ カルシウムを補充するもうひとつのしくみ
これまで説明してきた「一回の収縮を起こす」EC couplingとは区別して理解すべきしくみに、ストア作動性カルシウム流入(SOCE)があります。筋小胞体の中のカルシウムが減ってくると、STIM1というセンサーがそれを感知し、Orai1という通り道を開いて、細胞の外からカルシウムを補充します[15]。運動を繰り返したり、激しく筋肉を使ったりすると、T管が伸びて筋小胞体の積み重なりと新しい接点を作り、SOCEが増強されます。
この新しく作られる接点がカルシウム流入ユニット(CEU)です。2020年のミケルッチらは、カルセクエストリン1を失ったマウス(CASQ1欠損マウス)の筋肉では、安静時でもこのCEUが恒常的に増えていることを示しました。長趾伸筋では、CEUの密度が正常マウスの約2.0個から約39.6個(100平方マイクロメートルあたり)へと大きく増加し、STIM1やOrai1、SERCAの増加とSOCEの増強を伴っていました[16]。カルシウムの貯蔵能力が下がったぶんを、構造の作り替えによって補っていると考えられます。
💡 ここが大切:「異常な構造」が代償になることもある
一見すると「異常」に見える膜構造の変化が、じつは体を守るための代償になっている場合があります。CASQ1欠損マウスでCEUが増えるのは、低下したカルシウム貯蔵能力を補うための適応と考えられています[16]。構造が変わった=悪い、と単純に決めつけられないのが、生きた筋肉の奥深さです。ただし、CEUで実際にどこでカルシウムが流れ込むのかを空間的に直接証明することなど、まだ未解決の部分も残されています。
8. EC couplingが関わる病気
EC couplingの装置は、いくつもの病気の軸で破綻します。この装置に関わる遺伝子の変化が、どのように病気につながるのかを見ていきます。
悪性高熱症(あくせいこうねつしょう/MH)
悪性高熱症(MH)は、骨格筋のカルシウム制御に関わる薬理遺伝学的な異常です。主な原因遺伝子はRYR1で、CACNA1SなどEC couplingに関わる遺伝子も関与します[17]。手術の際に使われる揮発性の吸入麻酔薬や、脱分極性の筋弛緩薬(スキサメトニウムなど)が引き金となって、筋小胞体からカルシウムが制御不能に放出され、筋肉のこわばり、二酸化炭素産生の増加、代謝性・呼吸性のアシドーシス、高カリウム血症、横紋筋融解(おうもんきんゆうかい)、そして高体温へと進行しうる、命に関わる緊急事態です[17]。
現在、ヨーロッパ悪性高熱グループ(EMHG)は、筋肉の一部を採取して麻酔薬への反応を直接調べるin vitro収縮試験(IVCT)を、MH感受性を確定するための標準的な機能検査と位置づけています[17]。発症時には、引き金となった薬剤の投与を止め、ダントロレンという薬を投与することが治療の中心になります[18]。
分子のレベルで見ると、MHを単に「RyR1がいつも開いている」と理解するのは正確ではありません。より適切には、RyR1が開き始める閾値、温度や物質への感受性、安静時の漏れ、カルシウムによる調節といった、いくつもの性質の異常として捉えるべきものです[19]。また、STAC3の異常でもMHのリスクが生じることが知られており、MHという状態がRyR1単独ではなく、CaV1.1・STAC3・RyR1という共役ユニット全体の異常で起こりうることを示しています[9]。
RYR1関連ミオパチー/セントラルコア病
RYR1の変化は、悪性高熱症だけでなく、生まれつきの筋力低下を示すRYR1関連ミオパチーの原因にもなります。その代表がセントラルコア病で、筋線維の中心部に酵素活性やミトコンドリアが乏しい「コア(芯)」が見られることが多い病気です[19]。
重要なのは、その機能異常が一様ではないことです。RyR1が過剰に漏れるタイプ(機能獲得型)だけでなく、RyR1を通るカルシウムが減るタイプ、RyR1の量そのものが減るタイプ、CaV1.1からRyR1への共役がうまくいかなくなるタイプ(EC共役の解離)など、変化ごとに異なる機序が存在します[19]。このため、「悪性高熱症は機能獲得、セントラルコア病はその慢性版」という単純な図式では説明しきれません。
💡 用語解説:機能獲得型と機能喪失型の変化
遺伝子の変化は、そのはたらきへの影響によって大きく2つに分けられます。機能獲得型は、タンパク質が働きすぎる・止まらなくなる方向の変化で、RyR1が漏れやすくなる悪性高熱症の一部がこれにあたります。機能喪失型は、はたらきが弱まる・失われる方向の変化です。同じRYR1でも、変化の性質によって現れ方が変わるのが、この遺伝子の特徴です[19]。
筋ジストロフィーとの関わり
デュシェンヌ型筋ジストロフィー(DMD)の一次的な原因は、ジストロフィンというタンパク質の欠損であり、EC couplingの部品そのものの遺伝的な欠損ではありません。しかし、膜のもろさ、活性酸素、カルシウムの恒常性の異常などが、筋小胞体やT管のしくみへ二次的に波及します[20]。DMDのモデルマウス(mdxマウス)では、RyR1が過剰に修飾されてカルシウムを漏らしやすくなること、そしてRyR1を安定化させると筋障害や運動機能が改善したことが報告されています[20]。ただし、DMDのカルシウム異常をRyR1の漏れだけで説明するべきではなく、膜からの流入、活性酸素、ミトコンドリアの障害などを含む多因子のモデルで捉えるのが妥当です。
T管・トライアドを作る分子の病気
T管やトライアドを作るタンパク質そのものの異常も、ミオパチーの原因になります。BIN1、ダイナミン2(DNM2)、MTM1の異常は、中心核ミオパチー(セントロニュークリアミオパチー)や筋細管ミオパチーと強く関連し、膜の輸送やT管の組織化を障害します[13][19]。カベオリン3の変化はT管の形成異常を、STAC3の変化はEC共役の障害を、それぞれ引き起こしえます。先天性の筋疾患を「収縮タンパク質の病気」と「膜の病気」に単純に二分するよりも、トライアドの形成からカルシウム放出、膜の修復までが連続した病態のネットワークとして捉えるほうが有用です[19]。
心不全におけるT管の作り替え
心臓では、T管の作り替えがEC coupling不全の代表的な構造的基盤になります。2006年のソングらは、心不全の心筋でT管が本来のZ線の位置から外れ、RyR2のかたまりがCaV1.2を含むT管から離れてしまう「孤立したRyR(orphaned RyR)」が生じることを示しました[21]。その結果、カルシウム放出のタイミングと場所が不均一になり、心臓全体のカルシウムの動きと収縮が低下します[21]。ジャンクトフィリン2やBIN1、T管の安定化を標的とする「構造的なEC coupling治療」は、SERCAやRyR2そのものを狙う治療とは異なる候補として注目されています。
🩺 院長コラム【同じ遺伝子でも、変化の性質で対応が変わる】
RYR1のように、一つの遺伝子が悪性高熱症にもセントラルコア病にもつながり、しかも機能獲得型・機能喪失型・共役の解離といった異なる機序をとりうる——これは、遺伝子検査の結果を読むうえでとても大切な視点です。同じ遺伝子の変化でも、その性質によって、体に現れる影響も、注意すべき点も変わってきます。
遺伝子検査の結果を解釈する際にも、同じ考え方が重要です。変化の場所や種類を一つひとつ確かめ、それが機能にどう影響するのかを文献に照らして検討します。EC couplingのような基礎的なしくみを理解しておくことが、検査結果の意味を正確に評価し、必要な対応を検討する土台になります。
9. 遺伝診療との接点 ─ 用語を知ることがなぜ大切か
EC couplingは、一見すると基礎研究の話に思えるかもしれません。しかし、この用語を理解しておくことは、遺伝子診断や遺伝カウンセリングの場面で確かな意味を持ちます。RYR1やCACNA1S、STAC3といったEC coupling関連の遺伝子は、悪性高熱症や先天性ミオパチーの原因遺伝子として、実際の遺伝子検査で登場するからです[22]。
特に悪性高熱症は、遺伝形式の観点からも注意が必要です。RYR1やCACNA1Sの変化による悪性高熱症の多くは常染色体顕性(優性)の形式で受け継がれます[17]。つまり、家系の中に悪性高熱症の既往がある方がいる場合、血のつながった家族も同じ体質を受け継いでいる可能性があります。麻酔を伴う手術の前に、家族の麻酔でのトラブルの既往を聞き取ることが、思わぬ事故を防ぐうえで重要になるのは、このためです。
💡 用語解説:常染色体顕性(優性)遺伝
ヒトの遺伝子は、父親由来と母親由来の2本1組になっています。常染色体顕性(優性)遺伝とは、そのうち片方に病的な変化があるだけで、その形質や体質が現れる遺伝の仕方です。親から子へ、性別に関係なく約2分の1の確率で受け継がれます。悪性高熱症の感受性の多くはこの形式をとるため、家系内での情報共有が予防につながります[17]。
また、STAC3の両方の遺伝子に変化が生じて起こるSTAC3障害(ネイティブアメリカンミオパチーとして知られる)は、常染色体潜性(劣性)の形式をとり、悪性高熱症のリスクを伴うことが知られています[9]。RYR1関連ミオパチーも、顕性・潜性の両方の形式をとりうる連続した病態のスペクトラムとして理解されています[19]。
遺伝診療の視点から見ると、EC couplingという用語は「遺伝子の機能を、一つの側面だけで判断してはいけない」という教訓も与えてくれます。同じRYR1でも、変化が機能獲得型か機能喪失型か、共役の解離を起こすかによって、現れ方は大きく異なります[19]。こうした理解は、遺伝子検査で見つかったミスセンス変異などの変化が、体にどう影響しうるかを考えるうえで判断材料の一つになります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。臨床遺伝専門医として文献を踏まえると、EC couplingのような基礎的なしくみの理解は、原因がなかなか分からないまま検査を重ねる状況を整理するうえでも役立ちます。なお、EC couplingそのものは基礎研究が中心の分野であり、日常の診療で直接検査する対象ではありません。ここでは「遺伝子の働きをどう読み解くか」という理解の土台として位置づけています。
10. よくある誤解
誤解①「骨格筋も心臓も同じしくみ」
骨格筋と心筋では、電気を伝える方法が根本的に違います。骨格筋は電位センサーの「形の変化」を直接伝え、心臓は流入したカルシウムが引き金になる「CICR」を使います。どの分子を使うかで、しくみそのものが変わります。
誤解②「T管はただの電線」
T管は電気を運ぶだけの管ではありません。特殊なタンパク質や脂質に富み、運動や病気に応じて作り替えられる、独立した膜の器官です。BIN1やカベオリン3が、その形づくりを支えています。
誤解③「悪性高熱症=RyR1が常に開いている」
これは正確ではありません。悪性高熱症は、RyR1が開く閾値や感受性、安静時の漏れなど複数の性質の異常として捉えるべきで、STAC3など共役ユニット全体の異常でも起こりえます。
誤解④「異常な構造はすべて悪い」
必ずしもそうではありません。カルセクエストリン1を失った筋肉でカルシウム流入ユニット(CEU)が増えるように、一見「異常」な膜構造が代償的に役立つこともあります。
まとめ ─ 電気と力をつなぐ精巧なしくみ
興奮収縮連関(EC coupling)は、筋肉の細胞膜に届いた電気の興奮を、カルシウムを介して収縮という力に変える、生命の基本的なしくみです。その舞台となるのが、電気を筋線維の奥へ運ぶT管と、そこに筋小胞体が寄り添ってできるトライアドという微細な構造でした[1]。
骨格筋では電位センサーCaV1.1の形の変化がRyR1へ直接伝わり、心臓では流入したカルシウムがRyR2を開く——この違いが、両者の性質を分けています[6]。そして、CaV1.1・RyR1・β1a・STAC3・ジャンクトフィリンといった分子が協力してこのしくみを支え、その一つでも遺伝子が変化すると、悪性高熱症やRYR1関連ミオパチーといった病気につながります[8][19]。1970年のフット構造の発見から、2024年のcryo-ETによる立体構造の解明まで、EC couplingの研究は道具の進歩とともに一歩ずつ確かな像を結んできました[5]。基礎的な用語のように見えて、正確な診断に基づいて対応を検討する遺伝診療の現場とも、密接につながっています。
よくある質問(FAQ)
Q1. 興奮収縮連関(EC coupling)とは何ですか?
興奮収縮連関(EC coupling)とは、筋肉の細胞膜に伝わった電気的な興奮(活動電位)を、細胞内のカルシウム濃度の上昇に変え、それによって筋肉を収縮させる一連のしくみのことです。骨格筋では、電気信号がT管を伝って細胞の奥まで届き、T管の電位センサー(CaV1.1)が形を変え、その構造変化が筋小胞体のカルシウム出口(RyR1)へ伝わって開口を促します。放出されたカルシウムが収縮装置に結合し、筋肉が縮みます。
Q2. トライアドとT管(横行小管)はどう違うのですか?
T管(横行小管)は、細胞表面の膜が筋線維の内部へ深く入り込んでできた細い管で、電気の興奮を筋肉の奥まで届ける役割を担います。トライアド(三つ組み)は、この1本のT管を、カルシウムの貯蔵庫である筋小胞体の終末槽が両側から挟み込んでできる三層構造のことです。トライアドは、電気の信号をカルシウム放出へ変換する現場そのものです。なお心臓では、T管に筋小胞体が片側だけ接するダイアド(二つ組み)が一般的です。
Q3. 骨格筋と心臓の筋肉では、しくみがどう違うのですか?
電気の信号をカルシウム放出につなげる方法が異なります。骨格筋では、電位センサーCaV1.1が形を変え、その構造変化がすぐそばのRyR1へ機械的に伝わって扉を開ける「機械的共役」が使われます。カルシウムそのものの仲立ちは必要ありません。一方、心臓では、まずCaV1.2を通って外からカルシウムが少量流れ込み、それが引き金となってRyR2を開く「カルシウム誘発性カルシウム放出(CICR)」が基本です。このため心臓では、外からのカルシウム流入が収縮に欠かせません。
Q4. EC couplingは、どんな病気と関係がありますか?
関係する病気はいくつかあります。代表的なのが悪性高熱症で、RYR1やCACNA1Sの変化により、麻酔薬などが引き金となって筋小胞体からカルシウムが制御不能に放出される、命に関わる緊急事態です。このほか、RYR1関連ミオパチー(セントラルコア病など)、STAC3障害、そして心不全におけるT管の作り替えなども、EC couplingの破綻が関わります。遺伝子検査では、これらの原因遺伝子が実際に調べられることがあります。
Q5. 悪性高熱症は遺伝しますか?家族も注意が必要ですか?
RYR1やCACNA1Sの変化による悪性高熱症の感受性の多くは、常染色体顕性(優性)の形式で受け継がれます。片方の遺伝子に変化があるだけで体質が現れ、親から子へ性別に関係なく約2分の1の確率で伝わります。そのため、家系の中に麻酔でのトラブルや悪性高熱症の既往がある方がいる場合は、血縁の家族も同じ体質を持つ可能性があります。手術で麻酔を受ける前に、家族の麻酔歴を医療者に伝えることが、思わぬ事故を防ぐうえで大切です。家族歴がある場合や遺伝学的評価を希望する場合は、臨床遺伝専門医への相談が選択肢になります。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Studies of the Triad: I. Structure of the Junction in Frog Twitch Fibers. J Cell Biol. 1970. [PMC2108094]
- [2] Cardiac-type excitation-contraction coupling in dysgenic skeletal muscle injected with cardiac dihydropyridine receptor cDNA. Nature. 1990. [PubMed 2157159]
- [3] The regulation of sarco(endo)plasmic reticulum calcium-ATPases (SERCA). Can J Physiol Pharmacol. 2015. [PubMed 25730320]
- [4] Structural evidence for direct interaction between the molecular components of the transverse tubule/sarcoplasmic reticulum junction in skeletal muscle. J Cell Biol. 1988. [PMC2115675]
- [5] In situ structural insights into the excitation-contraction coupling mechanism of skeletal muscle. Sci Adv. 2024. [PMC10954225]
- [6] Cardiac-type excitation-contraction coupling in dysgenic skeletal muscle injected with cardiac dihydropyridine receptor cDNA. Nature. 1990. [PubMed 2157159]
- [7] Quantification of calcium entry at the T-tubules and surface membrane in rat ventricular myocytes. Biophys J. 2006. [PubMed 16214862]
- [8] De novo reconstitution reveals the proteins required for skeletal muscle voltage-induced Ca2+ release. Proc Natl Acad Sci U S A. 2017. [PMC5748219]
- [9] Stac3 is a component of the excitation-contraction coupling machinery and mutated in Native American myopathy. Nat Commun. 2013. [PMC4056023]
- [10] Junctophilins: a novel family of junctional membrane complex proteins. Mol Cell. 2000. [PubMed 10949023]
- [11] The Structural-Functional Crosstalk of the Calsequestrin System: Insights and Pathological Implications. Biomolecules. 2023. [PMC10741413]
- [12] Triadin deletion induces impaired skeletal muscle function. J Biol Chem. 2009. [PubMed 19843516]
- [13] Caveolae and Bin1 form ring-shaped platforms for T-tubule initiation. eLife. 2023. [eLife 84139]
- [14] In vivo cell biological screening identifies an endocytic capture mechanism for T-tubule formation. Nat Commun. 2020. [Nat Commun]
- [15] Store-Operated Calcium Entry in Skeletal Muscle: What Makes It Different? Cells. 2021. [PMC8468011]
- [16] Pre-assembled Ca2+ entry units and constitutively active Ca2+ entry in skeletal muscle of calsequestrin-1 knockout mice. J Gen Physiol. 2020. [PMC7537346]
- [17] Nonsyndromic Malignant Hyperthermia Susceptibility. GeneReviews. [NCBI Bookshelf NBK1146]
- [18] Recognising and managing a malignant hyperthermia crisis (v2024). European Malignant Hyperthermia Group. [EMHG 2024]
- [19] Molecular genetics of skeletal muscle diseases associated with abnormal excitation-contraction coupling. J Hum Genet. 2026. [PubMed 42572084]
- [20] Hypernitrosylated ryanodine receptor calcium release channels are leaky in dystrophic muscle. Nat Med. 2009. [PubMed 19198614]
- [21] Orphaned ryanodine receptors in the failing heart. Proc Natl Acad Sci U S A. 2006. [PMC1449688]
- [22] De novo reconstitution reveals the proteins required for skeletal muscle voltage-induced Ca2+ release. Proc Natl Acad Sci U S A. 2017. [PMC5748219]
- [23] Shishmarev D. Excitation-contraction coupling in skeletal muscle: recent progress and unanswered questions. Biophys Rev. 2020;12(1):143-153. doi:10.1007/s12551-020-00610-x. PMID:31950344. [PubMed 31950344]
- [24] Nakada T, Kashihara T, Komatsu M, et al. Physical interaction of junctophilin and the CaV1.1 C terminus is crucial for skeletal muscle contraction. Proc Natl Acad Sci U S A. 2018;115(17):4507-4512. doi:10.1073/pnas.1716649115. PMID:29632175. [PubMed 29632175]
- [25] Franzini-Armstrong C, Ferguson DG, Champ C. Discrimination between fast- and slow-twitch fibres of guinea pig skeletal muscle using the relative surface density of junctional transverse tubule membrane. J Muscle Res Cell Motil. 1988;9(5):403-414. doi:10.1007/BF01774067. [PubMed 3215995]






