

目次
- 1 1. DSIF・NELFとは ─ 転写を「一時停止」させる2つの因子
- 2 2. なぜ、わざわざ「一時停止」するのか
- 3 3. 因子の顔ぶれ ─ DSIF・NELF・P-TEFb・Integrator
- 4 4. ポーズの構造 ─ NELFはどうやってPol IIを止めるのか
- 5 5. P-TEFbによる解除 ─ 「NELFを外して終わり」ではない
- 6 6. 二段階ポーズ ─ NELFを外してもポーズは消えない
- 7 7. 運命の分かれ道 ─ 一時停止は「品質管理の関所」
- 8 8. 病気とのつながり ─ HIV・がんとDSIF/NELF
- 9 9. 遺伝診療との接点
- 10 10. よくある誤解
- 11 まとめ ─ DSIF・NELFは転写の「関所の門番」
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
遺伝子の情報を読み取る「転写」は、いったん始まったら一気に最後まで進む——そう思われがちですが、実際はそうではありません。読み取りの機械であるRNAポリメラーゼII(RNAポリII)は、スタートしてわずか数十文字進んだところで、いったん「一時停止(ポーズ)」することが、ヒトを含む多くの動物で知られています。この一時停止をつくり出し、支えているのが、DSIFとNELFという2つの因子です。この記事では、DSIFとNELFとは何か、なぜ転写をわざわざ止めるのか、どうやって再開させるのか、そしてHIV感染やがんとどうつながるのかを解説します。
Q. DSIFとNELFとは何ですか?まず結論だけ知りたいです
A. DSIF(ディーシフ)とNELF(ネルフ)は、遺伝子の読み取り(転写)を担うRNAポリメラーゼIIが、スタート直後に「一時停止」する仕組みをつくる転写因子です。DSIFはSPT4とSPT5という2つの部品からなり、NELFは4つの部品からなります。この一時停止は「読み取りの失敗」ではなく、必要になったら素早く読み取りを再開できるよう、機械を待機させておく調節の一段階です。停止の解除にはP-TEFbという酵素が関わり、この仕組みはHIV感染やがんとも深く関係しています。
- ➤正体 → 転写の読み取り機(RNAポリメラーゼII)をスタート直後で一時停止させる2つの因子
- ➤DSIFの構成 → SPT4(SUPT4H1)とSPT5(SUPT5H)のペア。停止だけでなく本来の読み取りも支える多機能因子
- ➤NELFの構成 → NELF-A・B・C/D・Eの4部品。停止を安定させるが、外しただけでは読み取りは再開しない
- ➤解除のカギ → P-TEFb(CDK9)というリン酸化酵素。ただし「外して終わり」ではなく複合体の組み替えが必要
- ➤病気とのつながり → HIVはこの仕組みを乗っ取り、BRCA1関連乳がんではこの停止が病気に関わる
🧬 DSIF・NELFの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | DSIF(ディーシフ、DRB感受性誘導因子)/NELF(ネルフ、負の伸長因子) |
| DSIFの構成 | 小サブユニットSPT4(遺伝子名SUPT4H1)+大サブユニットSPT5(遺伝子名SUPT5H)のヘテロ二量体[1] |
| NELFの構成 | NELF-A・NELF-B(COBRA1)・NELF-C/D・NELF-E の4サブユニット複合体[2] |
| 主なはたらき | RNAポリメラーゼIIをプロモーター近くで一時停止させ、待機状態を安定に保つ |
| 停止の解除役 | P-TEFb(CDK9とサイクリンT)。SPT5・NELF・Pol IIをリン酸化する[2] |
| 医療との関わり | HIVの増殖、MYCによるがん、BRCA1関連乳がんなどと関係する |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. DSIF・NELFとは ─ 転写を「一時停止」させる2つの因子
私たちの体の中では、遺伝子(DNA)の情報がまずRNAへと写し取られます。この工程を転写といい、その主役がRNAポリメラーゼII(Pol II)という巨大な酵素です。転写は「開始 → 伸長(本読み) → 終結」という流れで進みますが、実は多くの遺伝子で、Pol IIは伸長を始めた直後、スタート地点(プロモーター)から20〜60文字ほど進んだところで、いったん立ち止まります[13]。これをプロモーター近位ポーズ(一時停止)と呼びます。
この立ち止まりをつくり、支えているのが、この記事の主役であるDSIFとNELFです。DSIFは1998年にヒトの細胞抽出液から、転写を止める性質を持つ因子として発見されました[1]。続いて1999年に、DSIFと協力してPol IIの伸長を強く抑える3番目の因子としてNELFが見つかりました[2]。
💡 用語解説:プロモーター近位ポーズとは
「プロモーター」は遺伝子の読み取りが始まるスタート地点、「近位」はそのすぐ近くという意味です。つまり「プロモーター近位ポーズ」とは、読み取りが始まってすぐの場所で、RNAポリメラーゼIIが短く立ち止まる現象のこと。これは故障ではなく、合図が来たらすぐ走り出せるよう、スタートラインの少し先で待機している状態だとイメージすると分かりやすいでしょう。
ここで最初に押さえておきたい大切な点があります。NELFの正式名は「negative elongation factor(負の伸長因子)」で、DSIFも当初は「伸長を抑える因子」として登場しました。しかしこの「負(マイナス)」という名前は、やや誤解を招きます。実際には、DSIFは一時停止をつくるだけでなく、その後の本格的な読み取り(生産的な伸長)も支える多機能な因子です[1]。名前の印象だけで「悪者」と決めつけないことが、この分野を理解する第一歩です。
2. なぜ、わざわざ「一時停止」するのか
読み取りを止めるなんて、一見ムダに思えるかもしれません。しかし、この一時停止には大切な意味があります。刺激に素早く反応しなければならない遺伝子(炎症や熱ストレスに応じる遺伝子など)では、あらかじめPol IIをスタートラインの少し先に待機させておくことで、合図が来た瞬間に一斉に走り出せるようになります[13]。ゼロから準備するより、待機状態から始める方がずっと速いのです。
この待機のしくみが実際に働いていることは、ショウジョウバエの熱ショック遺伝子(hsp70)で古くから確かめられてきました。刺激の前からNELFとDSIFが遺伝子のスタート地点に張りついてPol IIを止めており、熱刺激が入るとNELFは離れ、DSIFとPol IIは読み取りへと進んでいくことが示されています[3]。
💡 用語解説:「一時停止=遺伝子オフ」ではない
一時停止を「遺伝子のスイッチがオフの状態」と考えるのは誤りです。むしろ多くの場合、「いつでも動ける待機状態」を意味します。実際、NELFを取り除くと発現が上がる遺伝子だけでなく、逆に下がってしまう遺伝子もたくさんあります。DSIF・NELFは単純な「抑え役」ではなく、状況によってプラスにもマイナスにも働くのです。
3. 因子の顔ぶれ ─ DSIF・NELF・P-TEFb・Integrator
一時停止とその解除には、いくつもの因子が関わります。まず主な登場人物を整理しておきましょう。
🧬 登場する主な因子
| 因子 | 構成・正体 | 役割 |
|---|---|---|
| DSIF | SPT4(SUPT4H1)+SPT5(SUPT5H) | Pol IIに直接結合し、DNAと出てくるRNAを抱え込むクランプ(留め具)をつくる。停止の足場になり、読み取り再開後も残って伸長を支える[1] |
| NELF | NELF-A / B(COBRA1) / C-D / E の4部品 | DSIF–Pol II複合体に結合し、Pol IIの動きと反応を抑えて停止を安定化する。解除の過程で複合体から離れる[2] |
| P-TEFb | CDK9+サイクリンT | 停止を解除する中心的なリン酸化酵素。Pol IIだけでなくSPT5やNELFにもリン酸を付ける[2] |
| PAF1複合体/SPT6 | 伸長を支える因子群 | 解除後の「本読み用」複合体を組み立て、NELFが占めていた場所を置き換える[6] |
| +1 ヌクレオソーム | スタート直後のDNAの巻き取り構造 | Pol IIにとって物理的な障害物となり、NELFと協力して最初の停止位置を決める[7] |
| Integrator–PP2A | 切断酵素+脱リン酸化酵素の複合体 | P-TEFbに対抗し、RNAを切って読み取りを早期に打ち切る方向へ導く[8] |
※NELFのサブユニット数には注意が必要です。かつては複数のポリペプチドとして記載されましたが、現在はNELF-CとNELF-Dを同一遺伝子由来の産物として整理し、4サブユニット複合体として扱います[5]。
転写のおおまかな流れを図にすると、次のようになります。これは全体像をつかむための概念図で、すべてのリン酸化や因子の交代が、あらゆる遺伝子で同時・必須に起こるという意味ではありません。
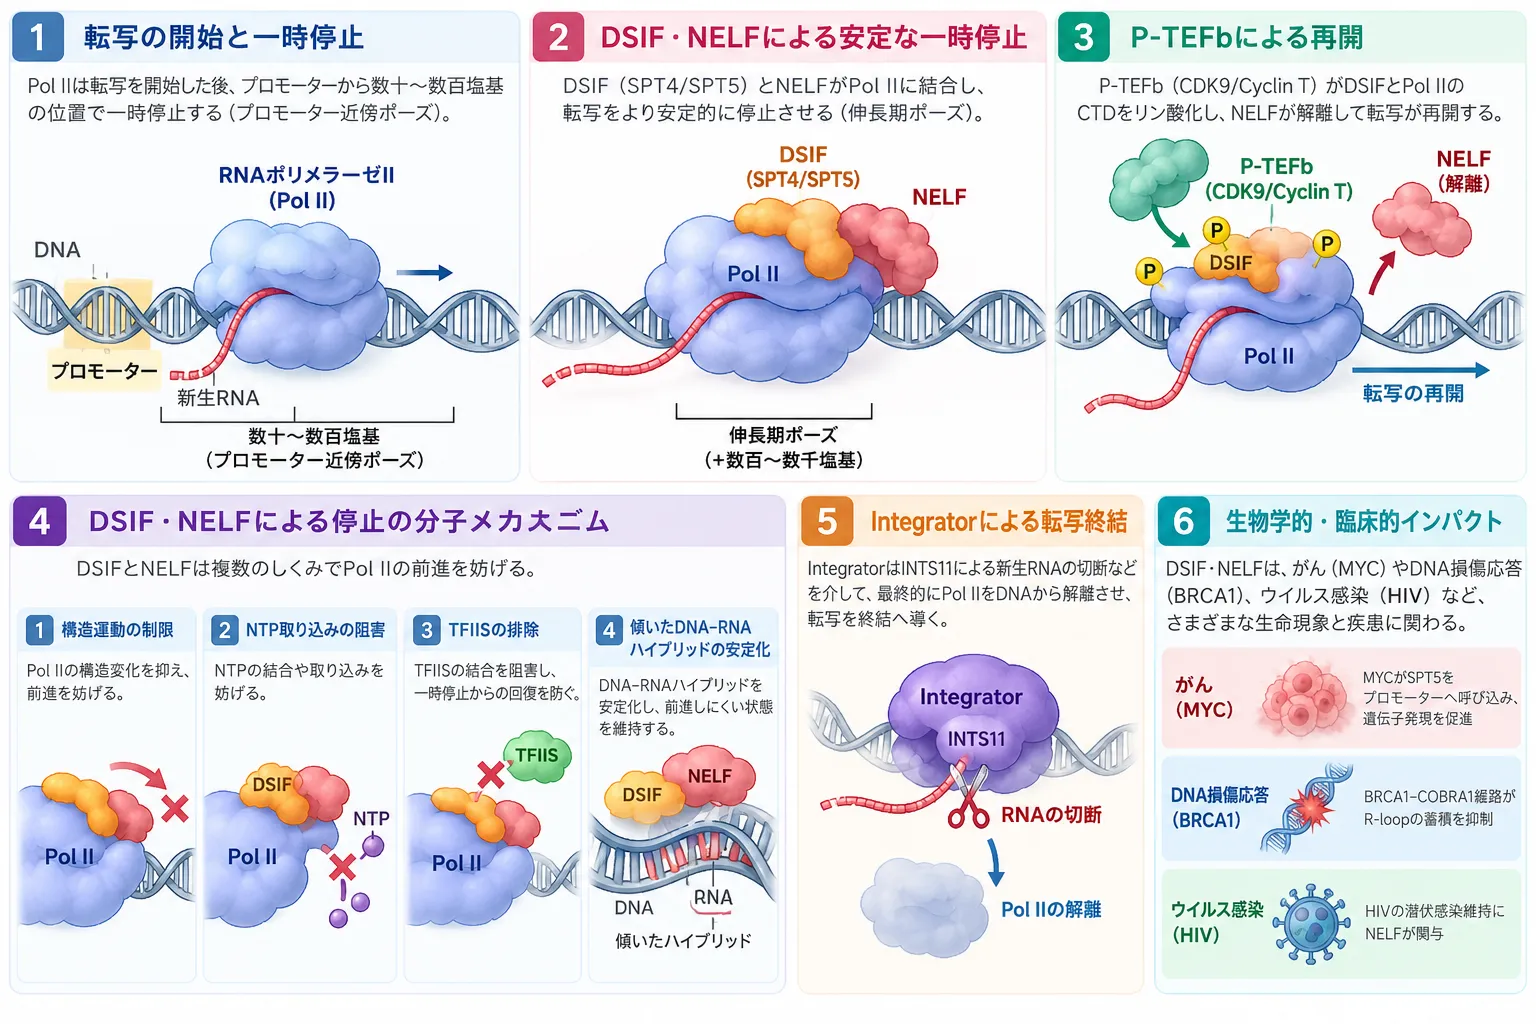
RNAポリメラーゼII(Pol II)は転写開始後、プロモーター近傍で一時停止します。DSIF(SPT4/SPT5)とNELFはこの停止を安定化し、P-TEFb(CDK9/Cyclin T)によるリン酸化によってNELFが解離すると、生産的な転写伸長へ移行します。一方、IntegratorはINTS11による新生RNAの切断などを介して転写を早期終結へ導きます。図では、DSIF・NELFによる停止の分子機構と、MYC、BRCA1、HIVとの関連も示しています。
4. ポーズの構造 ─ NELFはどうやってPol IIを止めるのか
「negative(負の)因子」という名前だけでは、NELFがどうやってPol IIを止めるのかは見えてきません。この謎に答えを出したのが、2018年に発表されたクライオ電子顕微鏡(cryo-EM)による立体構造です。研究チームは、Pol II・DSIF・NELFが結合した「一時停止した複合体」の姿を、3.2オングストロームという高い分解能で解析しました[5]。
Pol IIにDSIFだけを加えても強い停止は起こらず、NELFだけでもほとんど効果がありませんでした。DSIFとNELFの両方がそろって初めて、安定した停止がつくられたのです[5]。これは「DSIFが足場をつくり、そこにNELFが作用する」という古典的なモデルを、精製したタンパク質だけで再現したものでした。
構造から見えてきたのは、NELFが単純に「栓」をしているのではなく、複数のしくみを重ねてPol IIの動きを封じている、という姿です。具体的には、次のような複数のしくみが協力して停止を深めています[5]。
💡 用語解説:傾いたDNA–RNAハイブリッド
Pol IIの中では、鋳型となるDNAと、新しくできたRNAが対になった「DNA–RNAハイブリッド」がつくられます。一時停止した状態では、このハイブリッドが通常より傾いた形をとっており、次の材料(NTP:RNAの部品)がうまくはまらなくなります。これがPol IIの手を止める物理的な理由の一つです[5]。
つまりNELFは、①Pol IIの構造の動きを制限し、②材料の取り込み口に影響し、③反応を助ける再活性化因子(TFIIS)を締め出し、④傾いたハイブリッドを安定化する——という複数の経路で、いわば何重にもブレーキをかけているのです。一方でDSIFは、上流のDNAと出てくるRNAを抱え込む「クランプ(留め具)」をつくり、Pol II全体を機械的に安定させる足場の役割を果たします[5]。
5. P-TEFbによる解除 ─ 「NELFを外して終わり」ではない
では、待機している Pol II はどうやって走り出すのでしょうか。その号砲を鳴らすのがP-TEFbという酵素です。P-TEFbはCDK9というリン酸化酵素とサイクリンTからなり、停止した複合体にリン酸という目印を付けて、読み取り再開の合図を出します[2]。
ここで最も大切なのは、「CDK9がPol IIをリン酸化してNELFを外せば、それで解除は完了」という単純な図は、もう不十分だということです。実際には、次の3つがセットで起こります[6]。
P-TEFbはPol IIだけでなく、DSIFの部品であるSPT5にもリン酸を付けます。そしてNELFは複合体から離れる一方で、DSIF(SPT5)は離れずに残り、今度は「本読みを支える因子」へと役割を変えます。さらにPAF1複合体とSPT6という別の因子が加わり、停止用とは違う「生産的な伸長」のための構造へと組み替わるのです[6]。
💡 ここが誤解されやすいポイント
NELFは離れるが、DSIF(SPT5)は残る。この違いがとても重要です。「2つの負の因子が両方とも外れて再開する」というイメージは正しくありません。DSIFは停止と本読みの両方に関わる、いわば二役をこなす名脇役なのです[6]。
近年は、このSPT5のリン酸化がとても精密に調べられています。2025年の研究では、SPT5の3つの領域(リンカー、CTR1、CTR2と呼ばれる部分)がCDK9によってリン酸化され、それらが協調して停止の解除・読み取りの速度・終結を調節していることが、ヒトの細胞で示されました[9]。各領域の効果は単純な足し算ではなく、互いに影響し合います。つまり「SPT5を1か所リン酸化すればスイッチが入る」という単純なオン・オフ図では説明できないのです。
P-TEFbそのものも、自由に漂ってくるわけではありません。ふだんは7SK snRNPという仕組みによって不活性な状態に隔離されており、必要なときにBRD4やスーパー伸長複合体(SEC)などの経路を通じて供給・活性化されます。ただし、これらの経路は遺伝子や細胞の状態によって使い分けられており、「唯一の運び屋」があるわけではありません。
6. 二段階ポーズ ─ NELFを外してもポーズは消えない
「NELFがポーズの原因なら、NELFを取り除けばポーズは消えるはず」——長らくそう考えられてきました。ところが、この教科書的なモデルを大きく更新する結果が2020年に報告されました。
研究チームは、ヒトの細胞でNELFを急速に分解する技術を使い、その瞬間に何が起こるかを観察しました。すると、NELFを取り除いてもPol IIは消えず、最初の停止位置から少し下流の「第2の停止位置」へ移動したのです。この第2の停止位置は、スタート直後のDNAの巻き取り構造である+1ヌクレオソームの近くにありました[7]。
しかも、この「第1→第2」への移動はP-TEFbを止めた状態でも起こりました。一方、第2の停止位置から本格的な読み取りへ進むには、やはりP-TEFbが必要でした[7]。この結果は、NELFの解離と、本当の意味での読み取り再開は同じではないことを示しています。つまりNELFは「ポーズの唯一の原因」というより、+1ヌクレオソームの入口付近に最初のチェックポイント(関所)を位置づけ、安定させる因子と考える方が、細胞内のデータとよく合うのです。
💡 用語解説:+1ヌクレオソーム
DNAは、ヒストンというタンパク質に巻き付いて「ヌクレオソーム」という数珠玉のような構造をつくっています。遺伝子のスタート地点のすぐ下流にある最初のヌクレオソームが「+1ヌクレオソーム」で、Pol IIにとっては最初の物理的な障害物(関所)になります。NELFとこの関所は、直列に並んだ別々の壁というより、最初の停止位置を一緒に決める協力関係にあると考えられています[7]。
7. 運命の分かれ道 ─ 一時停止は「品質管理の関所」
一時停止したPol IIの運命は、「進むか、待つか」の二択ではありません。実はもう一つ、読み取りを早々に打ち切る(早期終結)という第3の道があります。この道を担うのがIntegrator–PP2Aという複合体です。
2024年の構造研究によれば、Integratorは停止した複合体(Pol II–DSIF–NELF)に作用し、P-TEFbとは逆にリン酸を外す(脱リン酸化)とともに、INTS11という部品による新生RNAの切断などを介して、最終的にPol IIをDNAから解離させ、転写を終結へ導きます[8]。しかもIntegratorは、本読みを進めるためのSPT6やPAF1複合体が結合する場所と競合するため、いったんIntegrator側に傾くと、複合体は終結の道へ進みます[8]。
こうして見ると、プロモーターのすぐ近くの領域は、「本読みへ進む」道と「早めに打ち切る」道が競い合う、転写の品質管理チェックポイント(関所)として理解するのが最も的確です。DSIF・NELFは、そのゲートを守る門番のような存在なのです。
この関所は、RNAの仕上げ作業とも結びついています。できたてのRNAの先端には「キャップ」という保護構造が付けられますが、一時停止した複合体には、このキャップを付ける酵素(RNGTTやCMTR1)が近づける空間が用意されていることが、2024年の構造研究で示されました[12]。つまり一時停止は、RNAを仕上げるための「時間の窓」を提供していると考えられます。ただし、NELFを取り除いてもRNAのキャップ付けが全部なくなるわけではないため、「NELFがキャップ付けに必須」と言い切ることはできません。
8. 病気とのつながり ─ HIV・がんとDSIF/NELF
この一時停止のしくみは、いくつかの病気と深く関わっています。ただし大切なのは、「DSIFやNELFが一般に病気を起こす」という意味ではないという点です。同じ一時停止の装置が、細胞の種類や状況によって、守り役にも病気の原因にもなりうる——これがこの分野の重要な結論です。
HIV ─ 一時停止のしくみを乗っ取るウイルス
最も分かりやすい例が、エイズの原因ウイルスであるHIVです。HIVは自分の遺伝子を読み取らせるために、宿主(ヒト)の一時停止・解除のしくみを巧みに乗っ取ります。HIVの遺伝子から短い読み取りが始まると、できたてのRNAに「TAR」という特徴的な構造ができ、そこにウイルスのTatというタンパク質と宿主のP-TEFbが呼び寄せられます。するとP-TEFbがDSIFやNELFをリン酸化し、NELFが離れて、短い読み取りしかできなかった状態から、ウイルスの本格的な読み取りへと切り替わるのです[4]。DSIF/NELF/P-TEFbのしくみが感染症に直接利用される代表例です。
MYC ─ がんで読み取り能力を増強する
がん遺伝子として知られるMYCは、DSIFの部品であるSPT5を遺伝子のスタート地点へ呼び込み、CDK7という酵素の力を借りてSPT5をPol IIへ受け渡すことで、読み取りを速く・とぎれなく進める(processiveな伸長)ことが示されています[10]。つまり、がんでMYCが過剰に働くと、その悪影響の一部は「読み取りの開始量」だけでなく、DSIF/SPT5を介した「読み取りを走らせる力」の制御にも及ぶのです。
BRCA1関連乳がん ─ 一時停止がRループを招く
遺伝性乳がん・卵巣がんの原因として知られるBRCA1遺伝子とも、意外な形でつながっています。NELFの部品の一つNELF-B(別名COBRA1)は、BRCA1と結合するタンパク質でもあります。BRCA1変異を持つ人の乳腺の細胞では、スタート地点付近にRループ(DNAとRNAが絡まった構造)がたまりやすく、これが一時停止の程度と相関していました[11]。
さらにマウスの実験で、BRCA1を欠いた乳腺からCOBRA1を遺伝学的に取り除いて一時停止を弱めると、Rループの蓄積が減り、乳腺腫瘍の発生率も低下しました[11]。これは単なる相関を超えて、「BRCA1が働かない状況では、NELF依存の一時停止が病的なRループと腫瘍の発生に寄与しうる」という強い因果の証拠です。ただし、すでにできた腫瘍の増殖そのものは大きく変わらなかったため、「NELF-Bが乳がん一般の増殖の原動力」と広げて考えるのは適切ではありません[11]。
💡 一つの装置が、守りにも病にもなる
炎症や熱ストレス、組織の再生などでは、一時停止は「素早く反応するための待機」としてプラスに働きます。一方でHIVやBRCA1欠損という特定の状況では、同じしくみが病気に利用されてしまいます。だからこそ「NELFを薬で抑えれば発現が上がる」と単純には予測できません。治療標的として考える場合も、NELFそのものより、CDK9やIntegrator–PP2A、特定のSPT5リン酸化状態といった状況に応じた切り替え点を丁寧に見極める必要があります。これは現在の研究から導かれる考え方であり、すべての病気で同じ戦略が成り立つわけではありません。
9. 遺伝診療との接点
DSIFやNELFは、日常の遺伝子検査で直接調べる対象ではなく、基礎研究が中心のトピックです。それでも、これらを知ることは「遺伝子の働きをどう読み解くか」という土台になります。転写という最も基本的な工程が、開始・伸長・終結の各段階で細かく制御されていること、そしてその制御の乱れが病気につながりうることを理解しておくと、遺伝子に見つかった変化(バリアント)が体にどう影響しうるかを考えるときの助けになります。
たとえば、ある遺伝子が「転写を制御する因子」の設計図だった場合、その変化は、その遺伝子自身だけでなく、その因子が制御する多くの遺伝子の働きにも波及しうる、という視点が生まれます。DSIF・NELFの研究は、遺伝子の機能を一面だけで判断しない大切さを教えてくれます。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのかを整理します。検査を受けるかどうかを含め、意思決定はご本人が行い、遺伝カウンセリングでは中立的な立場から判断に必要な情報を提供します。
10. よくある誤解
誤解①「一時停止=遺伝子オフ」
一時停止は「オフ」ではなく、多くの場合「いつでも動ける待機状態」です。NELFを取り除くと発現が上がる遺伝子も下がる遺伝子もあり、DSIF・NELFは単純な抑え役ではありません。
誤解②「NELFを外せば読み取り再開」
NELFを急速に取り除いても、Pol IIは消えず+1ヌクレオソーム付近の第2のポーズへ移るだけです。本格的な読み取りにはP-TEFbが必要で、NELFの解離と再開はイコールではありません。
誤解③「CDK9がCTDを叩けば両方外れる」
解除は「NELFが離れる/DSIF(SPT5)は残る」という非対称な過程で、PAF1複合体やSPT6を含む複合体の組み替えが必要です。1か所のリン酸化で完了する単純なスイッチではありません。
誤解④「負の因子だから悪者」
「負の伸長因子」は歴史的な名前にすぎません。DSIF(SPT5)は本読みも支える多機能因子で、一時停止は炎症応答や組織再生ではむしろ有益に働きます。
まとめ ─ DSIF・NELFは転写の「関所の門番」
DSIFとNELFは、「転写をただ止める負の因子」ではありません。転写が始まった直後のRNAポリメラーゼIIを安定に待機させ、RNAの仕上げやDNAの巻き取り構造という次の関門を通り抜ける準備を整え、そのうえで「本格的に読み取る」道と「早めに打ち切る」道へ振り分ける、動的なチェックポイント装置です。
1998〜1999年の発見、2018年の立体構造、2020年以降の細胞内での急速分解実験、2024年のIntegratorやキャップ付けの構造、2025年のSPT5リン酸化の研究——これらを最も矛盾なく統合すると、DSIF・NELFは転写という情報の流れを守る「関所の門番」として立ち現れます。同じ門番が、ある場面では体を守り、別の場面ではHIVやがんに利用される。この二面性こそが、DSIF・NELFを理解するうえで最も大切な視点です。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
よくある質問(FAQ)
Q1. DSIFとNELFとは何ですか?
DSIF(ディーシフ)とNELF(ネルフ)は、遺伝子の読み取り(転写)を担うRNAポリメラーゼIIを、スタート地点のすぐ近くで「一時停止」させる転写因子です。DSIFはSPT4(SUPT4H1)とSPT5(SUPT5H)という2つの部品からなり、NELFはNELF-A・B・C/D・Eの4つの部品からなります。この一時停止は読み取りの失敗ではなく、合図が来たら素早く読み取りを再開できるよう機械を待機させておく、調節の一段階です。
Q2. なぜ転写をわざわざ一時停止させるのですか?
刺激に素早く反応する必要がある遺伝子では、あらかじめRNAポリメラーゼIIをスタートラインの少し先で待機させておくことで、合図が来た瞬間に一斉に走り出せるようになります。ゼロから準備するより速いのです。実際、炎症応答や熱ストレス応答、組織の再生などでは、この待機のしくみがむしろ役立っています。「一時停止=遺伝子オフ」ではない点が大切です。
Q3. NELFを取り除けば一時停止はなくなりますか?
いいえ。ヒトの細胞でNELFを急速に取り除いても、RNAポリメラーゼIIは消えず、最初の停止位置から少し下流の「+1ヌクレオソーム」付近にある第2の停止位置へ移動することが分かっています。しかも、そこから本格的な読み取りへ進むにはP-TEFbという酵素が必要です。つまり、NELFが離れることと、本当の意味での読み取り再開は同じではありません。
Q4. DSIFとNELFは病気と関係がありますか?
関係することがあります。最も直接的な例はHIVで、ウイルスのTatタンパク質が宿主のP-TEFbを利用して、この一時停止・解除のしくみを乗っ取ります。また、がん遺伝子MYCはDSIFの部品SPT5を利用して読み取りを増強し、BRCA1変異を持つ乳腺では、NELF-B(COBRA1)に依存した一時停止がRループの蓄積や腫瘍形成に関わることがマウスの実験で示されています。ただし、同じしくみが状況によって守り役にも病気の原因にもなる点が重要です。
Q5. DSIFの「DSIF」やNELFの「NELF」は何の略ですか?
DSIFは「DRB sensitivity-inducing factor(DRB感受性誘導因子)」の略で、DRBという転写阻害薬に対する感受性を細胞にもたらす因子として1998年に発見されました。NELFは「negative elongation factor(負の伸長因子)」の略です。ただしこの「負」という名前はやや誤解を招きます。DSIF(SPT5)は一時停止だけでなく本格的な読み取りも支える多機能な因子であり、一時停止そのものも状況によってはプラスに働くからです。
参考文献
- [1] DSIF, a novel transcription elongation factor that regulates RNA polymerase II processivity, is composed of human Spt4 and Spt5 homologs. Genes Dev. 1998. [PubMed 9450929]
- [2] NELF, a multisubunit complex containing RD, cooperates with DSIF to repress RNA polymerase II elongation. Cell. 1999. [PubMed 10199401]
- [3] NELF and DSIF cause promoter proximal pausing on the hsp70 promoter in Drosophila. Genes Dev. 2003. [PubMed 12782658]
- [4] Dynamics of human immunodeficiency virus transcription: P-TEFb phosphorylates RD and dissociates negative effectors from the transactivation response element. Mol Cell Biol. 2004. [PubMed 14701750]
- [5] Structure of paused transcription complex Pol II-DSIF-NELF. Nature. 2018. [PMC6245578]
- [6] Structure of activated transcription complex Pol II-DSIF-PAF-SPT6. Nature. 2018. [PubMed 30135578]
- [7] NELF Regulates a Promoter-Proximal Step Distinct from RNA Pol II Pause-Release. Mol Cell. 2020. [PubMed 32155413]
- [8] Structural basis of Integrator-dependent RNA polymerase II termination. Nature. 2024. [PMC11062913]
- [9] Tripartite phosphorylation of SPT5 by CDK9 times pause release and tunes elongation rate of RNA polymerase II. Mol Cell. 2025. [PubMed 40250441]
- [10] MYC Recruits SPT5 to RNA Polymerase II to Promote Processive Transcription Elongation. Mol Cell. 2019. [PubMed 30928206]
- [11] Attenuation of RNA polymerase II pausing mitigates BRCA1-associated R-loop accumulation and tumorigenesis. Nat Commun. 2017. [Nat Commun / PMID 28649985]
- [12] Structures of co-transcriptional RNA capping enzymes on paused transcription complex. Nat Commun. 2024. [PMC11139899]
- [13] Promoter-proximal pausing of RNA polymerase II: a nexus of gene regulation. Genes Dev. 2019. [PubMed 31123063]






