

目次
- 1 1. H3K56acとは ─ DNAの「出入り口」を守る小さな目印
- 2 2. なぜ「特別な場所」にあることが重要なのか
- 3 3. 書き手(writer)と消し手(eraser)
- 4 4. 読み手(reader)と下流のはたらき
- 5 5. 細胞周期とDNA複製 ─ 「新品のヒストン」の目印として
- 6 6. クロマチン成熟のタイマー ─ 最新の統合モデル
- 7 7. DNA修復との関わり
- 8 8. 発生・幹細胞・老化・疾患とのつながり
- 9 9. ヒトで研究するときの大きな注意点
- 10 10. 遺伝診療との接点 ─ 用語としての位置づけ
- 11 まとめ ─ 「付いて、働いて、外される」目印
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

遺伝子のはたらきは、DNAの文字の並びだけで決まるわけではありません。DNAに巻きつくタンパク質「ヒストン」に付く小さな化学的な目印が、遺伝子を読みやすくしたり、DNAを複製・修復したりする作業を細かく調整しています。この記事でとりあげるH3K56ac(ヒストンH3リジン56アセチル化)は、そうした目印のひとつで、とくに「新しく作られたばかりのDNAをきちんと片づける」タイミングを計る、いわばクロマチン成熟のタイマーのような役割をもつことがわかってきました。酵母では仕組みが詳しく解明されている一方、ヒトでは未解決の点も多く残されています。この記事では、H3K56acとは何か、どんな酵素が付け外しするのか、そしてDNA複製・修復や、がん・筋ジストロフィーといった病気の研究とどうつながるのかを解説します。
Q. H3K56acとは何ですか?まず結論だけ知りたいです
A. H3K56acとは、DNAを巻きつけるヒストンH3というタンパク質の56番目のリジン(アミノ酸のひとつ)に、アセチル基という小さな目印が付いた状態のことです。この目印は、新しく作られたばかりのヒストンに付き、DNAが複製・修復されたあとの「乱れたクロマチンを整え直す」作業を進めるはたらきをもちます。作業が終わると目印は外され、次の周期に向けてリセットされます。酵母では詳しく解明されていますが、ヒトでは存在量が少なく、測定の難しさもあって、まだ研究途上の部分が多く残っています。
- ➤正体 → ヒストンH3の56番目のリジンにアセチル基が付いた、DNAの出入り口近くにある目印
- ➤いつ付くか → DNAを複製するS期に、新しく作られたヒストンに付く「新品の目印」
- ➤何をするか → 複製・修復のあとの乱れたクロマチンを整え直す作業を助け、終わると外される
- ➤付け外しする酵素 → 酵母では書き手Rtt109、消し手Hst3/Hst4。ヒトではCBP/p300やSIRT6などが候補
- ➤病気とのつながり → 筋ジストロフィーや真菌感染症、がんの研究でとりあげられているが、確実性には差がある
🧬 H3K56acの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・表記 | エイチスリー・ケー・フィフティーシックス・エーシー。ヒストンH3の56番目のリジン(K56)のアセチル化(acetylation)を意味する |
| 場所 | ヒストンH3の球状ドメイン。DNAがヌクレオソームに出入りする入口・出口の近くで、DNAに直接触れる位置[1][2] |
| 付くタイミング | DNAを複製するS期に、新しく作られたヒストンH3に付く。損傷がなければG2期に大部分が外される[3] |
| 主なはたらき | 複製・修復後のクロマチンの整え直し(成熟)を進めるタイマー。ヒストンの沈着とDNAの動きやすさを調整する |
| 付け外しする酵素 | 書き手(酵母):Rtt109/消し手(酵母):Hst3・Hst4。ヒトの候補:CBP/p300(書き手)、SIRT6など(消し手) |
| 医療との関わり | 筋ジストロフィー・真菌感染症・がんの研究でとりあげられる。ヒトでの役割は研究段階 |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. H3K56acとは ─ DNAの「出入り口」を守る小さな目印
わたしたちの細胞の核の中には、約2メートルにもなるDNAが折りたたまれて収まっています。この折りたたみの基本単位がヌクレオソームで、糸巻きのようなヒストンというタンパク質に、DNAが巻きついてできています。ヒストンには、H2A・H2B・H3・H4という4種類があり、これらに付く小さな化学的な目印(翻訳後修飾)が、遺伝子のはたらきを細かく調整しています。こうしたDNAの文字を変えずに遺伝子の読まれ方を調整するしくみを、まとめてエピジェネティクスと呼びます。
H3K56acは、そうした目印のひとつです。名前は少し難しく見えますが、分解すると単純です。「H3」はヒストンH3、「K56」はそのタンパク質の56番目のリジン(アミノ酸の名前で、記号はK)、「ac」はアセチル化(acetylation)を意味します。つまりH3K56acとは、「ヒストンH3の56番目のリジンに、アセチル基という小さな目印が付いた状態」のことです。
💡 用語解説:アセチル化とリジン
リジンは、タンパク質をつくるアミノ酸のひとつで、ふだんはプラスの電気を帯びています。アセチル化とは、そのリジンに「アセチル基」という小さな部品がくっつく反応のことです。アセチル基が付くとリジンのプラスの電気が打ち消されます。DNAはマイナスの電気を帯びているので、プラスが消えるとDNAとヒストンの結びつきがゆるみやすくなります。これがアセチル化の基本的な効果です。
多くのヒストン修飾は、ヒストンから外に飛び出した「しっぽ(N末端テール)」の部分に付きます。ところがH3K56は、しっぽではなく、ヒストンの球状の本体部分(球状ドメイン)にあります。しかも、DNAがヌクレオソームに巻きつくときの入口と出口のちょうど近くに位置し、DNAに直接触れています[1][2]。この場所の特殊さこそが、H3K56acのはたらきを理解する鍵になります。
DNAの出入り口でリジンのプラスの電気が消えると、DNAとヒストンの接触が局所的にゆるみ、DNAの端がわずかに「呼吸」するように開いたり閉じたりしやすくなります。実際、K56だけを狙ってアセチル化した特別なヒストンを人工的につくって調べた研究では、H3K56acがDNAの端のほどけやすさ(アンラッピング)を高めることが示されました[12]。ただし同じ研究は、H3K56acがそれだけでクロマチン全体を大きくほどくわけではないことも示しており、その効果は「劇的な開放」ではなく「わずかな動きやすさの調整」と考えるのが正確です[12]。
2. なぜ「特別な場所」にあることが重要なのか
H3K56acがこれほど注目されるのは、その位置と、付くタイミングの両方に理由があります。この目印は、酵母では2005年に発見されました。ヒストンH3の球状ドメインという、それまであまり注目されていなかった場所にアセチル化が見つかったこと自体が驚きでした[1]。さらに同じ年、この目印が細胞周期やDNA損傷への応答と結びついていることが示され、単なる構造上の飾りではなく、機能をもつシグナルであることが明らかになっていきました[3]。
とくに大切なのは、H3K56acが新しく作られたばかりのヒストンに付く「新品の目印」だという点です。細胞がDNAを複製するとき、コピーされたDNAには新しいヒストンを供給して、もう一度きちんと巻きつけ直す必要があります。この「新しく作られたヒストン」にH3K56acが付くことで、細胞は「これは今まさに使われようとしている新品のヒストンだ」という履歴を読み取れるようになります[3]。
💡 用語解説:細胞周期とS期
細胞が1個から2個に分裂するまでの一連の流れを細胞周期といいます。大きくG1期→S期→G2期→M期(分裂期)に分かれます。このうちS期は、DNAをまるごとコピーして2倍にする時期です。H3K56acは、このS期に新しく作られるヒストンに付き、コピーされたDNAへ組み込まれます。そして損傷がなければ、S期のあとのG2期に大部分が外されます。
この分野でもっとも詳しく調べられているのは、パン酵母(Saccharomyces cerevisiae)です。酵母では、H3K56acを付ける酵素、外す酵素、そしてその目印を読み取るタンパク質まで、ひととおりの登場人物が遺伝学・生化学・構造解析によって特定されています。まずはこの「書き手・消し手・読み手」から見ていきましょう。
🩺 院長コラム【「増えれば良い」ではない目印】
遺伝子やその調整のしくみを学ぶとき、「あるものが多いほど良い」「少ないほど悪い」と単純に考えたくなります。でも実際の生命の調整は、そう単純ではありません。H3K56acはその良い例です。この目印は、必要なときに付き、役目を終えたら外される、という出し入れのリズムそのものが大切で、付いたまま残りすぎても、逆にゲノムが不安定になることがわかっています。
これは臨床遺伝の考え方とも地続きです。ある遺伝子や酵素のはたらきを評価するとき、「あるか・ないか」だけでなく、「いつ・どれだけ・どのタイミングで」働くのかを見る視点が欠かせません。量の一方向の変化だけを追いかけると、本当の役割を見誤ることがあります。
3. 書き手(writer)と消し手(eraser)
ヒストンの目印には、それを「付ける酵素(書き手=writer)」と「外す酵素(消し手=eraser)」がいます。H3K56acの場合、酵母ではこの両方がはっきり特定されています。
書き手:Rtt109(酵母)
酵母でH3K56acを付ける中心的な酵素はRtt109(アールティーティー109)というリジンアセチル化酵素(KAT)です。2007年、2つの独立した研究チームが同時に、Rtt109を失った酵母ではH3K56acがほぼ消え、DNA損傷や複製ストレスに弱くなること、そして精製したRtt109がH3K56を直接アセチル化できることを示しました[6][7]。
特徴的なのは、Rtt109が働くときにAsf1(エーエスエフワン)というヒストンシャペロン(ヒストンを運ぶ介添え役のタンパク質)の助けを必要とする点です。Asf1が、新しく作られたヒストンH3をRtt109に手渡すことで、効率よくアセチル化が進みます[6]。つまりH3K56acは「すでにDNAに巻きついているヒストンに書き込む」のではなく、「これから巻きつく予定の新品のヒストンに、あらかじめ書き込んでおく」目印なのです。この点は、H3K56acが新品のヒストンの目印であるという考え方を強く支えています。
💡 ここが酵母とヒトの分かれ道
Rtt109は真菌(カビや酵母)に特有の酵素で、ヒトにはそのままの相手(オルソログ)が見当たりません。ヒトでは、CBP/p300という別の酵素がH3K56をアセチル化すると報告されています[10]。Rtt109とヒトのp300は立体構造に思いがけず似た点があるものの、アミノ酸配列の保存性は低く、「ヒトのp300はRtt109のそのままの後継者」という単純な関係ではありません。ここが、酵母の知見をヒトへそのまま当てはめてはいけない大きな理由のひとつです。
消し手:Hst3・Hst4(酵母)
付ける酵素があれば、外す酵素もあります。酵母でH3K56acを外すのは、Hst3・Hst4(エイチエスティー3・4)という2つの酵素です。これらはサーチュインと呼ばれるファミリーに属し、はたらくときにNAD⁺という補酵素を必要とします。2006年、2つの研究チームがそれぞれ、Hst3・Hst4が細胞周期に合わせてH3K56acを外していることを示しました[4][5]。
重要なのは、この2つの酵素を失うと何が起きるかです。Hst3・Hst4を両方失った酵母では、H3K56acが外されずにゲノム全体でほぼ100%まで異常に蓄積し、染色体異常やDNA損傷への弱さ、ゲノムの不安定さが生じます[5]。これは、H3K56acが「多ければ多いほど良い」目印ではなく、適切な時点で付き、適切な時点で外される必要があることを決定的に示した結果でした。付けすぎも、外し忘れも、どちらも細胞にとって害になるのです。
なお、H3K56acを消すはたらきは、細胞のエネルギー状態を反映する2つの補酵素とつながっています。付けるときにはアセチル基の材料であるアセチルCoAを、外すときにはNAD⁺を使います。つまりH3K56acの出し入れは、細胞の代謝状態とも間接的に結びついているのです。
4. 読み手(reader)と下流のはたらき
目印は、付いて外されるだけでは意味がありません。その目印を「読み取って」次のはたらきにつなげるタンパク質(読み手=reader)が必要です。H3K56acについて、もっともはっきりした読み手のひとつが酵母のRtt106(アールティーティー106)です。
2008年の研究で、Rtt106とCAF-1というヒストンシャペロンが、H3K56acの付いたヒストンを優先的に扱い、コピーされたばかりのDNAへ効率よく沈着させることが示されました[8]。さらに2012年には、Rtt106がH3K56acをどう見分けて結合するのか、その立体構造上のしくみが解明されました[14]。つまりH3K56acは、「これは新品のヒストンですよ」という情報を、ヒストンを運ぶ介添え役に伝える目印タグとして働くのです。
💡 用語解説:ヒストンシャペロン
「シャペロン」とは、もともと社交界で若い人に付き添う介添え役を指す言葉です。細胞の中のヒストンシャペロン(Asf1・CAF-1・Rtt106など)は、単独では不安定なヒストンを保護しながら運び、DNAへ正しく巻きつけ直す介添え役です。H3K56acは、このシャペロンたちが「どのヒストンをどこへ運ぶか」を判断する手がかりのひとつになっています。
ヒトでも、読み手の候補が報告されています。2019年の研究では、胚性幹細胞(ES細胞)でTRIM66というタンパク質が、ヒストン上の複数の目印を組み合わせて読み取り、その一部としてH3K56acを認識してDNA損傷応答を調整することが示されました[18]。これは、H3K56acが単独ではなく、ヒストン上のいくつかの目印の「組み合わせ(コード)」として読まれうることを示す、ヒトでの直接的な例です。
一方、2025年の研究で注目されたISW1やChd1といったクロマチンリモデリング因子は、機能的にはH3K56acの下流ではたらきますが、H3K56acを直接つかむ「読み手」なのか、それともDNAの動きやすさの変化を介して間接的に助けられているだけなのかは、まだ決着していません[20]。この点は、今後の研究課題として残されています。
5. 細胞周期とDNA複製 ─ 「新品のヒストン」の目印として
酵母のH3K56acのもっとも特徴的な性質は、その強い細胞周期性です。この目印はS期に新しいヒストンに付いてコピーされたDNAへ組み込まれ、損傷がなければS期のあとに外されます[3][4]。この「付いて、使われて、外される」というサイクルが、細胞周期のリズムにぴったり合っているのです。
ここで注意したいのが、H3K56acの位置を細胞のゲノム全体で調べたときの解釈です。2008年の詳しい解析によれば、ゲノム上のH3K56acの分布の大部分は、単純に「そこで遺伝子が活発に読まれているから」ではなく、DNAがいつコピーされるか(複製タイミング)と、ヒストンがどれくらい入れ替わるか(ターンオーバー)の組み合わせで説明できることがわかりました[9]。つまり、H3K56acがある場所を見て「ここに遺伝子を活性化する特別なしくみがある」と即断するのは危険で、新しいヒストンがどれだけ入ったかを反映しているだけの場合があるのです。
また、Rtt109やH3K56acを失った酵母は、DNAの複製を邪魔する薬(複製ストレスを起こす薬)に弱くなります[7]。これは、H3K56acの役割が単に「複製後のDNAを包み直す」ことにとどまらず、進行中あるいは止まってしまった複製フォーク(DNAをコピーしている装置)の安定性にも関わることを示しています。
6. クロマチン成熟のタイマー ─ 最新の統合モデル
ヒストンをDNAに巻きつけ直すだけでは、整ったクロマチンは完成しません。コピー直後のクロマチンは、ヌクレオソームの間隔や位置がまだ不ぞろいで、そこからATPを使うクロマチンリモデリングという工程を経て、少しずつ整った状態(成熟した状態)になります。
2025年に発表された研究は、この「成熟」の過程でH3K56acが果たす役割を大きく前進させました[20]。この研究では、新しく作られたDNAだけを目印で追いかける特殊な解析手法を複数組み合わせ、H3K56acが不足すると、近づきすぎたヌクレオソームが密集して溜まってしまうこと、そしてH3K56acがISW1(酵母)やその相手にあたるヒトのSNF2hというリモデリング酵素のはたらきを高めることを示しました[20]。
さらに重要なのは、H3K56acを消すこともまた機能的だという点です。消し手であるHst3・Hst4を失い、H3K56acを異常に持続させると、ヌクレオソームの間隔も異常になり、複製ストレスへの弱さが増します[20]。この結果から、H3K56acが付いている間はクロマチンの整え直しが進み、脱アセチル化によって「もう成熟を進めなくてよい」という停止シグナルが生じる、というモデルが提案されました。つまり大切なのは、H3K56acの絶対量よりも、パルス(一時的な波)の生成と消失そのものなのです。この考え方が、H3K56acを「クロマチン成熟のタイマー」と呼ぶ根拠になっています。
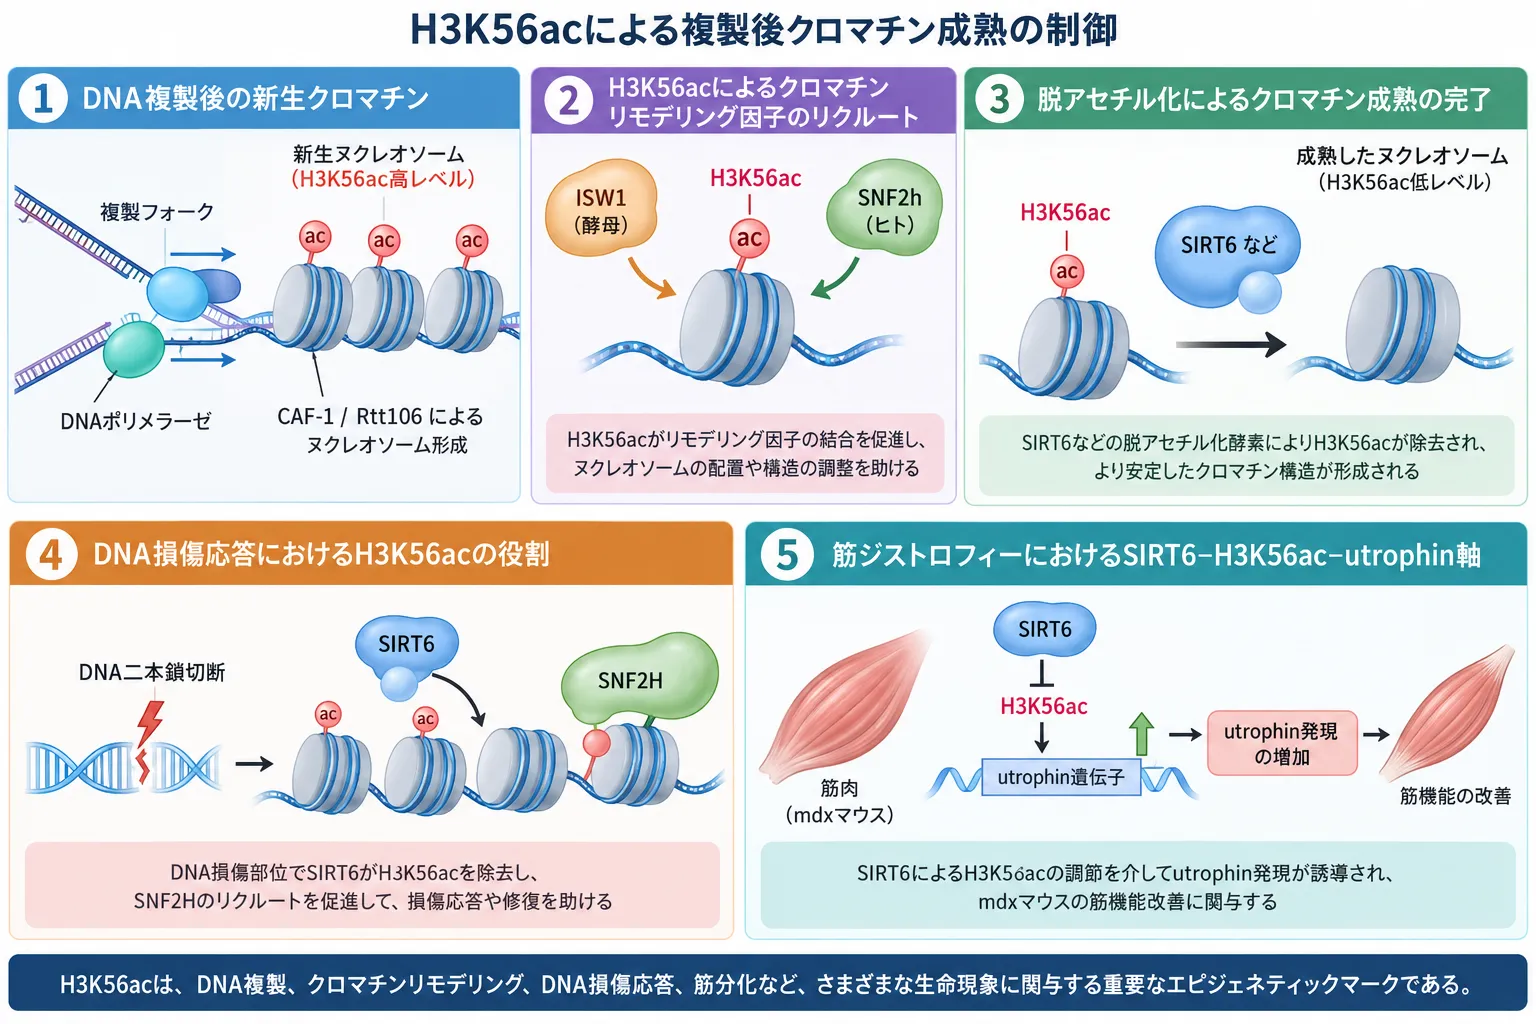
H3K56acは新生ヒストンに付加され、DNA複製後のヌクレオソーム形成とクロマチンリモデリングに関与します。酵母ではISW1、ヒトではSNF2hなどによるクロマチン成熟との関連が示され、脱アセチル化によって成熟過程が調節されます。また、ヒト細胞のDNA損傷部位ではSIRT6によるH3K56acの脱アセチル化とSNF2Hの動員が報告されています。mdxマウスでは、SIRT6とH3K56acの調節を介したutrophin発現の変化が筋ジストロフィーの病態改善に関与することが示されています。
7. DNA修復との関わり
H3K56acとDNA損傷応答(DDR)の関係は、発見当初から明らかでした。Rtt109やAsf1を失った酵母、あるいはH3K56をアセチル化できない酵母は、DNAを傷つけるさまざまな薬に弱くなります。一方で、消し手を失って持続的にH3K56acが過剰になった酵母もまた、ゲノムの不安定さを示します[5][6]。この対称性は、H3K56acが単純に「修復を助けるだけの目印」ではなく、傷ついたあとのクロマチンの解体・再形成を時間的に制御する因子であることを示しています。
損傷がない通常のS期では、H3K56acは複製が終わると外されます。ところが、DNAに切断があると、この目印は外されずに高いまま維持されます。これは、目印を外す酵素が、損傷を感知するチェックポイントのしくみによって抑えられるためです[3]。修復されたDNAをもう一度ヌクレオソームで包み直すこと自体が、損傷応答の「完了」に含まれる——という考え方が、酵母の研究から生まれました。
ヒトでは、様相がもう少し複雑です。2013年の研究では、DNAの二本鎖切断が起きると、SIRT6という酵素が最も早い時期に切断部位へ集まり、そこで局所的にH3K56acを外し、SNF2hというリモデリング酵素を呼び込むことが示されました[15]。酵母の「修復のときにアセチル化された新しいヒストンを沈着させる」というモデルとは単純に同じではなく、ヒトでは局所的に目印を外すことも修復に使われうるのです。これは、H3K56acの意味が、生き物の種類・時点・場所によって変わりうることを示す好例です。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お調べの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
8. 発生・幹細胞・老化・疾患とのつながり
ここからは、H3K56acが病気や老化とどう関わるのかを見ていきます。ただし大切なのは、「関連がある」ことと「H3K56acが原因である」ことを分けて考えることです。研究の確からしさには段階があり、それを意識して読むことが欠かせません。
多能性・発生 ─ 証拠は中程度
2009年の研究は、ヒトのES細胞でH3K56acをゲノム全体で調べ、OCT4やNANOGといった多能性(さまざまな細胞になれる能力)を支える転写ネットワークとの関連を報告しました[11]。多能性を保つしくみとH3K56acが結びついている可能性を示した点で、注目される結果です。ただし、これらの研究に関わる酵素(p300、SIRT6など)はH3K56以外にも多くの標的をもつため、観察された現象をH3K56ac単独に割り当てるには、まだ証拠が十分とは言えません。
がん ─ 証拠は弱め〜中程度
2009年の初期の研究では、正常な組織にくらべて一部のがん細胞や腫瘍でH3K56acが高いと報告され、この目印が細胞の増殖やがんと結びつく指標として注目されました[10]。しかし、「H3K56acはがんのバイオマーカー(目印)として確立している」と言うのは適切ではありません。その理由は次の章で詳しく説明しますが、ヒトでのH3K56acは存在量が少なく、測定に使う抗体の問題もあって、ヒトの腫瘍でH3K56acそのものが原因(ドライバー)だとする証拠は、現在も限られています。
一方で、酵母のゲノム安定性の研究からは、「H3K56acの時間的な制御が壊れると、ゲノムが不安定になりうる」という生物学的な説得力は存在します。がんについては、この基礎的な妥当性と、ヒトでの直接的な証拠の弱さを、分けて理解することが大切です。
老化 ─ 酵母では中程度、ヒトへの外挿は弱い
酵母では、加齢にともなってヒストンの量が減ること、ヒストンの供給を増やすと寿命が延びることが報告されており、H3K56acを介した新しいヒストンの供給のしくみと老化の関連が示されています。ただし、これは「H3K56acを増やせば寿命が延びる」という単純な話ではありません。前述のとおり、過剰で持続的なH3K56acもゲノムを不安定にします。老化の指標との関係でも重要なのは、量の一方向の変化ではなく、付け外しのサイクルが適切に回ることだと考えられます。ヒトの老化については、SIRT6が寿命と強く関わる一方、SIRT6は多くの標的をもつため、その効果をH3K56acだけに帰属させる証拠は、現時点では弱いと言えます。
筋ジストロフィー ─ 証拠は中〜強
H3K56acについて、疾患との因果関係が比較的よく絞り込まれたヒト以外の例が、デュシェンヌ型筋ジストロフィー(きんジストロフィー)のモデルマウスの研究です。デュシェンヌ型筋ジストロフィーは、DMD遺伝子の変化によってジストロフィンというタンパク質が作れなくなる、X染色体に関連した重い筋疾患です。
2022年の研究では、このモデルマウス(mdxマウス)で筋肉に特異的にSIRT6を失わせると、筋肉でH3K56acが増え、ユートロフィンという、ジストロフィンによく似たタンパク質の遺伝子(Utrn)のエンハンサー領域でH3K56acが増加し、ユートロフィンの発現が上がって、筋ジストロフィーの症状が改善することが示されました[19]。ユートロフィンは、ジストロフィンがないときに筋肉の膜を支える代役を果たせるタンパク質です。
💡 なぜこの研究は説得力が高いのか
この研究がとくに強いのは、SIRT6を失わせて得られた改善効果が、ユートロフィンの遺伝子(Utrn)を同時に失わせると打ち消された点です。「AがなくなるとBが良くなる。ただしCを一緒になくすと良くならない」という関係(エピスタシス)は、単なる相関よりも一段強い因果の証拠です。さらに、CRISPR-dCas9という技術で狙った場所にだけSIRT6を呼び込む実験も行われています。ただしSIRT6は多くの標的をもつため、病態のすべてがH3K56acだけで説明できるわけではありません。それでも「特定のエンハンサーでのSIRT6–H3K56ac–ユートロフィン」というつながりは、かなり説得力があります。
真菌感染症 ─ 証拠は中〜強
書き手であるRtt109が真菌に特有で、ヒトにそのままの相手をもたないことは、抗真菌薬の標的として魅力的です。カンジダなどの病原真菌では、H3K56acの制御を壊すことが増殖やDNA損傷への耐性に大きく影響します。2010年の研究では、H3K56acの制御を抗真菌治療の戦略として実験的に検討し、H3K56acを減らすとカンジダが抗真菌薬に弱くなることが示されました[13]。ヒトにない酵素を狙うため、ヒト細胞への影響を抑えられる可能性がある、という発想です。この領域は、ヒトのがんバイオマーカーとしてのH3K56acよりも、むしろ確かな証拠をもっています。
9. ヒトで研究するときの大きな注意点
ここまで見てきたように、酵母では登場人物がそろっているのに、ヒトでは話が一気に不確かになります。その背景には、ヒトのH3K56acに特有の、いくつかの技術的な難しさがあります。これは、過去の研究結果を読むうえでも欠かせない視点です。
💡 なぜ「ヒトのがんの目印」と単純に言えないのか
第一に、ヒトのH3K56acは酵母よりはるかに存在量が少ないことが、質量分析という精密な測定で示されています[16]。第二に、H3K56acを検出するために広く使われてきた市販の抗体が、別の目印(とくにH3K9ac)と交差反応してしまうことが報告されています。ある研究では、市販のH3K56ac抗体がヒトやショウジョウバエの細胞で非特異的だったと結論づけられました[17]。つまり「抗体で強い信号が見えた」ことが、必ずしも本物のH3K56acを見ているとは限らないのです。ヒト細胞でH3K56acの細胞周期変化に関する研究結果がばらつくのも、この抗体の問題で少なくとも一部説明できるとされています[16]。
こうした事情から、ヒトのH3K56acを調べるときには、抗体だけに頼らず、質量分析のような別の方法で裏づけを取ることが、事実上ほぼ必須と考えられています。抗体で強い信号が見えるのに精密な質量分析で再現できない場合は、まず抗体の交差反応を疑うべきだ、というのが基本的な考え方です。
もうひとつの注意点は、研究でよく使われる「変異を使った再現」です。H3K56をアルギニン(K56R)に変えると「アセチル化できない状態」を、グルタミン(K56Q)に変えると「アセチル化された状態」を、それぞれ真似できるとされます。しかし、アルギニンもグルタミンも、本物のアセチル化リジンと化学的にまったく同じではありません。ですから、これらの変異の結果だけから「アセチル化された・されない状態」を断定するのは危険です。K56だけを狙って本物のアセチル化を再現する手法[12]と、変異を使う方法を、うまく組み合わせて検証することが理想とされています。
10. 遺伝診療との接点 ─ 用語としての位置づけ
H3K56acは、いまのところ基礎研究が中心の分野であり、日常の遺伝診療で直接検査する対象ではありません。それでも、この用語を知っておくことには意味があります。なぜなら、H3K56acの研究は「遺伝子のはたらきを、DNAの文字だけで判断してはいけない」という、遺伝診療に通じる考え方を教えてくれるからです。
同じDNAの並びでも、ヒストンに付く目印の付き方によって、遺伝子の読まれ方は変わります。そして、その目印を付け外しする酵素(サーチュインなど)に変化が生じれば、体に影響が及ぶこともあります。実際、SIRT6のような酵素は、筋ジストロフィーのモデルで見たように、特定の遺伝子のはたらきを大きく左右しうるのです。こうしたエピジェネティクスの視点は、遺伝子検査で見つかった変化が体にどう影響しうるかを考えるうえで、判断材料のひとつになります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのか、といった点です。H3K56acのような基礎的なしくみそのものを検査するわけではありませんが、「遺伝子の働きをどう読み解くか」という理解の土台として、こうした用語は役に立ちます。正確な診断に基づいて選択肢を検討するための材料を、中立的に整理することが遺伝カウンセリングでは重要です。
まとめ ─ 「付いて、働いて、外される」目印
H3K56acは、「安定して長く残るエピジェネティックな記憶の目印」というより、とくに真菌では、新しく作られたヒストンを一時的に標識し、DNAの複製・修復のあとのクロマチンの整え直しを進め、役目を終えると消される、動的なクロマチン成熟のシグナルとして理解するのが、現在もっとも説明力の高い見方です。付けること、読み取ること、そして外すことのすべてに意味があり、そのリズムそのものが大切なのです。
この見方は、Rtt109・Asf1の生化学、CAF-1・Rtt106によるヒストンの沈着、K56だけを狙った物理的な解析[12]、Hst3・Hst4の遺伝学、そして2025年の新しいクロマチン成熟の解析[20]を、一貫して説明します。一方、ヒト、がん、老化については、同じ確信度で語るべきではありません。存在量の少なさと測定の難しさが、依然として大きな制約として残っています。だからこそ、H3K56acは「わかっていること」と「まだわからないこと」を区別しながら学ぶのにふさわしい、重要な用語だと言えます。
よくある質問(FAQ)
Q1. H3K56acとは何ですか?
H3K56acとは、DNAを巻きつけるヒストンH3というタンパク質の56番目のリジン(アミノ酸のひとつ)に、アセチル基という小さな目印が付いた状態のことです。この目印は、DNAがヌクレオソームに出入りする入口・出口の近くにあり、DNAに直接触れる特別な場所に位置します。新しく作られたヒストンに付き、DNAの複製・修復のあとのクロマチンを整え直す作業を助けたあと、外されます。
Q2. H3K56acはいつ付いて、いつ外れるのですか?
酵母では、DNAをコピーするS期に、新しく作られたヒストンに付きます。そしてDNAに損傷がなければ、S期のあとのG2期に大部分が外されます。この「付いて、使われて、外される」というサイクルが、細胞周期のリズムに合っています。ただしDNAに切断があると、修復が終わるまで目印は外されずに維持されます。
Q3. H3K56acを付けたり外したりするのは何ですか?
酵母では、付ける酵素(書き手)がRtt109、外す酵素(消し手)がHst3とHst4です。Hst3・Hst4はサーチュインというファミリーに属し、はたらくときにNAD⁺という補酵素を使います。ヒトでは、CBP/p300が付ける酵素の候補、SIRT6などが外す酵素の候補とされていますが、酵母ほどはっきり確定していません。
Q4. H3K56acはがんの目印になりますか?
一部の研究では、がん細胞でH3K56acが高いと報告されていますが、「がんの目印として確立している」と言うのは適切ではありません。ヒトのH3K56acは存在量が少なく、検出に使う抗体が別の目印と交差反応してしまう問題も報告されています。そのため、ヒトの腫瘍でH3K56acそのものが原因だとする証拠は、現在も限られています。
Q5. H3K56acは病気の治療と関係がありますか?
研究段階ですが、いくつかのつながりが報告されています。デュシェンヌ型筋ジストロフィーのモデルマウスでは、SIRT6を失わせてH3K56acを増やすと、ユートロフィンというタンパク質が増えて症状が改善しました。また、H3K56acを付ける酵素Rtt109は真菌に特有なので、抗真菌薬の標的として研究されています。ただし、いずれもまだ研究の段階であり、日常の診療で直接H3K56acを検査するわけではありません。
参考文献
- [1] Characterization of lysine 56 of histone H3 as an acetylation site in Saccharomyces cerevisiae. J Biol Chem. 2005. [PubMed 15888442]
- [2] Acetylation in histone H3 globular domain regulates gene expression in yeast. Cell. 2005. [PubMed 15882620]
- [3] A role for cell-cycle-regulated histone H3 lysine 56 acetylation in the DNA damage response. Nature. 2005. [PubMed 16015338]
- [4] Cell cycle and checkpoint regulation of histone H3 K56 acetylation by Hst3 and Hst4. Mol Cell. 2006. [PubMed 16818235]
- [5] The sirtuins Hst3 and Hst4p preserve genome integrity by controlling histone H3 lysine 56 deacetylation. Curr Biol. 2006. [PubMed 16815704]
- [6] Yeast Rtt109 promotes genome stability by acetylating histone H3 on lysine 56. Science. 2007. [PubMed 17272722]
- [7] Rtt109 acetylates histone H3 lysine 56 and functions in DNA replication. Science. 2007. [PubMed 17272723]
- [8] Acetylation of histone H3 lysine 56 regulates replication-coupled nucleosome assembly. Cell. 2008. [PubMed 18662540]
- [9] Cell cycle- and chaperone-mediated regulation of H3K56ac incorporation in yeast. PLoS Genet. 2008. [PMC2581598]
- [10] CBP/p300-mediated acetylation of histone H3 on lysine 56. Nature. 2009. [PubMed 19270680]
- [11] Histone H3 lysine 56 acetylation is linked to the core transcriptional network in human embryonic stem cells. Mol Cell. 2009. [PubMed 19250903]
- [12] A method for genetically installing site-specific acetylation in recombinant histones defines the effects of H3 K56 acetylation. Mol Cell. 2009. [PubMed 19818718]
- [13] Modulation of histone H3 lysine 56 acetylation as an antifungal therapeutic strategy. Nat Med. 2010. [PubMed 20601951]
- [14] Structural basis for recognition of H3K56-acetylated histone H3-H4 by the chaperone Rtt106. Nature. 2012. [PubMed 22307274]
- [15] SIRT6 recruits SNF2H to DNA break sites, preventing genomic instability through chromatin remodeling. Mol Cell. 2013. [PubMed 23911928]
- [16] Cell cycle-dependent changes in H3K56ac in human cells. Cell Cycle. 2015. [PubMed 26645646]
- [17] The commercial antibodies widely used to measure H3 K56 acetylation are non-specific in human and Drosophila cells. PLoS One. 2016. [PubMed 27187594]
- [18] TRIM66 reads unmodified H3R2K4 and H3K56ac to respond to DNA damage in embryonic stem cells. Nat Commun. 2019. [PubMed 31537782]
- [19] Inactivation of Sirt6 ameliorates muscular dystrophy in mdx mice by releasing suppression of utrophin expression. Nat Commun. 2022. [PMC9300598]
- [20] H3K56 acetylation regulates chromatin maturation following DNA replication. Nat Commun. 2025. [PubMed 39746969]






