

目次
- 1 1. SP7(Osterix)遺伝子とは ─ 骨をつくる細胞を育てる司令塔
- 2 2. 遺伝子とタンパク質の構造 ─ 「骨専用」に進化したジンクフィンガー
- 3 3. 骨づくりの流れ ─ SP7はどの段階ではたらくのか
- 4 4. 上流の制御 ─ RUNX2・BMP・Wntは同じ「上流」ではない
- 5 5. DLX5と骨特異性 ─ SP7の作用機構をめぐる大きな考え方の転換
- 6 6. 下流の標的遺伝子 ─ 「標的」にも証拠の強さの違いがある
- 7 7. 大人の骨と骨細胞 ─ SP7は「発生のときだけ」の因子ではない
- 8 8. 骨形成不全症との関わり ─ ヒトでのSP7の病気
- 9 9. 骨密度との関わり ─ ありふれた個人差と、まれな病気は分けて考える
- 10 10. よくある誤解
- 11 まとめ ─ 骨づくりの司令塔をどう読み解くか
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
骨は、一度できたら終わりの硬い石ではなく、専門の細胞たちがつくり替え続けている「生きた組織」です。その骨づくりの現場で、骨をつくる細胞(骨芽細胞)を一人前に育て上げる司令塔のような役割を担うのが、SP7(エスピーセブン)遺伝子です。SP7は別名Osterix(オステリックス/Osx)とも呼ばれ、この遺伝子がうまく働かないと、骨がもろくなる病気(骨形成不全症)が起こることが分かっています。この記事では、SP7遺伝子がどんな働きをしているのか、RUNX2やDLX5といった他の遺伝子とどう連携しているのか、そして骨の病気や骨密度とどうつながるのかを、現在の医学的知見に基づいて解説します。
Q. SP7(Osterix)遺伝子とは何ですか?まず結論だけ知りたいです
A. SP7(Osterix)は、骨をつくる細胞である「骨芽細胞(こつがさいぼう)」を成熟させ、骨の土台となるコラーゲンなどをつくらせるために欠かせない「転写因子」(遺伝子のスイッチ役のタンパク質)をつくる遺伝子です。骨づくりの司令塔であるRUNX2という遺伝子の下流ではたらき、DLX5という別の因子と手を組んで、骨づくりに必要な多くの遺伝子のスイッチを入れます。SP7が両方の親から受け継いだ遺伝子(両アレル)で働かなくなると、骨がもろくなる骨形成不全症という病気が起こります。また、SP7の近くにある、ありふれた遺伝子の個人差は、一般の人の骨密度や身長とも関係することが知られています。
- ➤正体 → 骨芽細胞の成熟に必須の転写因子(Osterix/Osx)をつくる遺伝子。ヒトでは12番染色体にある
- ➤位置づけ → 骨づくりの階層で「RUNX2 → SP7 → 成熟した骨芽細胞」という流れの中核
- ➤はたらき方 → 単独でDNAを読むだけでなく、DLX5という因子に導かれて骨特異的なスイッチ(エンハンサー)ではたらく
- ➤大人でも必要 → 発生のときだけでなく、大人の骨や骨細胞のネットワーク維持にもはたらく
- ➤病気とのつながり → 両アレルの機能喪失で骨形成不全症。近くの遺伝子の個人差は骨密度・身長とも関連
🧬 SP7(Osterix)遺伝子の基本情報
| 項目 | 内容 |
|---|---|
| 遺伝子名・別名 | SP7(エスピーセブン)。別名 Osterix(オステリックス)/Osx。「Sp/KLFファミリー」に属する転写因子 |
| 染色体上の位置 | ヒト12番染色体長腕(12q13.13)。すぐ近くにSp1やホメオボックス遺伝子群がある[2] |
| おもな役割 | 骨芽細胞の成熟と骨基質(コラーゲンなど)の産生を制御する。骨づくりに必須 |
| タンパク質の特徴 | C末端側に3個のC2H2型ジンクフィンガー(DNAに結合する部品)をもつ。431アミノ酸の長型と413アミノ酸の短型がある[2] |
| 関連する病気 | 両アレル変異による骨形成不全症(歴史的にⅫ型と分類)[5]。周辺の個人差は骨密度・成長とも関連[9] |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた解説です。特定の検査を勧めるものではありません。
1. SP7(Osterix)遺伝子とは ─ 骨をつくる細胞を育てる司令塔
私たちの骨は、大きく分けて2つのつくられ方をします。頭蓋骨などのように、間葉系(かんようけい)の細胞から直接骨ができる「膜性骨化(まくせいこつか)」と、いったん軟骨の型ができてから骨に置き換わる「軟骨内骨化(なんこつないこつか)」です。どちらの場合でも、実際に骨の材料を分泌して固めていくのは骨芽細胞(こつがさいぼう)という細胞です。SP7(Osterix)は、この骨芽細胞を一人前に育て上げるために欠かせない転写因子をつくる遺伝子です。
💡 用語解説:転写因子(てんしゃいんし)とは
遺伝子は、必要なときに必要な場所で「オン」になって、はじめてタンパク質という製品をつくります。この遺伝子のオン・オフを切り替える「スイッチ役」のタンパク質が転写因子です。SP7がつくるOsterixも転写因子の一つで、骨づくりに必要なたくさんの遺伝子のスイッチをまとめて入れる、いわば現場監督のような存在です。
SP7が骨づくりに欠かせないことが決定的に示されたのは、2002年の研究です。SP7を完全に失わせたマウスでは、軟骨の骨格そのものはほぼふつうにできる一方で、骨芽細胞が成熟できず、骨がほとんどつくられませんでした[1]。この結果から、SP7は「骨をつくるプログラムを実行に移すためのカギ」として位置づけられました。同じ研究では、SP7を失っても上流のRUNX2という因子は発現している一方、RUNX2を失うとSP7がうまく誘導されないことも示され、「RUNX2 → SP7 → 成熟した骨芽細胞」という順番が見えてきました[1]。
ただし、注意したいのは、この「順番」は発生の道すじを示すものであって、「RUNX2がSP7のスイッチを一人で直接押している」という単純な意味ではないことです。後の研究が進むにつれて、SP7は単なるRUNX2の子分ではなく、独自の巧みなはたらき方をもつことが分かってきました。この記事では、その最新像までを順に見ていきます。
2. 遺伝子とタンパク質の構造 ─ 「骨専用」に進化したジンクフィンガー
ヒトのSP7遺伝子は、12番染色体の長腕(12q13.13)にあります。すぐ近くには、よく似た仲間であるSp1という遺伝子や、体づくりを司るホメオボックス遺伝子群があります[2]。SP7は比較的コンパクトな3つのエクソン(設計図の本体部分)からできており、5′側(設計図の読み始め側)の使い方の違いによって、431アミノ酸の長い型と、その先頭が18アミノ酸短い413アミノ酸の短い型という2種類のタンパク質がつくられることが、初期の研究で確認されています[2]。骨芽細胞様の細胞では、むしろ短い型のほうが多くつくられていることも報告されていますが、この2つの型で機能にどんな違いがあるのかは、まだ十分には分かっていません。
💡 用語解説:ジンクフィンガー(zinc finger)
タンパク質が亜鉛(zinc)イオンを抱え込むことで、指(finger)のような小さな立体構造をつくり、これでDNAをつかむ仕組みを「ジンクフィンガー」といいます。SP7は、このジンクフィンガーをC末端(タンパク質の後ろ側)に3個もっています。DNAをつかむだけでなく、後で登場するDLX5という相棒と結びつく面としても使われる、重要な部品です。
ここがSP7のおもしろいところです。SP7はSp1と同じ「Sp/KLFファミリー」に属するので、発見当初は「Sp1の骨バージョン」、つまりSp1と同じようにGCの多い決まった配列(GCボックス)に直接くっついて遺伝子を動かすのだろう、と考えられていました。ところが実際には、SP7のジンクフィンガーには他のSpファミリーとは違うアミノ酸があり、この違いのために典型的なGCボックスへの結合力が弱まっていることが分かってきました[3]。つまりSP7は、Sp1の単なる骨版とは言えない、独自の性質をもった因子なのです。この「骨専用」ともいえるジンクフィンガーの型は、骨をもつ脊椎動物の登場と深く関わっていることも示唆されています[3]。
🩺 院長コラム【同じ「家系」でも役割は違う】
遺伝子には「ファミリー(同じ祖先から分かれた仲間)」という考え方があります。SP7はSp1と同じファミリーですが、名字が同じでも役割がまったく違う親戚がいるように、SP7はSp1とは異なる仕事を担うように進化しました。臨床遺伝専門医として遺伝子を読むときも、「名前が似ているから働きも同じだろう」という思い込みは禁物です。配列のわずかな違いが、細胞の中でのふるまいを大きく変えることを、SP7はよく教えてくれます。
3. 骨づくりの流れ ─ SP7はどの段階ではたらくのか
骨芽細胞は、間葉系幹細胞という「もとになる細胞」から、いくつかの段階を経て成熟していきます。SP7がはたらくのは、その道のりの中盤から後半です。全体像をまず図で見てみましょう。
発生の途中では、まずRUNX2という因子が「これから骨芽細胞になる」という準備段階(前骨芽細胞)を用意します。そこにSP7が誘導されることで、細胞は実際に骨の材料をつくる成熟した骨芽細胞へと進むことができます。SP7を失ったマウスでは、RUNX2陽性の準備段階までは進むのに、その先の成熟した骨芽細胞への移行が止まってしまいます[1]。これが「RUNX2が舞台を整え、SP7が本番を実行する」という二段階モデルの根拠です。
そして重要なのは、SP7の役割が成熟した骨芽細胞になった時点で終わるわけではない、という点です。骨芽細胞の一部は、自分がつくった骨基質の中に埋まって骨細胞(こつさいぼう)という細胞へと姿を変えます。骨細胞は、細長い突起を四方に伸ばして網目状のネットワークをつくり、骨にかかる力を感じ取ったり、骨のつくり替えを指揮したりする、いわば骨の「センサー兼司令塔」です。SP7は、この骨細胞への移行や突起づくりにも関わっていることが、近年の研究で明らかになってきました[4]。詳しくは後の章で見ていきます。
4. 上流の制御 ─ RUNX2・BMP・Wntは同じ「上流」ではない
SP7を動かす「上流」の因子として、よくRUNX2、BMP、Wntの3つが挙げられます。ただし、この3つは種類の違う「上流」であり、ひとまとめに「SP7の上流経路」と語るのは正確ではありません。ここを分けて理解しておくと、SP7の全体像がぐっとつかみやすくなります。
RUNX2との関係は、最も証拠のしっかりした「発生上の順番」です。RUNX2が骨芽細胞系列を準備し、その後でSP7が誘導される、という階層は確かです[1]。ただし成熟した骨芽細胞の中では、RUNX2とSP7が同時に存在して協力し合っており、この協調はMAPKという別のシグナルによっても調節されると報告されています。つまり両者は、一方通行のカスケードというより、お互いに支え合う転写ネットワークの一部と考えるほうが実態に合っています。
BMP(骨形成タンパク質)は、外から骨芽細胞づくりを強く後押しする代表的な入力です。BMP2による刺激はSP7の発現を高めますが、これも「BMP2 → 1つの因子 → SP7」という単純な一本道ではなく、RUNX2やDLX5、SMAD/MAPK系など複数の経路が関わります。とくにDLX5は、後で述べるようにSP7のはたらき方そのものにも直結しているため、BMPとDLXの軸は「SP7を増やすこと」と「SP7がゲノム上でどう動くか」の両方に関わっている可能性があります。
Wnt(ウィント)シグナルも、骨芽細胞が生まれ、維持されるうえで重要です。動物実験では、間葉系の前駆細胞でWntのはたらき(β-カテニンを介する経路)が、骨芽細胞と軟骨細胞のどちらになるかの運命選択に必須であることが示されています。ただし、これは「β-カテニンがSP7のスイッチに直接くっついてSP7を一方向に増やす」ことを証明したものではありません。したがって、Wntは強い生物学的な関わりをもつものの、RUNX2ほど単純な直接の階層として描くべきではありません。Wntシグナルの実行役であるβ-カテニンをつくるCTNNB1遺伝子については、別ページでも解説しています。
💡 ここが誤解されやすいポイント
ネット上の図解では、「BMP → RUNX2 → SP7」や「Wnt → SP7」を一本の矢印でつないだ単純な絵をよく見かけます。しかしRUNX2は発生上の順番、BMPは外からの骨形成シグナル、Wntは運命選択や成熟を広く制御するシグナルと、性質がまったく違います。この区別をしない図は、SP7の実際のはたらきを単純化しすぎています。
さらにSP7は、ブレーキをかける「負の制御」も強く受けます。がん抑制因子として有名なp53(TP53遺伝子の産物)は、SP7と直接くっついてその転写活性を抑え、COL1A1やIBSPといった骨関連遺伝子でのSP7のはたらきや、DLX5との協調を妨げることが報告されています[6]。DNAの傷やストレスへの応答と、骨づくりとの接点の一つが、このp53とSP7の関係なのです。また、クロマチン(DNAの巻き取り状態)を調節するNO66というタンパク質もSP7に結合してそのはたらきを抑えることが知られており、SP7の活性は単にDNAに結合するかどうかだけでなく、まわりのクロマチンの状態にも左右されます[7]。
5. DLX5と骨特異性 ─ SP7の作用機構をめぐる大きな考え方の転換
SP7研究における最大の考え方の転換は、2016年の研究によってもたらされました。前に述べたとおり、SP7は当初「Sp1のようにGCボックスに直接結合する因子」と考えられていました。ところが、ゲノム全体でSP7がどこに結合するかを網羅的に調べたところ、結合部位の多くが典型的なGCの多い配列ではなく、ATの多い「DLX型」の配列に偏っていたのです[3]。
💡 用語解説:エンハンサーとDLX(ディーエルエックス)
遺伝子のスイッチには、遺伝子のすぐ手前にある「プロモーター」と、遠く離れた場所から働きを強める「エンハンサー」があります。DLX(DLX3/5/6)は、体づくりに関わるホメオボックス転写因子の仲間で、骨芽細胞のエンハンサーにあるATの多い配列に結合します。SP7はこのDLX、とくにDLX5に導かれて、同じエンハンサーの複合体に組み込まれる、と考えられています。
この研究は、免疫沈降やゲル実験、DLXを抑える実験、そしてマウスを使ったエンハンサーの検証などを組み合わせて、「SP7はDLX5を介して骨芽細胞のエンハンサーに引き寄せられる」というモデルを示しました[3]。SP7のジンクフィンガーにある特徴的なアミノ酸は、GCボックスへの結合を弱める一方で、同じ領域がDLX5と結びつく面としても使われていたのです。つまりSP7は、自分だけでDNAを読む因子であると同時に、骨芽細胞に特有のDLX依存性の複合体のなかで働く「コファクター(補助因子)」でもある、という二面性をもっていました。
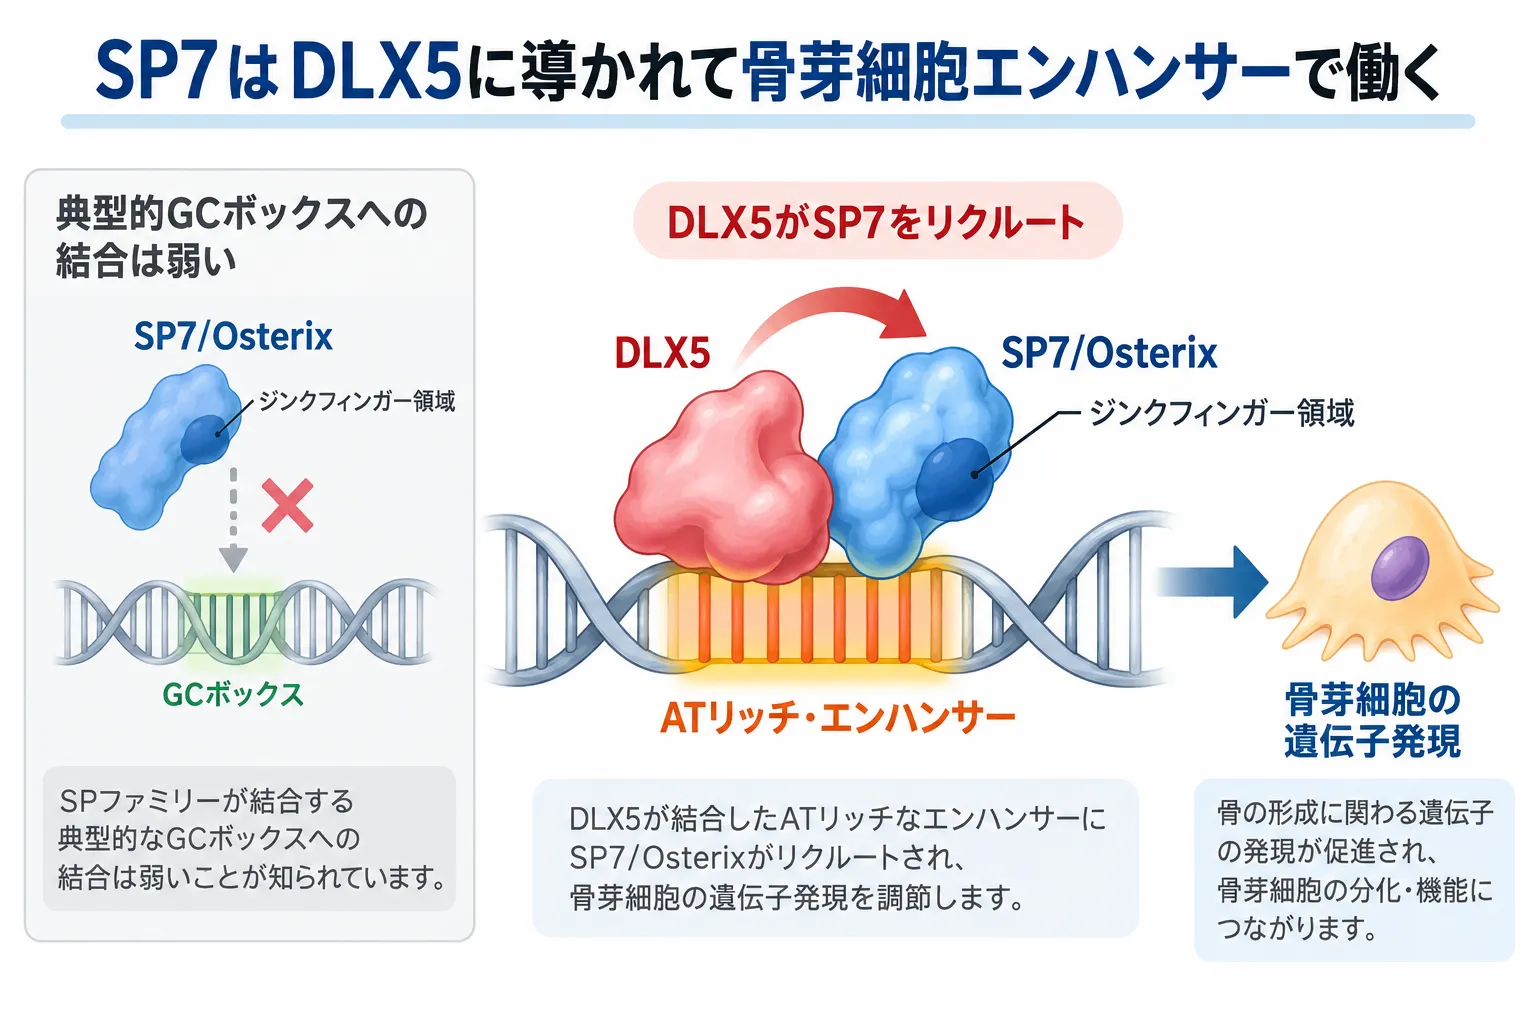
SP7(Osterix)はSp/KLFファミリーに属しますが、典型的なGCボックスへの直接結合は弱く、骨芽細胞ではDLX5などのDLX因子を介してATリッチなエンハンサーへリクルートされます。このDLX5–SP7の協働によって骨形成に関わる遺伝子の発現が調節され、骨芽細胞の分化・機能が支えられます。
この発見は、SP7の「骨特異性」の一部が、SP7自身が骨でだけ発現していることに加えて、DLXという相棒との組み合わせから生まれていることを意味します。1つの因子だけでは決まらない、複数の因子の掛け算で場所と標的が決まる——これは、遺伝子の働きを読み解くうえでとても大切な視点です。なお、この2016年より前の古い解説では「SP7=典型的なGCボックス結合因子」と書かれていることが多いので、今の理解としてそのまま受け取らないよう注意が必要です。
6. 下流の標的遺伝子 ─ 「標的」にも証拠の強さの違いがある
SP7が動かす「下流の遺伝子」を考えるときは、証拠の強さに3つの段階があることを区別しておくと、情報に振り回されずにすみます。第一は「SP7が無くなると発現が変わる」だけの遺伝子、第二は「SP7が実際に結合しているのが確認された」遺伝子、第三は「結合・SP7を操作したときの変化・スイッチ配列の実験」まで揃った本物の直接標的です。古い文献では、この3つがまとめて「標的」と呼ばれてしまっていることがあるので、解釈には注意が要ります。
最も重要な候補の一つが、I型コラーゲンをつくるCOL1A1遺伝子です。SP7の結合を調べた実験ではCOL1A1の周辺に明瞭な結合領域が見つかり、DLX5との共占有も観察されました[3]。また、SP7を低下・欠失させたマウスではCol1a1の発現と骨基質の形成が障害されます[4]。したがってSP7は、I型コラーゲンをつくるプログラムを強く制御していると考えられます。ただし、そのすべてが遺伝子のすぐ手前の1つのGCボックスを通しているわけではなく、遠くのエンハンサーを含む複数のスイッチが関わっているようです。I型コラーゲンは、SP7がつくる骨の材料そのものであり、COL1A2遺伝子とともに骨・皮膚・血管を支えるタンパク質の設計図です。
💡 用語解説:直接標的(ちょくせつひょうてき)とは
ある転写因子が「この遺伝子を動かしている」と言うためには、いくつかの証拠のレベルがあります。「その遺伝子に実際にくっついている」「その因子を減らすと標的の働きが変わる」「くっつく場所の配列を壊すと効果が消える」——これらが揃ってはじめて、確かな「直接標的」と言えます。SP7の場合、遺伝子ごとにこの証拠の強さが異なる点が、正確に理解するうえで大切です。
機構的にとくにしっかり検証された例が、NOTCH2という遺伝子の候補エンハンサーです。SP7の結合を手がかりにエンハンサーを見つけ、その配列が骨芽細胞の分化時に活性を示し、SP7を減らすと活性が下がり、さらにマウスでもそのエンハンサーが骨づくりの場所で働くことが確かめられました[3]。これは「結合がある」という相関だけでなく、SP7への依存性と体内での働きまで組み合わせた、強い証拠です。一方、IBSP(骨シアロタンパク質)、BGLAP(オステオカルシン)、SPP1(オステオポンチン)といった古典的な骨基質遺伝子も、多くの研究でSP7に依存することが示されてきましたが、「直接結合」の証拠の強さは遺伝子ごとに異なります。
古典的な「SP7がGCの多い配列を直接読む」モデルの代表例としては、軟骨やコラーゲンを分解する酵素MMP13が、SP7の直接標的として報告されています。これは、後のDLX/ATリッチ・エンハンサーのモデルと必ずしも矛盾しません。一部のプロモーターではSP7がGC配列を使い、ゲノム全体ではDLXに依存したATリッチなエンハンサーへの引き寄せが優勢——という、遺伝子や細胞の状態によって使い分ける考え方が、両者を無理なく統合します。どの遺伝子・どの発生段階でどちらが優位かは、まだ研究途上です。
7. 大人の骨と骨細胞 ─ SP7は「発生のときだけ」の因子ではない
SP7の役割は、胎児の骨づくりだけでは終わりません。生まれた後にSP7を失わせる研究では、新しい骨の形成、成長板近くの骨化、骨芽細胞・骨細胞の成熟、そして骨の恒常性(バランスの維持)が障害されることが示され、SP7が発生期だけのスイッチではないことが確立しました。
2024年の研究は、この点をさらに詳しく調べました。SP7の発現量を野生型の約30%まで下げたマウスや、骨芽細胞でSP7を欠失させたマウスを解析したところ、成熟が妨げられて未熟な骨芽細胞がむしろ増える一方で、最終的な石灰化(骨が硬くなること)は低下しました[4]。培養実験ではALP(アルカリホスファターゼ)という分化の目印は必ずしも下がらなかったため、ALPだけを「正常な骨づくり」の代用の目印にすると、SP7の表現型を見誤る可能性があるという、実験上の重要な注意点も示されました[4]。
さらにこの研究では、背骨の海綿骨(スポンジ状の骨)の量は欠失で減る一方、長い骨の一部では性別によって逆方向の変化が見られるなど、SP7は「多ければ多いほど骨量が増える」という単純な因子ではないことも分かりました[4]。皮質骨(骨の外側の硬い層)は薄く多孔性になり、骨細胞の突起や骨小管(こつしょうかん)ネットワークが減り、骨細胞の死や骨吸収の指標が増えました。SP7は、骨をつくる速さだけでなく、骨芽細胞が成熟するタイミング、骨細胞のネットワーク、そして骨をつくる・壊すのバランスまでを、段階に応じて調節していると考えられます。
この骨細胞の突起づくりに関わる標的として注目されているのが、Ostn(オステオクリン)という遺伝子です。SP7を欠失させると骨細胞の突起に明らかな異常が出ること、そしてOstnがSP7の標的として突起づくりを促し、SP7欠損の異常を補えることが報告されています[8]。同じ研究では、まれなヒトのSP7変異(R316C)をもつ患者でも骨細胞の形に異常が見られることが示され、マウスの知見がヒトにもつながることが確かめられました[8]。ただし、骨細胞の突起づくりはOstn一つだけで説明できるものではなく、細胞骨格や細胞外基質など複数のプログラムが関わっていると考えられます。
🩺 院長コラム【「量」ではなく「タイミング」の遺伝子】
SP7は「増やせば骨が増える」という単純な因子ではなく、成熟のタイミングやネットワークづくりを整える役割をもっています。臨床遺伝専門医として文献を踏まえると、こうした「量ではなく質やタイミングを決める遺伝子」は、変異があったときの影響を予測するのが難しい対象です。マウスで「発現量が3割になるとこうなる」という結果が出ても、それをそのままヒトの一方の遺伝子だけの変化のリスクに置き換えることはできません。数字の背後にある仕組みまで含めて読み解く姿勢が求められます。
8. 骨形成不全症との関わり ─ ヒトでのSP7の病気
SP7がヒトの骨の病気に関わることは、実際の患者さんの報告からも裏づけられています。2010年、エジプトの子どもで、SP7の両アレル性のフレームシフト変異(両方の親から受け継いだ遺伝子がともに壊れるタイプの変化)が報告されました[5]。この患者さんには、軽い外傷での骨折の繰り返し、四肢の軽度の変形、著しい運動発達の遅れ、歯の萌出(ほうしゅつ/生えてくること)の遅れなどが見られました[5]。この病気は、歴史的な分類では骨形成不全症Ⅻ型と呼ばれてきました。
💡 用語解説:フレームシフト変異と両アレル性
フレームシフト変異とは、DNAの文字が抜けたり増えたりして、そこから先の設計図の「読み枠」がずれてしまう変化です。多くの場合、正常なタンパク質がつくれなくなります。「両アレル性(りょうアレルせい)」とは、母親由来・父親由来の2本の遺伝子の両方に変化がある状態のこと。片方だけなら症状が出にくく、両方揃うと発症する遺伝のしかたを「常染色体潜性(劣性)遺伝」といいます。
ここで大切なのは、SP7がコラーゲンそのものの遺伝子ではない、という点です。骨形成不全症の多くは、骨の主成分であるI型コラーゲンをつくるCOL1A1やCOL1A2の変異で起こります。一方SP7は、コラーゲンを「つくる側」の骨芽細胞のプログラムそのものを壊すことで骨形成不全症を起こします[5]。同じ「骨がもろくなる病気」でも、原因となる遺伝子の役割は少しずつ異なるのです。骨形成不全症の全体像については、総論のページで詳しく解説しています。
SP7による骨形成不全症は、その後もいくつかの報告が加わっています。両アレル性(潜性)のタイプに加えて、近年では片方のアレルの変異(顕性/優性)でも骨のもろさが生じうることが報告されました[10]。ただし、SP7についてはCOL1A1やCOL1A2のような大規模な変異のカタログはまだ確立しておらず、ヒトでの病気の姿はマウスに比べてまだ解像度が低いのが現状です。新しいミスセンス変異や調節領域の変化の意味を評価するには、家系での分析、機能解析、集団での頻度、骨の所見を統合していく必要があります。
💡 用語解説:ミスセンス変異
DNAの1文字が変わることで、タンパク質を構成するアミノ酸が別のものに置き換わる変化を「ミスセンス変異」といいます。前に出てきたヒトのSP7変異(R316C)も、316番目のアミノ酸がアルギニン(R)からシステイン(C)に変わったミスセンス変異です。フレームシフトのようにタンパク質全体を壊すのではなく、一部の性質だけを変えるため、影響の大きさは変異の場所や種類によってさまざまです。
9. 骨密度との関わり ─ ありふれた個人差と、まれな病気は分けて考える
SP7がある12番染色体のこの領域は、まれな骨形成不全症だけでなく、一般の人の骨密度や成長にも関わることが分かっています。2009年の研究は、子どもを含む集団を対象にしたゲノムワイド関連解析(GWAS)で、SP7(Osterix)周辺のありふれた個人差(SNP)が、骨密度や身長といった指標と関連することを示しました[9]。この関連は、子どもだけでなく大人でも確認され、複数の集団を合わせた解析でも強い関連が見られています[9]。
💡 「病気の変異」と「体質の個人差」は別物
ここで区別したいのは、まれで影響の大きい「病気を起こす変異」と、ありふれていて影響の小さい「体質レベルの個人差」は、証拠の種類が違うということです。GWASで見つかる目印のSNPが、必ずしもSP7というタンパク質の働きを直接変えているとは限りません。近くの調節配列や、別の近隣遺伝子を介して影響している可能性も残ります。「SP7の近くに骨密度と関わる個人差がある」ことと「SP7の変異が骨形成不全症を起こす」ことは、分けて理解する必要があります。
こうした違いを踏まえると、SP7は「まれな重い病気」と「ありふれた体質の差」の両方に関係する遺伝子だと言えます。一方で、ヒトでのSP7の変異の全体像(どんな変異がどんな症状につながるのか)は、まだ空白の多い領域です。今後、ヒトの骨組織の詳しい解析や、患者由来の細胞を使った研究などを通じて、少しずつ明らかになっていくと期待されます。
10. よくある誤解
誤解①「SP7はRUNX2の単なる子分」
「RUNX2 → SP7」という発生上の順番は確かですが、成熟した骨芽細胞では両者が同時に存在して協力し合う関係です。一方通行のカスケードではなく、支え合う転写ネットワークの一部と考えるのが実態に近いです。
誤解②「SP7はSp1と同じGCボックス因子」
SP7はSp1と同じファミリーですが、ジンクフィンガーの違いでGCボックスへの結合が弱く、DLX5に導かれてATリッチなエンハンサーで働くのが主体です。Sp1の単なる骨版ではありません。
誤解③「SP7は発生のときだけ必要」
生まれた後にSP7を失わせると、骨芽細胞・骨細胞の成熟や骨の恒常性が乱れます。SP7は大人の骨や骨細胞のネットワーク維持にも必要な、生涯にわたって働く因子です。
誤解④「SP7は多いほど骨が増える」
SP7は量ではなく成熟のタイミングやネットワークづくりを整える因子です。増やせば比例して骨量が増えるという単純な関係は成り立たず、部位や性別で影響が異なります。
まとめ ─ 骨づくりの司令塔をどう読み解くか
SP7(Osterix)は、骨をつくる骨芽細胞を成熟させ、骨の材料をつくらせるために欠かせない転写因子です。RUNX2陽性の前駆細胞から先の骨芽細胞分化を成立させ[1]、成熟した骨芽細胞や骨細胞にも継続して必要であり[4]、ゲノム上ではDLX因子と協力する骨芽細胞特異的なエンハンサー因子として働きます[3]。これらが、現時点で最も確かなSP7の姿です。
一方で、それぞれのシグナル経路がSP7をどの段階で直接制御するのか、431型と413型のアイソフォームの機能差、GCボックス直接結合とDLXを介した引き寄せのどちらがどこで優位なのか、骨細胞の突起づくりの直接標的、性別や骨の部位による違い、そしてヒトでのSP7変異の全体像は、2026年の時点でも研究の余地が大きく残されています。SP7は、「一つの遺伝子の働きを、単純な一本道の図で理解してはいけない」ことを教えてくれる、よい教材でもあります。遺伝子検査で見つかった変化の意味を考えるときも、こうした背景の理解が、正確な判断の土台になります。
よくある質問(FAQ)
Q1. SP7(Osterix)遺伝子とは何ですか?
SP7(エスピーセブン、別名Osterix/Osx)は、骨をつくる細胞である骨芽細胞を成熟させ、骨の材料(コラーゲンなど)をつくらせるために欠かせない「転写因子」をつくる遺伝子です。転写因子とは、遺伝子のオン・オフを切り替えるスイッチ役のタンパク質のこと。SP7は、骨づくりの司令塔であるRUNX2の下流ではたらき、DLX5という因子と協力して、骨づくりに必要な多くの遺伝子を動かします。
Q2. SP7とRUNX2はどう違うのですか?
発生の順番としては「RUNX2 → SP7」で、RUNX2が骨芽細胞になる準備段階を用意し、その後にSP7が誘導されて成熟した骨芽細胞への移行を実行します。ただし、成熟した骨芽細胞の中では両者が同時に存在して協力し合っており、一方通行の関係ではありません。RUNX2は「骨格をつくるマスター転写因子」、SP7は「その先で骨づくりを実行させる因子」と考えると分かりやすいです。
Q3. SP7の変異でどんな病気が起こりますか?
両方の親から受け継いだSP7遺伝子がともに機能を失う(両アレル性の変異)と、骨がもろくなる骨形成不全症が起こります。骨折の繰り返し、軽度の骨変形、運動発達の遅れ、歯の生えるのが遅いといった症状が報告されており、歴史的な分類では骨形成不全症Ⅻ型と呼ばれます。近年は片方のアレルの変異でも骨のもろさが生じうることが報告されていますが、ヒトでのSP7変異の全体像はまだ研究途上です。
Q4. SP7は骨密度と関係がありますか?
関係があります。SP7(Osterix)の近くにある、ありふれた遺伝子の個人差(SNP)は、一般の人の骨密度や身長と関連することが、子どもを含む集団の研究で示されています。ただし、これは影響の小さい「体質レベルの個人差」であり、まれで影響の大きい「病気を起こす変異」とは区別して考える必要があります。また、目印となるSNPが必ずしもSP7の働きを直接変えているとは限りません。
Q5. SP7はコラーゲンの遺伝子ですか?
いいえ、違います。SP7はコラーゲンそのものの設計図ではなく、コラーゲンをつくる骨芽細胞の「プログラムを動かす司令塔(転写因子)」です。骨形成不全症の多くはコラーゲンをつくるCOL1A1・COL1A2の変異で起こりますが、SP7の場合は、コラーゲンをつくる側の細胞のプログラムを壊すことで、同じように骨がもろくなる病気を引き起こします。
🏥 骨がもろい・遺伝的な背景が気になる方のご相談
骨形成不全症をはじめとする遺伝性の骨の病気や、遺伝子検査の結果の意味について
お調べの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。検査結果や臨床所見に基づいて、医学的に適切な選択肢を検討します。
参考文献
- [1] The novel zinc finger-containing transcription factor osterix is required for osteoblast differentiation and bone formation. Cell. 2002. [PubMed 11792318]
- [2] Expression of alternatively spliced isoforms of human Sp7 in osteoblast-like cells. BMC Genomics. 2003. [PMC280673]
- [3] Sp7/Osterix Is Restricted to Bone-Forming Vertebrates where It Acts as a Dlx Co-factor in Osteoblast Specification. Dev Cell. 2016. [PubMed 27134141]
- [4] Roles of Sp7 in osteoblasts for the proliferation, differentiation, and osteocyte process formation. J Orthop Translat. 2024. [PubMed 39027344]
- [5] Identification of a frameshift mutation in Osterix in a patient with recessive osteogenesis imperfecta. Am J Hum Genet. 2010. [PubMed 20579626]
- [6] p53 inhibits SP7/Osterix activity in the transcriptional program of osteoblast differentiation. Cell Death Differ. 2017. [PubMed 28777372]
- [7] Regulation of the osteoblast-specific transcription factor Osterix by NO66, a Jumonji family histone demethylase. EMBO J. 2010. [PubMed 19927124]
- [8] Control of osteocyte dendrite formation by Sp7 and its target gene osteocrin. Nat Commun. 2021. [PubMed 34725346]
- [9] Common variants in the region around Osterix are associated with bone mineral density and growth in childhood. Hum Mol Genet. 2009. [PubMed 19181680]
- [10] Dominant osteogenesis imperfecta with low bone turnover caused by a heterozygous SP7 variant. Bone. 2022. [PubMed 35367406]






