

目次
- 1 1. H3K115acとは何か ─ 名前を一つずつ読み解く
- 2 2. なぜ「場所」が特別なのか ─ ダイアドという急所
- 3 3. H3K115acは何をするのか ─ 「壊れやすくする」修飾
- 4 4. 書き手と消し手 ─ まだ多くが謎のまま
- 5 5. ゲノム上のどこにあるのか ─ 2026年の大きな前進
- 6 6. 発生と生命にとっての重み ─ ショウジョウバエが教えること
- 7 7. 検出のむずかしさ ─ 「見えない」ことは「無い」ことではない
- 8 8. 遺伝医療との接点 ─ いまは「土台」の知識
- 9 9. よくある誤解
- 10 まとめ ─ 「壊れやすさ」を調整する修飾
- 11 よくある質問(FAQ)
- 12 参考文献
- 13 関連記事

私たちの体の設計図であるDNAは、ヒストンというタンパク質に巻きついて、細くて長い糸を小さな核の中に収めています。このヒストンには、あとから小さな目印(化学修飾)が付けられ、遺伝子のはたらきを調整する「第二の情報」として働きます。その一つがH3K115ac(ヒストンH3リジン115アセチル化)です。多くのヒストン修飾がヒストンの「しっぽ」の部分に付くのに対して、H3K115acはDNAが巻きつく芯のちょうど中心近くにあり、DNAとヒストンの結び付きそのものをゆるめる、少し変わった修飾です。この記事では、H3K115acとは何か、なぜ「ヌクレオソームを壊れやすくする」修飾と呼ばれるのか、そして最新の研究や遺伝医療とのつながりまでを解説します。
Q. H3K115acとは何ですか?
A. ヒストンH3という芯タンパク質の、115番目のリジン(K)というアミノ酸にアセチル基が付いた修飾です。この場所はDNAが巻きつく芯の中心(ダイアド)のすぐ下にあり、修飾が付くとDNAとヒストンの結び付きがゆるみ、ヌクレオソームが「壊れやすい(fragile)」状態になります。遺伝子が活発に働く場所に多く見られることが、2026年の研究で報告されました。
- ▶場所が特別:しっぽではなく、DNAが巻きつく芯の中心近くにある稀なタイプの修飾です。
- ▶はたらき:DNAとヒストンの結合をゆるめ、ヌクレオソームを解体されやすい状態にします。
- ▶書き手:H3K115acを担う主要なアセチル化酵素は、現時点では確立していません。p300/CBPが担うH3K122acの知見を、そのままK115へ外挿することはできません。
- ▶最新の分布:2026年、遺伝子が活発に働くCpGアイランド・エンハンサーなどに多いと報告されました。
- ▶遺伝医療:今は基礎研究が中心で、日常の検査対象ではありません。遺伝子の読み解き方を支える土台知識です。
1. H3K115acとは何か ─ 名前を一つずつ読み解く
「H3K115ac」という記号は、暗号のように見えますが、分解すると意味はとてもシンプルです。まず「H3」はヒストンH3というタンパク質を指します。ヒストンにはH2A・H2B・H3・H4という4種類があり、それぞれ2個ずつ集まった8個のかたまり(八量体)にDNAが約147塩基対巻きついて、ヌクレオソームという基本単位を作ります。次の「K115」は、そのH3タンパク質の115番目にあるリジン(アミノ酸の一つ、記号でK)という意味です。そして最後の「ac」が、アセチル化(acetylation)という化学修飾を表しています。つまりH3K115acは、「ヒストンH3の115番目のリジンにアセチル基が付いた状態」を指す言葉です。
💡 用語解説:アセチル化とは
アセチル化とは、アミノ酸に「アセチル基」という小さな部品を付ける化学修飾です。リジンはもともとプラスの電気(正電荷)を帯びていますが、アセチル基が付くとこの電気が打ち消されます。DNAはマイナスの電気を帯びているので、プラスとマイナスで引き合っていた力が弱まる——これがアセチル化の効果を理解するカギになります。
ヒストンの修飾には、アセチル化のほかにもメチル化やリン酸化など、いろいろな種類があります。これらはまとめて、DNAの塩基配列そのものは変えずに遺伝子のはたらきを調整する仕組み、すなわちエピジェネティクスの一部として研究されています。多くのアセチル化修飾は、ヒストンから外に伸びる「しっぽ(テール)」の部分に付き、そこを目印にして他のタンパク質が集まってくることで、遺伝子を活発にします。ところがH3K115acは、この一般的なパターンとは事情がかなり異なります。
2. なぜ「場所」が特別なのか ─ ダイアドという急所
H3K115acを理解するうえで最も大切なのは、その「場所」です。よく研究されているH3K9ac・H3K27acなどのアセチル化は、ヒストンから柔らかく伸びるしっぽの上にあり、DNAからは離れています。ところがK115は、ヒストンの芯(球状ドメイン)の中にあり、しかもDNAが巻きつく中心軸「ダイアド(dyad)」のすぐ下に位置しています[1]。ここはDNAのリン酸骨格とごく近い場所で、K115のプラスの電気がDNAのマイナスの電気と引き合い、DNAをヒストンにつなぎ止めるのに一役買っていると考えられています。
💡 用語解説:ダイアド(dyad)とは
ヌクレオソームは、DNAが糸巻きに巻きつくように芯のヒストンを取り囲んだ構造です。その「ちょうど真ん中」、DNAがヒストンの中心を横切る折り返し地点をダイアド(二回対称軸)と呼びます。ここはDNAとヒストンが最も強く接している急所の一つで、K115とK122という2つのリジンが、この付近でDNAの真下に隠れるように配置されています。
この場所にアセチル基が付くと、どうなるでしょうか。K115のプラスの電気が打ち消されるため、DNAとヒストンをつなぎ止めていた力が弱まります。研究チームは、化学合成の技術(発現タンパク質ライゲーション)を使って、K115だけ、あるいはK122だけを正確にアセチル化したヒストンを作り、それをヌクレオソームに組み込んで調べました。すると、アセチル化によってヒストン八量体とDNAの結び付きが実際に弱くなることが直接示されました[1]。ここで重要なのは、この実験が「K115Q」のような疑似的な変異体ではなく、本物のアセチル化リジンを使って確かめられた点です。
ただし、「結合が弱くなる」ことは「DNAが常に開きっぱなしになる」という意味ではありません。同じ研究で、DNAへのアクセスのしやすさ(制限酵素が切り込める度合い)を調べたところ、H3K115acは修飾のまわりのDNAの開きやすさを大きくは変えませんでした[1]。さらに、熱を加えたときのヌクレオソームの動きやすさ(スライドのしやすさ)も、H3K115ac単独ではほとんど変わりませんでした[1]。つまりH3K115acは、ヌクレオソームを「弱く」はするけれど、それだけで扉を開け放つわけではない、という繊細なふるまいをします。
3. H3K115acは何をするのか ─ 「壊れやすくする」修飾
では、DNAとの結合をゆるめるだけで、DNAを開きもしないなら、H3K115acは何の役に立っているのでしょうか。その答えのカギは、クロマチンリモデリングという現象にあります。
💡 用語解説:クロマチンリモデリングとは
細胞には、ATPというエネルギーを使ってヌクレオソームの位置をずらしたり、組み立てを解いたりする「クロマチンリモデリング因子」という機械のようなタンパク質があります。RSCやSWI/SNF(スイスニフ)と呼ばれる複合体が代表例で、DNAを読む・複製する・修復するときに、じゃまになるヌクレオソームを動かす役割を担います。
研究チームがRSCやSWI/SNFを使って調べたところ、H3K115ac、H3K122ac、または両者が付いていても、これらのリモデリング因子がヌクレオソームにくっつく量そのものは増えませんでした。一方、隣接したヌクレオソームを用いた解体実験では、H3K115acまたはH3K122ac単独で解体速度が約2.5〜3倍、両者を組み合わせると約5〜7倍に上昇しました[2]。X線を使った構造解析では、アセチル化されたK115・K122は溶媒(まわりの水)に接する位置にあるものの、リモデリング因子の「読み取り部分(ブロモドメイン)」とは結合せず、目印としては働いていないことも示されました[2]。
この結果は、H3K115acの役割について、とても示唆に富んでいます。一般的なしっぽのアセチル化は「ここに集まれ」という目印(reader を呼ぶタグ)として働きます。しかしH3K115acは、そうした呼び込み役ではなく、リモデリング因子が来たときに「壊しやすい状態」をあらかじめ作っておくタイプの修飾だと考えられます。言いかえると、扉に鍵の目印を付けるのではなく、扉の蝶番(ちょうつがい)をあらかじめゆるめておくようなイメージです。
結合がゆるむ正電荷が打ち消される
解体を促進K115ac単独:約2.5〜3倍
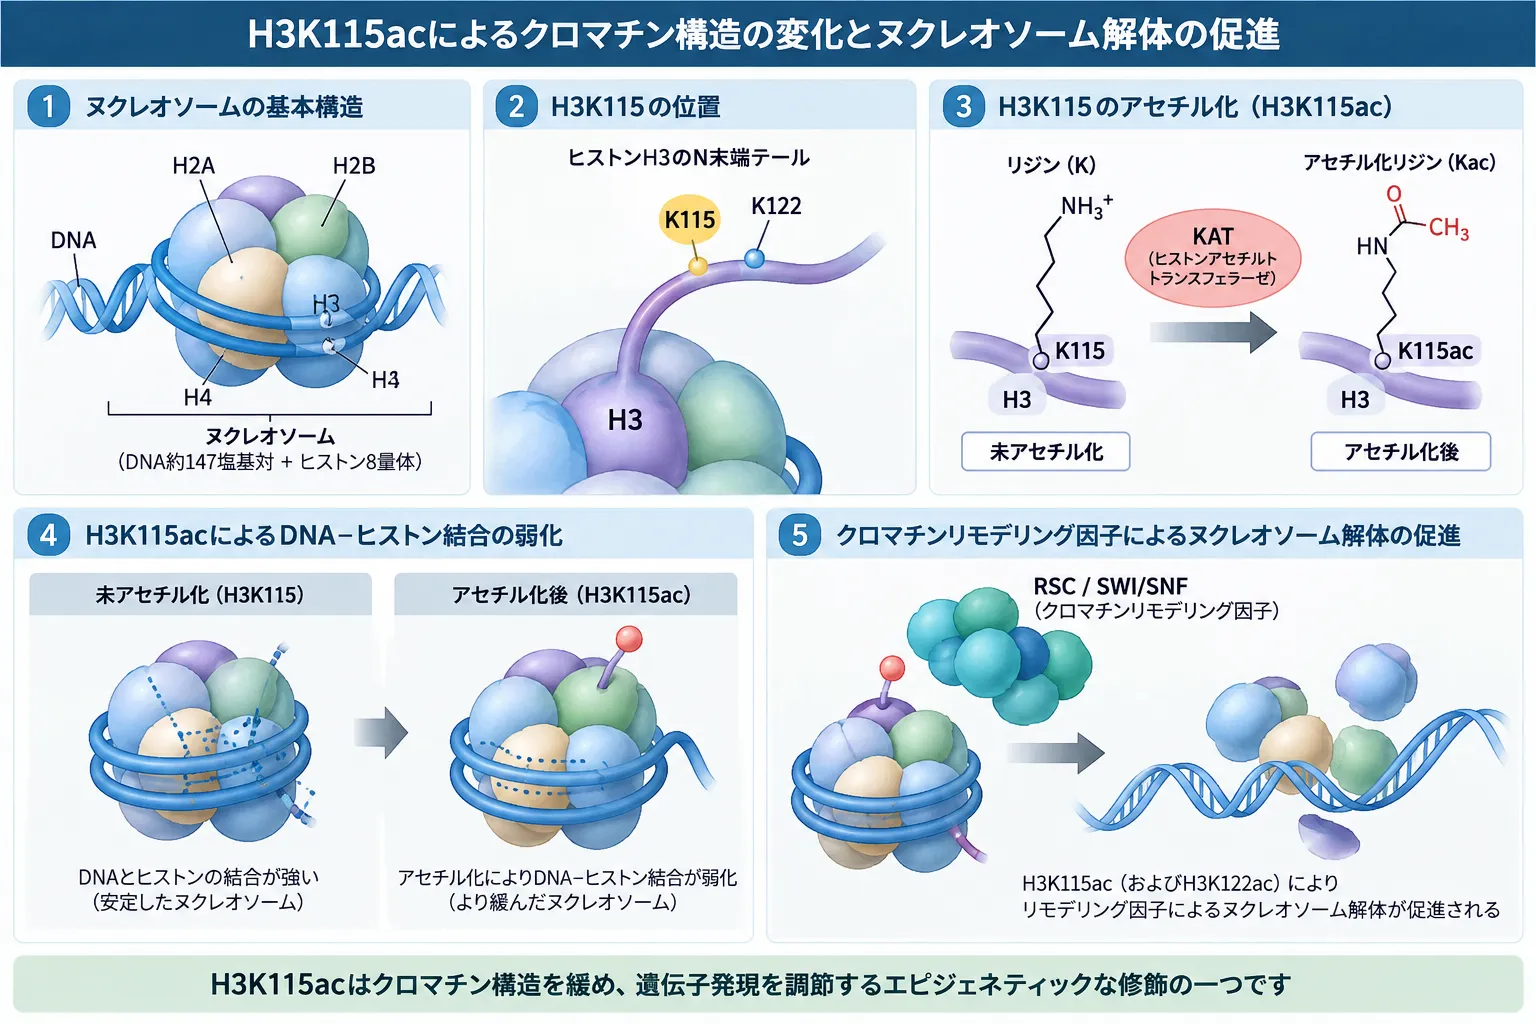
H3K115acは、ヒストンH3の115番目のリジンがアセチル化された修飾です。K115はヌクレオソームのダイアド付近に位置し、アセチル化によってDNAとヒストンの結合が弱まります。H3K115ac単独でDNAが大きく開くわけではありませんが、ヌクレオソームを不安定化し、RSCやSWI/SNFなどのクロマチンリモデリング因子による解体を促進します。
この「壊れやすさ」の性質は、隣にあるK56acやK122acと比べると、さらにはっきりします。別の研究では、K56acやH4のアセチル化はDNAの端がほどける動き(アンラッピング)を強めるのに対し、H3K115acとK122acを組み合わせても、ヌクレオソーム全体を通して制限酵素の切れやすさを1.6倍を超えて上げることはありませんでした[3]。つまり、同じ「芯のアセチル化」でも、場所によって効き方が違うのです。H3K115acは、静かにヌクレオソームの安定性だけを下げておく、控えめだけれど重要な修飾だと言えます。
4. 書き手と消し手 ─ まだ多くが謎のまま
エピジェネティクスの修飾には、それを付ける酵素(ライター=書き手)と、外す酵素(イレイサー=消し手)、そして読み取る因子(リーダー=読み手)がいるのが普通です。ところがH3K115acについては、この三者の多くが、まだはっきりわかっていません。
書き手(ライター)── 現時点では未確立
H3K115acの書き手(ライター)は、現時点では確立していません。p300(EP300遺伝子が作るタンパク質)は多くのヒストンリジンをアセチル化する酵素ですが、活性化因子によってp300を再構成クロマチンに呼び込み質量分析で調べた研究では、H3K9・K14・K18・K23・K27・K36・K37などが同定された一方、K115を含むペプチドは評価できず、K115のアセチル化は確認されていません[4]。したがって、この研究を根拠に「p300がH3K115acの書き手である」と断定することはできません。
p300とよく一緒に語られるCREBBP(CBP)についても、K115の書き手だと確定した証拠はありません。p300/CBPがH3K122acを担うことは示されていますが、隣接するK122の知見をそのままK115に当てはめることはできません。K115はDNAと近接するヌクレオソームのダイアド付近に位置するため、どのアセチル化酵素が、どのようなクロマチン状態でK115を修飾するのかは、なお解明が必要です。
消し手(イレイサー)と読み手(リーダー)── ほぼ空白
アセチル基を外す消し手については、さらにわかっていることが少ないのが現状です。ヒストンのアセチル化を外す酵素としてHDAC(ヒストン脱アセチル化酵素)やサーチュインが知られていますが、そのどれがH3K115acを担当しているのか、直接示した研究は今のところ見当たりません。しかも、多くの酵素を一度に調べた大規模な解析でも、使われたヒストンの断片の性質上、K115のアセチル化をそもそも評価できなかったことが報告されています[2]。つまりK115は、大規模な調査の「盲点」になりやすい場所なのです。
読み手についても、H3K115acを選んで読むタンパク質は確立されていません。むしろ、リモデリング因子が「くっつく量は増えないのに解体だけ速くなる」という結果は、H3K115acが目印として読まれる必要がなく、DNAとの結合をゆるめる物理的な効果そのもので働いていることを示しています[2]。K115acはDNAの真下に隠れているため、読み手が物理的に近づきにくい、という構造上の事情もあります。
📊 H3K115acに関わる因子と、わかっていることの整理
※「効き手」は本記事での便宜的な呼び方です。RSC/SWI/SNFはH3K115acを目印として認識するのではなく、その物理効果を利用して解体を進めます。
5. ゲノム上のどこにあるのか ─ 2026年の大きな前進
長い間、H3K115acは「試験管内では性質がよくわかっているのに、実際のゲノム上のどこにあるのかはほとんど不明」という状態が続いていました。H3K27acのように「ここが活性化の目印」と地図が描かれた修飾とは違い、H3K115acの全ゲノム地図はなかなか得られなかったのです。
比較対象として、隣のK122のアセチル化(H3K122ac)については、活発な転写に関わるゲノム領域との関連が早くから詳しく調べられていました[7]。しかしK115とK122は隣り合っていても効き方が違うため、K122の地図をそのままK115に当てはめることはできません。この状況を大きく変えたのが、2026年に報告されたKumarらの研究です[6]。この研究は、マウスのES細胞(さまざまな細胞になれる万能な細胞)を使って、H3K115acが全ゲノムのどこに分布しているかを初めて詳しく調べました。その結果、H3K115acは活発に働くCpGアイランド・プロモーターの転写開始点に多く見られること、そして分化のあとで活性化する予定の「ポリコームで抑えられた」プロモーターにも先回りするように存在することがわかりました[6]。
💡 用語解説:CpGアイランド・プロモーターと fragile nucleosome
プロモーターとは、遺伝子の「スタート地点」にあたる領域です。その多くはCとGの塩基が集まった「CpGアイランド」を含み、遺伝子が活発に働く目印になります。fragile nucleosome(壊れやすいヌクレオソーム)とは、その名の通り不安定で分解されやすいヌクレオソームのことで、遺伝子が働くために「開けておきたい」場所に多く見られます。
さらにこの研究で最も注目されたのは、H3K115acがfragile nucleosome(壊れやすいヌクレオソーム)に多く存在するという発見です。それは、プロモーターの近くでヌクレオソームがまばらな領域、活性化したエンハンサー(転写因子が結合する場所)、そしてCTCFという因子が結合する部位などに集まっていました[6]。エンハンサーでのH3K115acは固定的ではなく、細胞が分化するにつれて、遺伝子の活性化やDNAの開きやすさに合わせて変化する「動的」なものであることも示されました[6]。これは、試験管内で見えていた「ヌクレオソームを壊れやすくする」性質が、実際の細胞のゲノムでも、活発な制御領域と結びついていることを示す重要な結果です。
ただし、ここで一つ大切な区別があります。「活発な領域と一緒にある(相関している)」ことと、「H3K115acが遺伝子のスイッチを直接ONにしている(因果関係)」ことは、別の話です。H3K115acが先にできてヌクレオソームを壊れやすくするのか、それとも活発に働いて壊れやすくなったヌクレオソームに後からH3K115acが付くのか——この「原因か結果か」は、まだ決着していません。今後の研究の最重要テーマの一つです。
6. 発生と生命にとっての重み ─ ショウジョウバエが教えること
H3K115acそのものではなく、K115という場所がどれほど生命に重要かを教えてくれるのが、ショウジョウバエを使った研究です。研究チームは、ハエ本来のヒストン遺伝子を人工的に改変したものと入れ替える強力な手法を使い、K115を別のアミノ酸に置き換えたときに何が起こるかを調べました[5]。
その結果、K115をR(アルギニン、アセチル化できない型の代理)に変えても、Q(グルタミン、アセチル化をまねた型)に変えても、どちらも胚の段階で死んでしまう(胚性致死)ことがわかりました[5]。羽のもとになる組織(翅原基)で作った変異細胞のかたまりも、正常なものより小さくなりました。この結果は、K115という場所が発生や細胞の成長にとって非常に重要であることを、強く物語っています。
⚠️ 大切な注意:「K→Q」は本物のアセチル化のまねではない
研究でよく使われる「K115Q(グルタミンに置換)」は、アセチル化リジンの「電気が中和された状態」をまねる代理ですが、本物のアセチル化を完全には再現しません[1]。実際、物理的な性質を直接測ると、K115Qは本物のアセチル化と同じ効果を示しませんでした。ですから「K115Q=いつもアセチル化されたH3」と読むのは正確ではありません。RもQも異常を起こしたということは、ハエの異常が「アセチル化の欠如」だけでなく、K115というアミノ酸そのものの構造的な重要性を反映している可能性が高いのです。
同じショウジョウバエの研究では、調べた発生遺伝子の活性化や抑制には、はっきりした異常が見つかりませんでした[5]。また、K122を非アセチル化型(K122R)に変えたハエは例外的に生き残りました[5]。これは、隣り合うK115とK122が、同じダイアド付近にありながら役割が同じではないことを示しています。H3K115acは「すべての遺伝子を一律にONにする万能スイッチ」ではなく、活発な制御領域でのヌクレオソームの入れ替わりや壊れやすさを調整する「状態の変数」に近いものだと考えられます。
7. 検出のむずかしさ ─ 「見えない」ことは「無い」ことではない
H3K115acの研究が難しいのは、そもそも「測りにくい」修飾だからです。理由はいくつかあります。まず、量が少ない可能性があること。次に、K115がDNAの真下に隠れているため、抗体(目印を認識するタンパク質)が届きにくいこと。そして、質量分析でヒストンを断片に切って調べるとき、K115のすぐ隣にあるアミノ酸の並びの都合で、K115を含む部分がうまく解析できないことがあるのです。
実際、多くの酵素の影響を一度に調べた大規模な解析では、使われたヒストンの断片がK115を評価できない設計になっていたため、この修飾を測れませんでした[2]。ここから得られる教訓は重要です。大規模な調査でK115acが「検出されなかった」としても、それは「存在しない・変化しない」という意味ではない、ということです。「見えない」ことと「無い」ことは違います。
💡 用語解説:抗体の「特異性」がなぜ大事か
抗体は特定の目印だけをつかまえる道具ですが、似た形の別のものを間違ってつかむ(非特異的な)ことがあります。エピジェネティクス研究では、この間違いが誤った結論につながることがあります。実際、K115の隣にあるK122のアセチル化を認識するとされた市販の抗体が、変異体を使った検証で「特異的ではない」と判明した例が報告されています[5]。だからこそ、抗体を使う実験では、変異体などを対照に置いた厳しい検証が欠かせません。
2026年の研究がH3K115acと壊れやすいヌクレオソームを結び付けたことは、検出の面でも新しい注意点を生みました。もし最も壊れやすいヌクレオソームにH3K115acが多いなら、実験でDNAを切る条件によっては、その壊れやすいヌクレオソームが先に失われてしまい、かえって「そこには少ない」ように見えてしまう恐れがあるのです。こうした技術的な落とし穴を避けるには、複数の条件で慎重に測り、質量分析など別の方法と組み合わせて確かめることが望まれます。
8. 遺伝医療との接点 ─ いまは「土台」の知識
ここまで読んで、「H3K115acは遺伝子検査でわかるのか」「病気の診断に使えるのか」と気になる方もいるかもしれません。結論から言うと、H3K115acは現時点では基礎研究が中心のテーマであり、日常の診療で直接検査する対象ではありません。特定の病気の原因・目印・治療標的であるという直接的な証拠は、まだ得られていない段階です。
たとえば、白血病のヒストン修飾を調べた過去の研究の中でK115ac付近の修飾が観察されたことはありますが、それは「初期に部位を見つけた」という文脈であって、H3K115acが白血病の目印だと示したものではありません。同じように、書き手候補のp300(EP300)やCBP(CREBBP)の遺伝子変異が、ルビンシュタイン・テイビ症候群など多くの病気に関わることは知られていますが、その病態をそのままH3K115acに結び付けることはできません。ここは慎重に切り分けて理解する必要があります。
それでも、H3K115acの研究は遺伝医療にとって大切な視点を与えてくれます。それは、「遺伝子やタンパク質の機能を、目立つ働きだけで判断してはいけない」ということです。DNAとの結合をわずかにゆるめるだけの、一見地味な修飾が、ヌクレオソームの壊れやすさを通じて遺伝子の制御に関わっている——この事実は、遺伝子の変化が体にどう影響するかを読み解くときの、考え方の土台になります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。検査で何がわかり何がわからないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのかを、中立の立場で整理してお伝えします。H3K115acのような基礎的なテーマは、こうした「遺伝情報をどう読み解くか」という理解を支える背景知識として位置づけられます。正確な情報に基づいて選択肢を検討していただけるよう、医学的根拠に沿ってご説明します。
院長コラム:「働きが地味」でも軽く見ない
遺伝子やタンパク質の世界では、派手に働くものだけが重要とは限りません。H3K115acのように、DNAとの結合をほんの少しゆるめるだけの修飾が、ヌクレオソームの壊れやすさという形で、遺伝子の制御に静かに関わっています。臨床遺伝専門医として文献を踏まえると、これは日々の遺伝情報の読み解きにも通じる姿勢です。ある遺伝子産物が目立った酵素反応を起こさないとしても、それだけで「意味がない」とは言い切れない。基礎研究の積み重ねが、そうした慎重さを私たちに教えてくれます。
9. よくある誤解
誤解①「アセチル化はどれも同じ働き」
同じアセチル化でも、付く場所で働きがまるで違います。しっぽのアセチル化は他の因子を呼ぶ目印になりますが、H3K115acは芯の中心にあり、DNAとの結合をゆるめてヌクレオソームを壊れやすくする、別タイプの修飾です。
誤解②「結合が弱くなる=DNAが開く」
H3K115acはDNAとヒストンの結合を弱めますが、それだけでDNAが開くわけではありません。扉を開けるのではなく、蝶番をゆるめて「壊れやすい状態」を作るイメージです。
誤解③「K115Qは本物のアセチル化と同じ」
研究で使われるK115Qは、アセチル化の代理にすぎず、本物を完全には再現しません。KをQやRに変えた変異体の結果は、そのまま「アセチル化の効果」と読み替えることはできません。
誤解④「見つからない=存在しない」
K115は測定が難しく、大規模な調査でも評価できないことがあります。検出されなくても、それは「無い」証拠にはなりません。技術の盲点を踏まえて解釈する必要があります。
まとめ ─ 「壊れやすさ」を調整する修飾
H3K115acは、ヒストンのしっぽではなく、DNAが巻きつく芯の中心(ダイアド)の下にある、少し変わったアセチル化修飾です。その働きは、DNAとヒストンの結合をゆるめてヌクレオソームを「壊れやすく」すること。ただし、それだけでDNAを開くわけではなく、クロマチンリモデリング因子が来たときに解体されやすい状態を準備しておく、という繊細な役割を担います[1][2]。
2026年には、H3K115acが実際のゲノム上で、活発に働くCpGアイランド・プロモーターやエンハンサー、壊れやすいヌクレオソームと結びついていることが初めて詳しく報告されました[6]。一方で、細胞内での書き手・消し手・読み手、本来の量、壊れやすさの「原因か結果か」、そして病気との具体的なつながりは、まだ多くが未解明です。現段階のH3K115acは、「存在も物理的な効果も確かだけれど、細胞内の酵素回路とゲノム上の意味がようやく見え始めたばかりの修飾」と位置づけるのが、最も正確でしょう。基礎研究が積み重なることで、その全体像が少しずつ明らかになっていくはずです。
よくある質問(FAQ)
Q1. H3K115acとは何ですか?
ヒストンH3というタンパク質の、115番目のリジン(K)にアセチル基が付いた化学修飾のことです。この場所はDNAが巻きつく芯の中心(ダイアド)のすぐ下にあり、修飾が付くとDNAとヒストンの結び付きがゆるみ、ヌクレオソームが壊れやすい状態になります。DNAの塩基配列そのものは変えずに遺伝子のはたらきを調整する、エピジェネティクスの一種です。
Q2. ほかのアセチル化(H3K27acなど)と何が違うのですか?
付く「場所」が違います。H3K27acなどはヒストンから伸びるしっぽの上にあり、他のタンパク質を呼び込む目印として働きます。一方H3K115acは芯の中心近くにあり、目印というよりも、DNAとヒストンの結合を物理的にゆるめて、ヌクレオソームを壊れやすくする点が特徴です。同じアセチル化でも、場所によって役割がかなり異なります。
Q3. H3K115acは遺伝子を活発にするのですか?
2026年の研究で、H3K115acが活発に働くCpGアイランド・プロモーターやエンハンサーに多く見られることが報告されました。ただし「活発な場所と一緒にある(相関)」ことと「遺伝子を直接ONにする(因果)」ことは別で、どちらが原因でどちらが結果かはまだ決着していません。「万能の活性化スイッチ」と単純に呼べる段階ではありません。
Q4. H3K115acは病気と関係がありますか?
現時点では、H3K115acそのものが特定の病気の原因・目印・治療標的であるという直接的な証拠はありません。書き手候補のp300やCBPの遺伝子変異が多くの病気に関わることは知られていますが、それをそのままH3K115acに結び付けることはできません。今は基礎研究が中心のテーマで、日常の診療で直接検査する対象ではありません。
Q5. H3K115acは遺伝子検査でわかりますか?
いいえ。H3K115acは研究の場で測定されるもので、一般の遺伝子検査でわかる項目ではありません。しかも測定が難しく、大規模な研究でも評価できないことがある「盲点」になりやすい修飾です。遺伝子検査や遺伝カウンセリングをご検討の方は、検査で何がわかるのかを含めて、臨床遺伝専門医にご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Acetylation of histone H3 at the nucleosome dyad alters DNA-histone binding. J Biol Chem. 2009. [PubMed 19520870] [PMC2749105]
- [2] Histone Acetylation near the Nucleosome Dyad Axis Enhances Nucleosome Disassembly by RSC and SWI/SNF. Mol Cell Biol. 2015. [PubMed 26416878] [PMC4628061]
- [3] Histone fold modifications control nucleosome unwrapping and disassembly. Proc Natl Acad Sci U S A. 2011. [PubMed 21768347] [PMC3150920]
- [4] Activator-dependent p300 acetylation of chromatin in vitro: enhancement of transcription by disruption of repressive nucleosome-nucleosome interactions. J Biol Chem. 2010. [PubMed 20720004]
- [5] Mutations that prevent or mimic persistent post-translational modifications of the histone H3 globular domain cause lethality and growth defects in Drosophila. Epigenetics Chromatin. 2016. [PMC4772521]
- [6] Acetylation of H3K115 is associated with fragile nucleosomes at CpG island promoters and active regulatory sites. eLife. 2026. [PubMed 41778583]
- [7] Regulation of transcription through acetylation of H3K122 on the lateral surface of the histone octamer. Cell. 2013. [PubMed 23415232]






