

目次
- 1 1. 核移行シグナル(NLS)とは ─ タンパク質に書き込まれた「核ゆき」の宛名
- 2 2. 核と細胞質を隔てる関門 ─ 核膜孔とインポーチン
- 3 3. NLSの種類と配列 ─ 宛名ラベルにはいくつかの書式がある
- 4 4. 宛名を読み、荷物を運ぶ ─ インポーチンαの精巧なしくみ
- 5 5. 宛名を隠す・出す ─ スイッチとして働くNLS
- 6 6. NLSと神経難病 ─ FUSの「道に迷い」がALSを招く
- 7 7. ゲノム編集と遺伝子治療 ─ 宛名を足して効率を上げる
- 8 8. がん治療への応用 ─ 「運び出し」を止めるという発想
- 9 9. 遺伝診療との接点 ─ 「宛名」を読み解くという視点
- 10 10. よくある誤解
- 11 まとめ ─ 数個のアミノ酸が担う、大きな役割
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事
NLS(エヌ・エル・エス)は、生物学・医学では核移行シグナル(Nuclear Localization Signal)の略で、核局在化シグナルとも呼ばれます。細胞の中で作られたばかりのタンパク質は、いわば宛名のない荷物です。その中で「核(かく)の中で働くべきもの」に書き込まれている宛名ラベルが、NLSです。核は遺伝情報であるDNAを守る大切な部屋で、まわりを二重の膜(核膜)で仕切られています。この記事では、NLSとは何か、代表的な配列、タンパク質が核へ運ばれるしくみ、そしてそのしくみがALSなどの神経難病・がん治療・ゲノム編集とどうつながるのかを、臨床遺伝専門医の視点で解説します。
⏱️ 30秒でわかる要約
🧬 Q. NLS(核移行シグナル)とは?
タンパク質を細胞の核の中へ運ぶための「宛名」になるアミノ酸の並びです。インポーチンという運び屋がこの宛名を読み取り、核膜にあいた門(核膜孔)を通して核の中へ運びます。
🔤 Q. 代表的な配列は?
最初に見つかったのはSV40ウイルスのラージT抗原のPKKKRKV(7アミノ酸)です。リジン(K)やアルギニン(R)が固まった並びが基本形で、2か所に分かれた「二部型(バイパルタイト型)」もあります。配列から当てはまる場所を探す予測ツールもあります。
🏥 Q. 病気や治療とどう関係する?
ALSの原因になるFUS遺伝子の変化の一部はNLSの部分に起き、FUSが核に入れず細胞質にたまります。ゲノム編集のCas9にNLSを足して効率を上げる工夫や、核から運び出す運び屋(XPO1)を止めるがんの薬もあります。
\ 遺伝子の変化の意味を、臨床遺伝専門医と確かめたい方へ /
臨床遺伝専門医が常駐し、FUSやTARDBPを含むALSの原因遺伝子43遺伝子を調べる検査にも対応しています。
ALSの遺伝子検査(43遺伝子) | 遺伝カウンセリング外来
🧬 核移行シグナル(NLS)の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | かくいこうシグナル/核局在化シグナル。英語では Nuclear Localization Signal(NLS) |
| 正体 | 核へ運ばれるタンパク質がもつ目印。古典的NLSはリジンやアルギニンなどプラスの電気を帯びたアミノ酸の短い並びが基本形[1] |
| 代表的な配列 | SV40ラージT抗原のPKKKRKV(一部型)[2]、ヌクレオプラスミンのKRPAATKKAGQAKKKK(二部型)[1] |
| 読み取る運び屋 | インポーチンα/β(古典的NLS)、トランスポーチン1(PY-NLS)など |
| 逆向きの目印 | 核外移行シグナル(NES)。ロイシンに富む並びで、エクスポーチン1(XPO1/CRM1)が読み取る[5] |
| 医療との関わり | ALS・前頭側頭葉変性症、がん、ウイルス感染、ゲノム編集・遺伝子治療と関わる |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. 核移行シグナル(NLS)とは ─ タンパク質に書き込まれた「核ゆき」の宛名
核移行シグナル(NLS)とは、タンパク質を細胞の核の中へ運ぶための、そのタンパク質自身がもつアミノ酸の並び(宛名)です。わたしたちの細胞は、遺伝情報を格納する核と、タンパク質をつくり代謝を行う細胞質が、核膜という二重の膜で仕切られています。仕切られているおかげで、細胞は遺伝子のスイッチをきめ細かく管理できますが、そのぶん核の中で働くタンパク質は、わざわざ核へ運び込まなければなりません。
古典的なNLSでは、リジン(K)やアルギニン(R)というプラスの電気を帯びた(塩基性の)アミノ酸が固まって並び、この並びを専用の運び屋が読み取ることで、そのタンパク質は「核ゆき」の荷物として扱われます[1]。反対に、核から細胞質へ運び出すための宛名もあり、こちらは核外移行シグナル(NES)と呼ばれます[5]。
💡 用語解説:アミノ酸と「塩基性アミノ酸」
タンパク質はアミノ酸という部品が数珠つなぎになってできています。アミノ酸にはそれぞれ個性があり、リジンやアルギニンは水の中でプラスの電気を帯びる「塩基性アミノ酸」です。NLSはアルファベット1文字の記号(Kはリジン、Rはアルギニン、Pはプロリン、Vはバリン)で書かれることが多く、PKKKRKVは7つのアミノ酸の並びを表しています。
最初に見つかったNLS:SV40ラージT抗原のPKKKRKV
NLSの研究は、サルのウイルス(SV40)がつくる「ラージT抗原」というタンパク質から始まりました。1984年、ラージT抗原の128番目のリジン(Lys-128)を別のアミノ酸(トレオニン)に置き換えるだけで、ラージT抗原が核に入れず細胞質にとどまることが報告されました[3]。さらに同じ年、Lys-128を含むPKKKRKV(Pro-Lys-Lys-Lys-Arg-Lys-Val)という7つのアミノ酸を、本来は細胞質にあるタンパク質の端につなぐと、そのタンパク質がまるごと核へ集まることが示されました[2]。たった7文字の宛名で荷物の行き先が変わる――これがNLSという考え方の出発点です。
おもしろいことに、真核生物のNLSによく似た配列は、核をもたない原核生物(細菌など)のタンパク質にも見つかっています。このことから、NLSの起源は核と細胞質が膜で分かれるより前にさかのぼる可能性が論じられています[4]。
2. 核と細胞質を隔てる関門 ─ 核膜孔とインポーチン
核膜には、物質を出し入れするための門があります。それが核膜孔複合体(かくまくこうふくごうたい/Nuclear Pore Complex:NPC)です。NPCは、約30種類のヌクレオポリン(Nup)と呼ばれるタンパク質が、それぞれ何コピーも集まってできた巨大な門です[6]。小さな分子は自由に通れますが、大きなタンパク質は、正しい運び屋に付き添われていなければ通れないようになっています[7]。
この運び屋がインポーチン(importin)です。もっとも代表的な「古典的」な経路では、まずインポーチンαがタンパク質のNLSを読み取り、そこへインポーチンβが結合して3つで1つの複合体をつくります。そしてインポーチンβが核膜孔とのやりとりを担い、荷物を核の中へ運び込みます[1]。核から細胞質への運び出しを担う運び屋はエクスポーチンと呼ばれ、インポーチンβとよく似た大きなタンパク質の仲間(インポーチンβファミリー)に属しています[5]。
💡 用語解説:NPCの「関所」のしくみ(FG-Nups)
核膜孔の内側は、決まった形をもたない、フェニルアラニン(F)とグリシン(G)のくり返しに富むヌクレオポリン(FG-Nups)でびっしり埋まっています。これが大きな分子が勝手に通り抜けるのを邪魔する「ふるい」になっています。インポーチンなどの運び屋は、このFG-Nupsと結びついたり離れたりしながら、荷物をふるいの向こう側へ通します[7]。だからNLSの役目は、「門を通れる運び屋に荷物を確実につなぐこと」だといえます。
では、この輸送はなぜ一方向に進むのでしょうか。その鍵がRan(ラン)という小さなタンパク質です。Ranには活性型(RanGTP)と休止型(RanGDP)があり、RanGTPをつくる酵素(RCC1)は核の中で染色体に結合し、RanGTPを休止型に戻す酵素(RanGAP)は細胞質にあります。そのため、核の中にはRanGTPが多く、細胞質にはRanGDPが多い、という濃度の差が保たれます[5]。インポーチンは細胞質で荷物を積み込み、核の中でRanGTPと結合すると荷物を降ろします。エクスポーチンは逆に、核の中でRanGTPがあるときだけ荷物と結合し、細胞質でRanGTPが休止型に戻ると荷物を放します[5]。核輸送の全体像は、核-細胞質輸送(核膜孔複合体・インポーチン)でも解説しています。
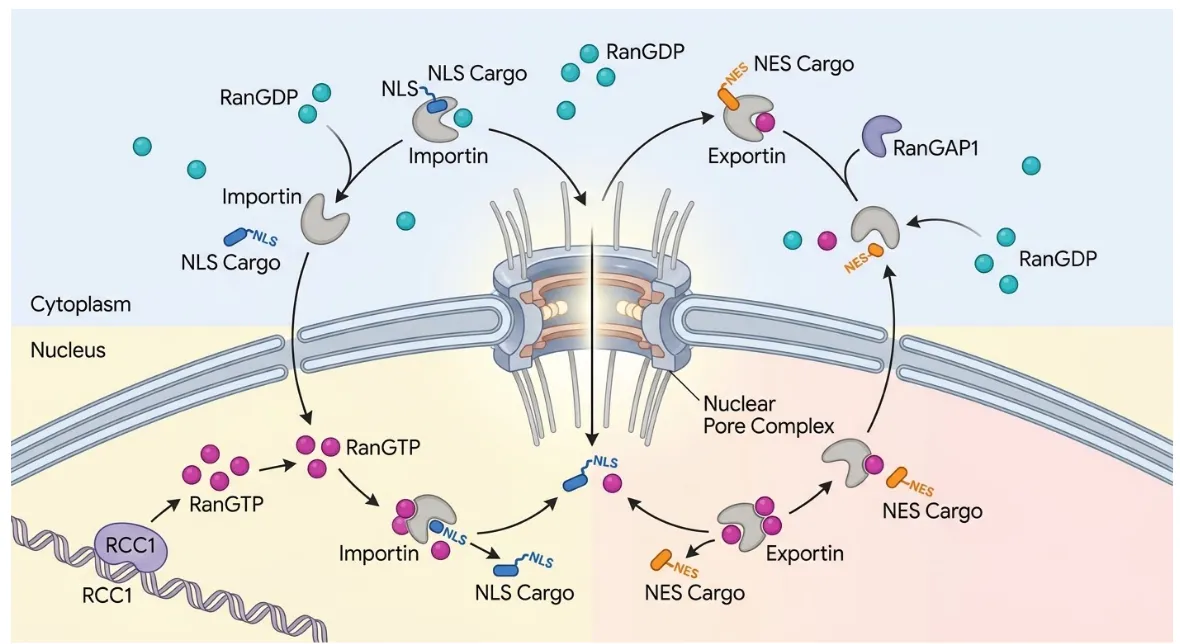
図:核-細胞質輸送のサイクル(模式図)。運び屋インポーチンは、細胞質でNLS(核移行シグナル)を持つ荷物と結合し、核膜孔複合体を通って核内へ運び込みます。核内では、クロマチンに結合したRCC1がRanを活性型のRanGTPに変換しており、このRanGTPがインポーチンに結合すると荷物が核内で放されます。逆に、エクスポーチンは核内でNES(核外移行シグナル)を持つ荷物とRanGTPを一緒に抱え、核膜孔を通って細胞質へ運び出します。細胞質ではRanGAP1のはたらきでRanGTPが休止型に戻り、荷物が切り離されます。核内はRanGTPが多く、細胞質はRanGDPが多い――この濃度差が、輸送の向きを決めています。

🩺 院長コラム【「宛名」を読むという発想】
遺伝子やタンパク質の世界を学ぶとき、わたしがいつも面白いと感じるのは、細胞が「情報」をとても物理的に扱っている点です。核移行シグナルは、その代表例です。タンパク質という荷物のどこかに、たった数個のアミノ酸で「核ゆき」と書いておくだけで、細胞はそれを正しい部屋へ届けてしまう。宛名を書いて、運び屋が読んで、関所を通す――人間の郵便とよく似た発想が、分子のレベルで動いているのです。
そして、この宛名は固定ではありません。あとで見えなくしたり、また見えるようにしたりできる「書き換え可能なラベル」です。この柔らかさが、細胞が刺激に応じて素早く反応するための土台になっています。「情報をどこに置き、いつ読ませるか」という視点は、遺伝子の働きを読み解くうえでも大切な考え方です。
3. NLSの種類と配列 ─ 宛名ラベルにはいくつかの書式がある
NLSの「書式」は、どの運び屋に読まれるか、どんな並び方をしているかで、大きく次のように整理されます。まず、代表的な配列を表で確認しておきましょう。
🔤 代表的な核移行シグナル(NLS)の配列
| 種類 | 代表例と配列 | 読み取る運び屋 |
|---|---|---|
| 古典的NLS(一部型) | SV40ラージT抗原:PKKKRKV[2] おおまかな共通パターン:K(K/R)X(K/R)(Xは何でもよい)[1] |
インポーチンα(大きい結合ポケット) |
| 古典的NLS(二部型) | ヌクレオプラスミン:KRPAATKKAGQAKKKK[1] 塩基性のかたまり2つを、ふつう9〜12アミノ酸のつなぎで結ぶ[8] |
インポーチンα(大小2つのポケット) |
| PY-NLS | FUS・hnRNP A1など。疎水性のモチーフ、アルギニンに富む部分、末尾のPY(プロリン・チロシン)モチーフの組み合わせ[11][12] | トランスポーチン1(Karyopherin-β2) |
| NLSと核小体局在化シグナルを兼ねる例 | HIV-1のTatタンパク質の塩基性領域:RKKRRQRRR[4] | ― |
アミノ酸は1文字記号で表しています(K=リジン、R=アルギニン、P=プロリン、V=バリン、Q=グルタミン、A=アラニン、T=トレオニン、G=グリシン)。共通パターンに当てはまらないのに働くNLSや、当てはまっても働かない並びもあります[9]。
① 古典的NLS(cNLS)─ もっともよく知られた基本形
いちばん古くから研究され、しくみもよくわかっているのが古典的NLS(cNLS)です。インポーチンαが直接読み取るタイプで、塩基性アミノ酸のかたまりが1か所だけのモノパルタイト型(一部型)と、かたまりが2か所あって、その間をつなぎ(リンカー)で結んだバイパルタイト型(二部型)に分かれます[1]。一部型の代表がSV40ラージT抗原のPKKKRKV、二部型の代表がカエルの卵にあるヌクレオプラスミンのNLSです[1]。
💡 用語解説:モノパルタイトとバイパルタイト
「モノ」は1つ、「バイ」は2つという意味です。塩基性アミノ酸のかたまり(宛名の文字列)が1か所だけならモノパルタイト、2か所に分かれていればバイパルタイトです。二部型のつなぎは、ふつう9〜12アミノ酸と定義されてきましたが、酵母のタンパク質ではつなぎが25アミノ酸のものや、29アミノ酸のつなぎでも働く例が確かめられ、つなぎの長さは中身のアミノ酸によって変わりうることがわかっています[8]。
さらに、ランダムな配列の中からインポーチンαに結合するものを網羅的に選び出した研究では、インポーチンαの異なる結合ポケットに合わせた6つのクラスのNLSが見つかり、そのうち3つは新しいクラスでした[9]。この研究は、教科書的な共通パターン(K(K/R)X(K/R)など)が必ずしも働きに必須ではないことも示しており、NLSが配列だけでは見分けにくい理由を説明しています[9]。
② PY-NLS ─ もう一つの運び屋が読む書式
すべてのNLSがインポーチンαに読まれるわけではありません。トランスポーチン1(別名 Karyopherin-β2)という運び屋は、インポーチンαを介さず、直接NLSを読み取ります。このとき読まれる書式がPY-NLSで、名前は末尾のプロリン(P)とチロシン(Y)に由来します。古典的NLSより長く、決まり文句のような短い配列では表せません。たとえばFUSのPY-NLSは、N末端側の疎水性のモチーフ、真ん中のアルギニンに富むらせん、末尾のPYモチーフの3つの部分でトランスポーチン1に結合します[11]。
このPY-NLSをもつ代表が、FUSやhnRNP A1といった、RNAと結びついて働くタンパク質です[12]。とくにFUSのPY-NLSは、後で説明するようにALSと深く関わります。
③ NLSと関連する局在シグナル ─ 核小体局在化シグナル(NoLS)と核外移行シグナル(NES)
核の中には、さらに核小体(かくしょうたい)という、リボソームづくりの拠点となる小部屋があります。ここへタンパク質を集める目印が核小体局在化シグナル(NoLS)です。NoLSには決まった共通配列がなく、配列そのものよりプラスの電気の量によって働くと考えられています。HIV-1のTatタンパク質の塩基性領域では、同じ短い並びがNLSとNoLSの両方として働くことが示されています[4]。
反対に、核から細胞質へ荷物を運び出す宛名が核外移行シグナル(NES)で、ロイシンに富む並びが代表的です。このNESを読み取るのがエクスポーチン1(XPO1、CRM1とも呼ばれる)です[5]。NLSとNESの両方をもつタンパク質は、核と細胞質を行き来しながら働きます。このエクスポーチン1は、後で述べるがん治療の標的になっています[19]。
④ NLSの配列を予測するには ─ 予測ツールと実験での確認
あるタンパク質のどこにNLSがあるかは、アミノ酸配列から予測することができます。代表的なツールの一つが、慶應義塾大学のグループが開発したcNLS Mapperです。酵母でアミノ酸を1つずつ置き換えた実験から、NLSの各位置にどのアミノ酸がどれだけ効くかを数値化し、古典的なインポーチンα/β経路のNLSの働きの強さを計算します。従来の方法より感度・特異度とも高い予測精度が報告されています[10]。
ただし、予測はあくまで候補探しです。PY-NLSのように短い共通配列で表せない書式もあり、共通パターンに合わない働くNLSもあります[9]。予測されたNLSが本当に働いているかは、その部分をほかのタンパク質につないで核に運ばれるか、その部分を変えると核に入れなくなるか、といった実験で確かめる必要があります[1]。
4. 宛名を読み、荷物を運ぶ ─ インポーチンαの精巧なしくみ
ここでは、古典的NLSを読み取るインポーチンαのしくみを、もう少しくわしく見てみましょう。インポーチンαは、大きく3つの部分からできています。相棒のインポーチンβと結びつくIBBドメイン、NLSを読み取る本体であるアルマジロ(Arm)リピート、そして役目を終えて核から戻るときに使う部分です[6]。アルマジロリピートは約42〜43アミノ酸のまとまりが10回くり返した構造で、ここにNLSがはまり込みます[6]。
この本体には、大きく2つの結合場所があります。2〜4番目のリピートにあるメジャー結合サイトと、6〜8番目のリピートにあるマイナー結合サイトです。一部型のSV40のNLSはメジャーサイトに、二部型のヌクレオプラスミンのNLSは両方のサイトにまたがって結合します[6]。宛名の書式によって、はまり方が変わるわけです。
💡 自分の「宛名もどき」で荷物を手放す
インポーチンαのIBBドメインには、NLSによく似た塩基性の並び(KRR)が含まれています。細胞質では、インポーチンβがこのIBBドメインを押さえているので、インポーチンαは荷物のNLSをしっかりつかめます。ところが核の中でRanGTPがインポーチンβに結合すると、IBBドメインが自由になり、自分の「宛名もどき」でNLSの結合ポケットを取り合うようになります。これを「自己阻害」と呼び、核の中で荷物を手放し、再び拾わないようにする仕掛けになっています[1]。
なお、インポーチンαは1種類ではありません。酵母では1つの遺伝子しかありませんが、ヒトでは7種類のインポーチンα(サブタイプ)があり、3つのグループに分けられます[6]。どのサブタイプが多く働いているかによって、運ばれるタンパク質の顔ぶれが変わりうることも報告されています[6]。
5. 宛名を隠す・出す ─ スイッチとして働くNLS
NLSは、いつでも読まれる固定の宛名ではありません。細胞は、外からの刺激や細胞のサイクルに合わせて、宛名を見えなくしたり、また見えるようにしたりして、タンパク質が核へ入る量を調整しています。この切り替えを担うのが、ほかのタンパク質による「覆い隠し」や、翻訳後修飾と呼ばれる化学的な目印です。
💡 用語解説:リン酸化と翻訳後修飾
タンパク質は、つくられた後にさまざまな小さな目印(化学基)を付けたり外したりして、働きを切り替えられます。これを「翻訳後修飾」といいます。代表的なのが、リン酸という目印を付けるリン酸化や、メチル基を付けるタンパク質のメチル化です。NLSのそばにこうした目印が付くと、運び屋との相性が変わり、核へ入る量が変わることがあります。酵母では、細胞周期を進める酵素(CDK1)によるリン酸化の場所がNLSの中のどこにあるかで、核への取り込みが強まったり弱まったりすることが示されています[10]。
「宛名を隠す」しくみの有名な例が、炎症や免疫で中心的な役割を果たすNF-κB(エヌエフ・カッパー・ビー)という転写因子です。ふだんの細胞では、IκB(アイカッパービー)という抑え役のタンパク質がNF-κBのNLSに結合して覆い隠し、NF-κBを細胞質にとどめています[13]。炎症を起こす刺激が入るとNF-κBがIκBから離れ、あらわれたNLSによって一気に核へ移り、たくさんの遺伝子のスイッチを入れます[13]。この経路は、リン酸化・ユビキチン化・アセチル化など多くの翻訳後修飾で細かく調節されています[14]。
PY-NLSをもつFUSでも、似た調整が働いています。PY-NLSのすぐ手前の領域のアルギニンにメチル化という目印が付くと、運び屋トランスポーチン1との結合が弱まることが報告されています[15]。宛名そのものは変えずに、まわりの目印を付け外しするだけで、細胞は核への出入りを調節しているのです。
🏥 遺伝子の変化が「どこに」起きているかまで読み解く
遺伝子検査で見つかった変化が、タンパク質のどの部分に起きているのか、その意味をご本人・ご家族と一緒に考えるのが遺伝カウンセリングです。臨床遺伝専門医が常駐し、FUSやTARDBPを含むALSの原因遺伝子43遺伝子の検査にも対応しています。
まだ決めていない方は:遺伝カウンセリング外来でできること・費用・流れ
6. NLSと神経難病 ─ FUSの「道に迷い」がALSを招く
NLSの話は、基礎研究だけの話ではありません。宛名が正しく読まれないと、タンパク質は行くべき核にたどり着けず、細胞質に取り残されてしまいます。これが病気の引き金になる代表例が、筋萎縮性側索硬化症(ALS)と前頭側頭葉変性症(FTLD)という神経難病です。
FUSは、ふだんはPY-NLSという宛名を使って核の中で働くタンパク質です。ALSの原因になるFUSの変化の一部は、このPY-NLSの中、それもトランスポーチン1と接する部分にほぼ集中しています[11]。構造と結合の強さを調べた研究では、これらの変化はトランスポーチン1との結合を最大で約9分の1まで弱め、結合が弱いほどFUSが細胞質に偏り、ALSの重さとも相関していました[11]。核に入れなかったFUSは細胞質でかたまりをつくり、神経細胞を傷つけると考えられています[16]。
💡 なぜNLSの変化が神経を傷つけるのか
NLSに変化が起きると、2つの問題が同時に起こりえます。ひとつは、核の中で本来FUSがすべき仕事ができなくなること(核での役割の喪失)。もうひとつは、細胞質にたまったFUSが異常なかたまりをつくり、神経細胞に害を与えること(細胞質での毒性)です[16]。宛名ラベルの小さな変化が、細胞にとって二重の打撃になりうるのです。
ALSとFTLDでは、FUSがたまるまでの道すじが違う可能性も示されています。ALSの患者さんの脳にたまるFUSはアルギニンがメチル化されていたのに対し、FUSがたまるタイプのFTLDの患者さんではメチル化されていませんでした。研究者たちは、2つの病気が別のしくみで始まっている可能性を指摘しています[15]。FTLDについては前頭側頭型認知症(FTD)の解説を、ALSと前頭側頭型認知症が同じ家系で起こる前頭側頭型認知症±ALS1(FTDALS1)もあわせてご覧ください。
さらに、運び屋そのものが「かたづけ役」として働くこともわかってきました。トランスポーチン1はPY-NLSをつかんで、FUSやhnRNP A1などが細胞質で線維状に固まるのを防ぎ、すでにできたかたまりを溶かします。TDP-43では、インポーチンαとβのペアが同じ役割を果たしました[12]。核への輸送とタンパク質の品質管理がひとつながりであるという視点は、神経難病の治療研究のヒントになっています。こうした「固まる・溶ける」現象は、液–液相分離(LLPS)とも深く関わります。
当院のALSの遺伝子検査は、FUSとTARDBP(TDP-43をつくる遺伝子)を含む43遺伝子を調べます。詳しくはALSは遺伝する?家族性ALSの遺伝子検査(43遺伝子)で解説しています。
7. ゲノム編集と遺伝子治療 ─ 宛名を足して効率を上げる
NLSの理解は、最先端の医療技術も支えています。その代表が、遺伝子を書き換えるゲノム編集(CRISPR-Cas9)です。ゲノム編集で使うCas9というタンパク質は、DNAがしまわれている核の中へ入らなければ仕事ができません。そのため、Cas9にはSV40ラージT抗原由来のNLSをつなぐのが一般的です[17]。
ここで工夫されたのが、NLSを複数つなげる方法です。精製したCas9のN末端またはC末端に、SV40由来のNLSを1〜4個つないで比べた研究では、NLSを複数つなぐと細胞の中での編集活性が高まり、初代培養細胞・幹細胞や前駆細胞・マウスの胚でも効率が上がりました。効果は細胞の種類や導入方法によって違いました[17]。宛名を足すだけで道具の性能が上がる、というのは、NLSの理解があってこそのアイデアです。
同じ考え方は、遺伝子治療のベクター(治療遺伝子の運び屋)にも関わります。遺伝子治療で広く使われるAAV(アデノ随伴ウイルス)ベクターのうちAAV6では、殻をつくるタンパク質VP1のN末端にある53アミノ酸の塩基性領域が、二部型のNLSとしてインポーチンαに結合することが立体構造で示されました。とくにインポーチンα5とα7への結合が強いと報告されています[18]。
8. がん治療への応用 ─ 「運び出し」を止めるという発想
これまでは核へ「運び込む」話が中心でしたが、がん治療では、核から「運び出す」しくみを止める、という逆の発想が使われています。鍵を握るのは、NESを読み取る運び屋エクスポーチン1(XPO1/CRM1)です[5]。
がん細胞では、核と細胞質のあいだの輸送のしくみがしばしば乱れ、細胞の増え方などを調節する大切なタンパク質が本来の場所にとどまれず、働けなくなっています。がん細胞はこの輸送のしくみ、とくに運び出しを担うXPO1を、生き延びたり薬に耐えたりするために利用していると考えられています[19]。
💡 SINE ─ 運び出しを止める薬
この性質を逆手に取ったのが、XPO1のはたらきをふさぐ「核外輸送の選択的阻害剤(SINE)」です[19]。代表的な薬であるセリネクソール(selinexor)は、2019年7月に米国で、再発・難治性の多発性骨髄腫の治療薬として(デキサメタゾンとの併用で)迅速承認を受けました[20]。一方、再発・難治性びまん性大細胞型B細胞リンパ腫(DLBCL)に対する迅速承認の適応は、2026年4月30日に撤回されています[21]。
お薬の効果や安全性、使える範囲は、病気の種類や国、時期によって異なり、今後も変わっていきます。がん治療に関する判断は、必ず主治医とご相談ください。ここでは「核と細胞質のあいだの輸送が、がん治療の標的になっている」という一例として紹介しています。ウイルスもまた、この輸送システムを利用します。たとえば新型コロナウイルス(SARS-CoV-2)は、Orf6というタンパク質で核膜孔の部品(Nup98-Rae1)に結合し、感染を防ぐための信号タンパク質(STAT1・STAT2)が核へ入るのを妨げて、体の防御反応(インターフェロン)を鈍らせることが報告されています[22]。
9. 遺伝診療との接点 ─ 「宛名」を読み解くという視点
核移行シグナルは、遺伝子の設計図をどう読み解くか、という遺伝診療の視点からも示唆に富んでいます。ある遺伝子の変化(バリアント)は、タンパク質のはたらきの中心部分だけでなく、NLSのような「宛名」の部分に起きることもあります。FUSのPY-NLSの変化がALSと関わるように、宛名の小さな変化がタンパク質の居場所を狂わせ、重い病気につながることがあります[11]。
つまり、遺伝子検査で見つかった変化を評価するときには、「その変化はタンパク質のどの部分に起きているのか」「それは酵素の働きの部分なのか、居場所を決める宛名の部分なのか」といった視点が役に立つことがあります。なお、NLSそのものは基礎研究が中心の分野であり、日常の診療で直接検査する対象ではありません。遺伝子の働きを理解するための土台として位置づけてください。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。検査で何がわかり何がわからないのか、見つかった変化がご本人やご家族にとってどういう意味をもつのか、どのような選択肢があるのかを整理してお伝えします。「同じ遺伝子でも、変化の起きた場所や性質によって意味が変わる」という考え方は、成人の遺伝性腫瘍の診療でも大切であり、NLSの話はその考え方と地続きのものだと考えています。
10. よくある誤解
誤解①「NLSはただの飾り」
NLSは飾りではなく、タンパク質の居場所を決める宛名です。SV40ラージT抗原では、NLSの中のリジン1つを置き換えるだけで核に入れなくなりました[3]。
誤解②「運び屋は1種類だけ」
核へ運ぶ運び屋は1つではありません。古典的NLSを読むインポーチンαのほか、PY-NLSを直接読むトランスポーチン1などがあり、ヒトのインポーチンαだけでも7種類あります[6]。
誤解④「基礎研究で医療とは無関係」
NLSの理解は、ALSのしくみの解明・ゲノム編集の効率化・がん治療薬まで、幅広い医療研究と関係しています。
まとめ ─ 数個のアミノ酸が担う、大きな役割
核移行シグナル(NLS)は、わずか数個のアミノ酸でできた小さな宛名ラベルです。けれども、そのはたらきは、タンパク質の居場所を決め、刺激に応じて切り替わり、ときにウイルスと体の攻防の最前線にもなるほど大きなものです。インポーチンが宛名を読み、核膜孔をくぐり、Ranの濃度差を頼りに荷物を核へ届ける――この精密なしくみは、生命が情報を物理的に扱う見事な例だといえます。
そして、このしくみの理解は、そのまま医療の進歩につながっています。FUSのNLSの変化とALSの関係[11]、複数のNLSによるゲノム編集の効率化[17]、XPO1をふさぐがん治療薬[20]――いずれも、「宛名を読む」というシンプルな原理を深く理解した先に生まれた成果です。
よくある質問(FAQ)
Q1. NLS(核移行シグナル)とは何ですか?
NLS(核移行シグナル、核局在化シグナル)とは、タンパク質を細胞の核の中へ運ぶために、そのタンパク質自身がもっているアミノ酸の並び(宛名)です。古典的なNLSはリジンやアルギニンといったプラスの電気を帯びたアミノ酸に富んでいます。NLSをもつタンパク質はインポーチンなどの運び屋に読み取られ、核膜孔を通って核へ運ばれます。
Q2. 核移行シグナルの配列にはどんなものがありますか?
最初に見つかったのはSV40ラージT抗原のPKKKRKVという7つのアミノ酸の並びです。一部型のおおまかな共通パターンはK(K/R)X(K/R)で、二部型の代表はヌクレオプラスミンのKRPAATKKAGQAKKKKです。二部型は塩基性のかたまり2つを、ふつう9〜12アミノ酸のつなぎで結んでいますが、もっと長いつなぎでも働く例があります。
Q3. NLSとNES(核外移行シグナル)の違いは何ですか?
NLSは核の中へ運び込むための目印で、インポーチンが読み取ります。NESは核から細胞質へ運び出すための目印で、ロイシンに富む並びが代表的です。NESはエクスポーチン1(XPO1、CRM1とも呼ばれる)が読み取ります。両方をもつタンパク質は、核と細胞質を行き来しながら働きます。
Q4. NLSの場所は配列から予測できますか?
予測できます。代表的なツールの一つがcNLS Mapperで、アミノ酸を1つずつ置き換えた実験のデータをもとに、古典的なインポーチンα/β経路のNLSの働きの強さを計算します。ただし、共通パターンに合わないのに働くNLSもあるため、予測は候補探しと考え、実際に働くかは実験で確かめる必要があります。
Q5. NLSは病気と関係がありますか?
関係することがあります。代表例がFUSというタンパク質のPY-NLSです。ALSの原因になるFUSの変化の一部はPY-NLSの中にあり、運び屋トランスポーチン1との結合を弱めます。結合が弱いほどFUSが細胞質に偏り、ALSの重さとも相関すると報告されています。
Q6. NLSはゲノム編集や遺伝子治療とどう関係しますか?
ゲノム編集で使うCas9は、DNAのある核へ入る必要があるため、SV40由来のNLSをつなぐのが一般的です。NLSを複数つなぐと、細胞の中での編集活性が高まることが報告されていますが、効果は細胞の種類や導入方法によって違います。また、遺伝子治療に使うAAV6では、殻のタンパク質VP1の一部が二部型のNLSとしてインポーチンαに結合することが示されています。
Q7. 核外移行シグナル(NES)とがん治療はどう関係しますか?
がん細胞では核と細胞質の輸送のしくみが乱れ、運び出しを担うXPO1が利用されていると考えられています。XPO1のはたらきをふさぐ薬セリネクソールは、2019年7月に米国で再発・難治性の多発性骨髄腫の治療薬として迅速承認を受けました。一方、DLBCLに対する迅速承認の適応は2026年4月30日に撤回されています。治療に関する判断は、必ず主治医とご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子検査で見つかった変化の意味や、ご家族への影響を、臨床遺伝専門医と一緒に整理できます。当院のALSの遺伝子検査は、FUSとTARDBPを含む43遺伝子を調べます。
参考文献
- [1] Lange A, Mills RE, Lange CJ, Stewart M, Devine SE, Corbett AH. Classical nuclear localization signals: definition, function, and interaction with importin alpha. J Biol Chem. 2007;282(8):5101-5105. [DOI 10.1074/jbc.R600026200]
- [2] Kalderon D, Roberts BL, Richardson WD, Smith AE. A short amino acid sequence able to specify nuclear location. Cell. 1984;39(3 Pt 2):499-509. [DOI 10.1016/0092-8674(84)90457-4]
- [3] Kalderon D, Richardson WD, Markham AF, Smith AE. Sequence requirements for nuclear location of simian virus 40 large-T antigen. Nature. 1984;311(5981):33-38. [DOI 10.1038/311033a0]
- [4] Kurnaeva MA, Zalevsky AO, Arifulin EA, et al. Molecular coevolution of nuclear and nucleolar localization signals inside the basic domain of HIV-1 Tat. J Virol. 2022;96(1):e0150521. [DOI 10.1128/JVI.01505-21]
- [5] Ström AC, Weis K. Importin-beta-like nuclear transport receptors. Genome Biol. 2001;2(6):reviews3008. [DOI 10.1186/gb-2001-2-6-reviews3008]
- [6] Oka M, Yoneda Y. Importin α: functions as a nuclear transport factor and beyond. Proc Jpn Acad Ser B Phys Biol Sci. 2018;94(7):259-274. [DOI 10.2183/pjab.94.018]
- [7] Li C, Goryaynov A, Yang W. The selective permeability barrier in the nuclear pore complex. Nucleus. 2016;7(5):430-446. [DOI 10.1080/19491034.2016.1238997]
- [8] Lange A, McLane LM, Mills RE, Devine SE, Corbett AH. Expanding the definition of the classical bipartite nuclear localization signal. Traffic. 2010;11(3):311-323. [DOI 10.1111/j.1600-0854.2009.01028.x]
- [9] Kosugi S, Hasebe M, Matsumura N, et al. Six classes of nuclear localization signals specific to different binding grooves of importin alpha. J Biol Chem. 2009;284(1):478-485. [DOI 10.1074/jbc.M807017200]
- [10] Kosugi S, Hasebe M, Tomita M, Yanagawa H. Systematic identification of cell cycle-dependent yeast nucleocytoplasmic shuttling proteins by prediction of composite motifs. Proc Natl Acad Sci U S A. 2009;106(25):10171-10176. [DOI 10.1073/pnas.0900604106]
- [11] Zhang ZC, Chook YM. Structural and energetic basis of ALS-causing mutations in the atypical proline-tyrosine nuclear localization signal of the Fused in Sarcoma protein (FUS). Proc Natl Acad Sci U S A. 2012;109(30):12017-12021. [DOI 10.1073/pnas.1207247109]
- [12] Guo L, Kim HJ, Wang H, et al. Nuclear-import receptors reverse aberrant phase transitions of RNA-binding proteins with prion-like domains. Cell. 2018;173(3):677-692.e20. [DOI 10.1016/j.cell.2018.03.002]
- [13] Beg AA, Ruben SM, Scheinman RI, et al. I kappa B interacts with the nuclear localization sequences of the subunits of NF-kappa B: a mechanism for cytoplasmic retention. Genes Dev. 1992;6(10):1899-1913. [DOI 10.1101/gad.6.10.1899]
- [14] Perkins ND. Post-translational modifications regulating the activity and function of the nuclear factor kappa B pathway. Oncogene. 2006;25(51):6717-6730. [DOI 10.1038/sj.onc.1209937]
- [15] Dormann D, Madl T, Valori CF, et al. Arginine methylation next to the PY-NLS modulates Transportin binding and nuclear import of FUS. EMBO J. 2012;31(22):4258-4275. [DOI 10.1038/emboj.2012.261]
- [16] Tradewell ML, Yu Z, Tibshirani M, et al. Arginine methylation by PRMT1 regulates nuclear-cytoplasmic localization and toxicity of FUS/TLS harbouring ALS-linked mutations. Hum Mol Genet. 2012;21(1):136-149. [DOI 10.1093/hmg/ddr448]
- [17] Shui S, Wang S, Liu J. Systematic investigation of the effects of multiple SV40 nuclear localization signal fusion on the genome editing activity of purified SpCas9. Bioengineering (Basel). 2022;9(2):83. [DOI 10.3390/bioengineering9020083]
- [18] Hoad M, Nematollahzadeh S, Petersen GF, et al. Structural basis for nuclear import of adeno-associated virus serotype 6 capsid protein. J Virol. 2025;99(1):e0134524. [DOI 10.1128/jvi.01345-24]
- [19] Tan DS, Bedard PL, Kuruvilla J, Siu LL, Razak AR. Promising SINEs for embargoing nuclear-cytoplasmic export as an anticancer strategy. Cancer Discov. 2014;4(5):527-537. [DOI 10.1158/2159-8290.CD-13-1005]
- [20] Syed YY. Selinexor: first global approval. Drugs. 2019;79(13):1485-1494. [DOI 10.1007/s40265-019-01188-9]
- [21] U.S. Food and Drug Administration. Withdrawn Cancer Accelerated Approvals(Xpovio〔selinexor〕DLBCL適応、撤回日2026年4月30日). [FDA]
- [22] Miorin L, Kehrer T, Sanchez-Aparicio MT, et al. SARS-CoV-2 Orf6 hijacks Nup98 to block STAT nuclear import and antagonize interferon signaling. Proc Natl Acad Sci U S A. 2020;117(45):28344-28354. [DOI 10.1073/pnas.2016650117]
関連記事
※本記事は一般の方に向けた情報提供を目的とするもので、個別の診断・治療の選択を示すものではありません。検査や治療については臨床遺伝専門医・主治医にご相談ください。






