

目次
対合(たいごう)とは、卵子や精子をつくる減数分裂の第一分裂前期に、父由来と母由来の相同染色体が全長にわたって並び、結びつくことです。英語では pairing(ペアリング)や synapsis(シナプシス)と呼ばれます。対合した2本の相同染色体は二価染色体となり、その間で交叉(乗換え)が起こったあと、第一分裂で別々の細胞へ分かれます。対合がうまくいかないと、染色体が正しく分かれず、染色体の数の異常や不妊の原因になります。この記事では、対合の読み方・起こる時期・二価染色体との関係・相手の見つけ方から、転座をもつ人の対合や不妊との関係までを解説します。
⏱️ 30秒でわかる要約
🧬 Q. 対合とは何ですか?
減数分裂の第一分裂前期に、父由来と母由来の相同染色体が全長にわたって並び、結びつくことです。生物学での読み方は「たいごう」です。
🧬 Q. 対合は減数分裂のいつ起こりますか?
第一分裂前期の合糸期(ザイゴテン期)に始まり、太糸期(パキテン期)に全長がそろいます。体細胞分裂では対合は起こりません。
🧬 Q. 二価染色体とはどう関係しますか?
対合した相同染色体のペアが二価染色体です。複製ずみの染色体2本からなるので、4本の染色分体を含みます。
🧬 Q. 対合がうまくいかないとどうなりますか?
相手と結びつけない染色体は正しく分かれにくく、染色体の数の異常をもつ卵子・精子や、不妊の原因になります。転座をもつ人では、4本の染色体がひとまとまりになって対合する四価染色体ができます。
- ➤読み方 → 生物学では「たいごう」。数学の対合(involution)は「ついごう」
- ➤時期 → 減数第一分裂前期。合糸期に始まり太糸期に完成する
- ➤二価染色体 → 対合した相同染色体のペア(4本の染色分体)
- ➤相手の見つけ方 → テロメアの運動・DNA二本鎖切断・シナプトネマ複合体
- ➤医療とのつながり → 染色体の不分離、転座保因者の四価染色体、不妊にかかわる遺伝子
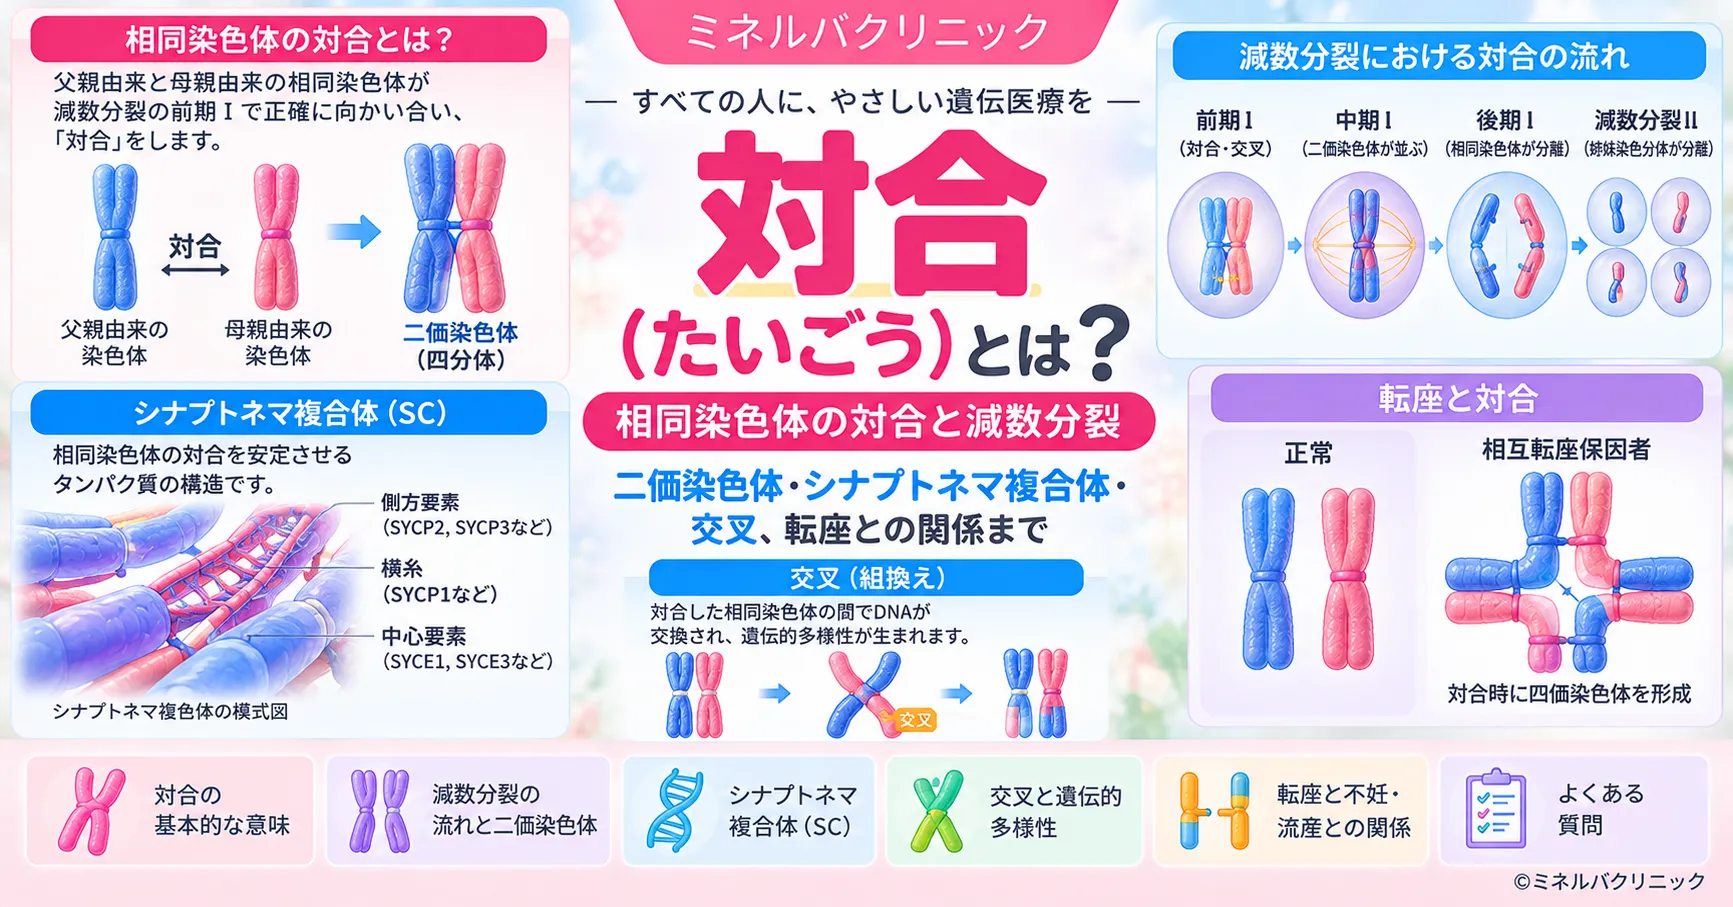
1. 対合(たいごう)とは?相同染色体が並んで結びつくこと
対合とは、減数分裂の第一分裂前期に、父由来と母由来の相同染色体が互いを見つけて並び、全長にわたって結びつくことです。ヒトの体細胞には、同じ番号の染色体が父由来と母由来で1本ずつ、2本ずつ入っています。この同じ番号の2本を相同染色体と呼びます。卵子と精子は染色体を半分しか持たないので、減数分裂の第一分裂で、相同染色体の2本を別々の細胞に分ける必要があります[1][2]。
2本を確実に分けるには、分ける前に2本が「ペア」として結びついていなければなりません。対合した相同染色体の間で起こる組換え(交叉)は、第一分裂で相同染色体が規則正しく分かれるためのしくみです[1]。交叉の場所(キアズマ)は、紡錘体が2本を引き離すまで父由来と母由来の染色体をつなぎ留めます[3]。対合は、減数分裂で染色体の数を正しく半分にするための最初の段階です。
読み方は「たいごう」──数学の「ついごう」、歯科の「対合」との違い
生物学の対合の読み方は「たいごう」です。国語辞典では、「たいごう」の意味の一つとして、減数分裂のときに相同な染色体どうしが接着する現象が挙げられています[4]。一方、同じ漢字の「ついごう」は数学の用語(involution、2回くり返すと元に戻る変換)で、生物の対合とは別の言葉です[4]。
歯科でも「対合(たいごう)」という言葉が使われますが、こちらは上の歯と下の歯がかみ合う相手の歯(対合歯)のことです。この記事で扱うのは、染色体の対合です。
対合(pairing)とシナプシス(synapsis)の違い
英語では、相手を見つけて近くに並ぶ段階を pairing、シナプトネマ複合体で全長をぴったり結びつける段階を synapsis と呼び分けることがあります。日本語の教科書ではどちらも「対合」と訳されることが多く、混同しやすい言葉です。教科書では、相同染色体がぴったり並ぶことを synapsis と呼び、その間にシナプトネマ複合体というタンパク質の格子ができると説明されています[2]。シナプトネマ複合体は、相同染色体の軸どうしを全長にわたってつなぐ、減数分裂に特有の構造です[1]。
💡 用語解説:シナプトネマ複合体(しなぷとねまふくごうたい)
対合した相同染色体の間にできる、はしごのような形のタンパク質の構造です。2本の染色体の軸をはしごの両側の柱とすると、その間を横木のようなタンパク質がつなぎ、2本を一定の間隔で並べておきます。詳しくは第4章とシナプトネマ複合体のページで解説しています。
二価染色体とは?対合した相同染色体のペア
対合して結びついた相同染色体のペアを二価染色体(bivalent)といいます。減数分裂の前にDNAは複製されているので、相同染色体の1本1本は、同じDNAをもつ2本の姉妹染色分体からなります。そのため二価染色体には4本の染色分体が含まれ[3]、四分染色体(tetrad)とも呼ばれます[2]。ヒトには23対の相同染色体があります[2]。
📘 対合にかかわる言葉の整理
| 言葉 | 意味 | 染色分体の数 |
|---|---|---|
| 相同染色体 | 父由来と母由来の、同じ番号の染色体2本 | 複製後は1本につき2本 |
| 対合 | 相同染色体が並んで結びつくこと(現象) | ― |
| 二価染色体(四分染色体) | 対合した相同染色体のペア | 4本 |
| 一価染色体 | 相手と結びつけずに残った染色体 | 2本 |
| 四価染色体 | 相互転座をもつ人で、4本の染色体がひとまとまりに対合したもの | 8本 |
2. 対合は減数分裂のいつ起こる?──第一分裂前期の5つの時期
対合は減数第一分裂の前期に起こり、合糸期(ザイゴテン期)に始まって太糸期(パキテン期)に全長がそろいます。第一分裂前期は長い期間で、5つの時期に分けられています。合糸期にシナプトネマ複合体ができ始め、対合が完了したところから太糸期が始まり、複糸期に入ると対合がほどけ始めます[3]。
体細胞分裂では対合は起こらない
体細胞分裂では、相同染色体どうしは対合しません。体細胞分裂で分かれるのは、複製によってできた姉妹染色分体どうしで、父由来と母由来の染色体はそれぞれ単独でふるまいます。多くの細胞では相同染色体はそれぞれ独立した染色体としてふるまい、対合して二価染色体をつくるのは減数分裂の第一分裂前期です[3]。第二分裂では、体細胞分裂と同じように姉妹染色分体が分かれます。
卵子では、対合のあと長い停止期間がある
女性の卵子のもとになる細胞(卵母細胞)は、胎児期に減数分裂を始め、第一分裂前期の複糸期で止まった状態(ディクチオテン期停止)で長い期間を過ごします。ヒトでは、2本をつなぎ留めるコヒーシンが数十年にわたって保たれることになります[5]。この長い待機が、年齢とともに染色体の数の異常が増える理由の一つとして研究されています(第6章)。
3. 対合の相手はどうやって見つける?
相同染色体は、第一分裂前期の染色体の動きと、DNAの配列を照らし合わせるしくみを使って相手を見つけます。核の中には46本の染色体が詰まっており、その中から同じ番号の相手を見つける必要があります。研究でわかってきたしくみを、3つに分けて説明します。
染色体の端(テロメア)が核膜に付き、染色体が動く
減数分裂の第一分裂前期には、染色体の端(テロメア)が核の膜に付けられます。哺乳類では、TERB1・TERB2・MAJINという減数分裂に特有のタンパク質の複合体が、テロメアを核膜の内側の膜につなぎ留めることがわかっています[6]。また、第一分裂前期には染色体がさまざまな動きをすることが知られています[1]。核膜と細胞骨格をつなぐ構造についてはLINC複合体のページで解説しています。
DNAをわざと切って、相手の配列を確かめる(SPO11・PRDM9)
多くの生物では、組換えが第一分裂前期の相同染色体の対合を仲立ちします。減数分裂では、SPO11という酵素がDNAの二重らせんをわざと切り(DNA二本鎖切断)、切れたDNAは相手の相同染色体を鋳型にして相同組換えで修復されます。この「切って、相手の配列で直す」過程が、相手が同じ配列かを確かめることと、2本を結びつけることにつながります[1][7]。
組換えが起こりやすい場所(ホットスポット)を決める酵素として、PRDM9が知られています。マウスの精母細胞では、PRDM9が組換えのホットスポットで、ヒストン(DNAを巻きつけているタンパク質)にH3K4とH3K36のトリメチル化という2種類の目印を、同じヌクレオソームに付けることが示されています[8]。ヒストンの目印についてはヒストンメチル化のページで解説しています。
DNAを切らずに対合する生物もいる
一方で、DNA二本鎖切断がなくても対合する生物も知られています。線虫(C. elegans)では、SPO11をもたない変異体でも相同染色体のシナプシスが正常に起こり、キイロショウジョウバエの雄では、シナプシスも組換えもないまま精子がつくられます。マウスでも、対合の早い段階はSPO11の切断に頼らないことが報告されています[7]。対合のしくみは、生物によって、また時期によって違うのです。
分裂酵母では、ある遺伝子座(sme2)から読み出された長いRNAが染色体の上にとどまり、RNAとタンパク質の集まりをつくります。この集まりは、液体の滴のようにふるまう液–液相分離の性質をもち、その性質を壊す薬剤で処理すると、その場所の対合が失われたと報告されています[9]。ヒトで同じしくみが働いているかは、わかっていません。
4. シナプトネマ複合体のでき方──対合を固定する構造
並んだ相同染色体は、シナプトネマ複合体というはしご状のタンパク質の構造によって全長が結びつけられ、対合が完成します。シナプトネマ複合体は、相同染色体の軸どうしを全長にわたってつなぐ、減数分裂に特有の構造です[1]。合糸期にでき始め、太糸期のはじめに完成します[3]。
シナプトネマ複合体のつくり(模式図)
2本の染色体の軸を、はしごの横木のようなタンパク質がつなぐ
染色体の軸|父由来の相同染色体
┃┃┃┃┃
2本をつなぐタンパク質|全長にわたって一定の間隔で結びつける
┃┃┃┃┃
染色体の軸|母由来の相同染色体
ヒトでシナプトネマ複合体にかかわるタンパク質には、SYCP3や、SYCE1と結合して中央部をつくるC14orf39(SIX6OS1)などがあり、その遺伝子の変化はシナプトネマ複合体の異常や対合の不全につながります[10][11]。関連する遺伝子については、SYCP3遺伝子・SYCP1遺伝子・SYCE1遺伝子のページで解説しています。姉妹染色分体を束ねるコヒーシンにも、減数分裂用のもの(REC8・SMC1B・STAG3など)があります[5][12]。
固い構造ではなく、中身が入れ替わる「液晶」のような構造
シナプトネマ複合体は、形は規則正しいのに、部品のタンパク質が出入りして入れ替わる、液晶のような性質をもつことが線虫で示されています。この研究では、シナプトネマ複合体が、染色体全体の交叉の分布を調節する通り道として働く可能性が示されました[13]。
1本の染色体で交叉が起こると、その近くでは2つ目の交叉が起こりにくくなる現象(交叉干渉)が知られています[3]。シナプトネマ複合体は、2本を結びつけるだけでなく、交叉の数と位置を整える場にもなっていると考えられています。構造の詳しい話はシナプトネマ複合体のページにまとめています。
5. 対合から交叉・分離まで──キアズマにつなぐ流れ
対合した相同染色体の間では交叉(乗換え)が起こり、その場所がキアズマとして2本をつなぎ留めたまま第一分裂へ進みます。複糸期に対合がほどけ始めても、交叉の場所(キアズマ)が、紡錘体が引き離すまで父由来と母由来の染色体をつなぎ留めます。姉妹染色分体の腕はコヒーシンというタンパク質で全長にわたって接着されており、これもつなぎ留めに役立ちます[3]。対合した2本が向き合っていた面を対合面と呼ぶことがあり、第一分裂後期には、相同染色体がこの面を境に両側へ分かれます。
対合から第一分裂で分かれるまでの流れ(模式図)
交叉の場所の数や、1本の染色体に少なくとも1つのキアズマができる決まりなど、交叉そのものの詳しい話はキアズマのページで解説しています。
X染色体とY染色体も対合する?
X染色体とY染色体は、端にある短い共通の領域(偽常染色体領域、PAR)でだけ対合し、交叉します。男性の減数分裂では、XとYの対合と組換えはこの領域に限られ、PAR1(長さ約2.7Mb)での交叉は、XとYが正しく分かれるために欠かせません。男性のPAR1での交叉の起こりやすさは、ゲノム平均の17倍と報告されています[14]。
6. 遺伝・医療とのつながり:対合がうまくいかないと何が起こる?
対合がうまくいかないと、染色体の数が正しく分けられない卵子・精子ができたり、卵子・精子そのものがつくられなくなったりします。対合は教科書の中の話ではなく、流産・不妊・染色体の病気と直接つながっています。
相手と結びつけない染色体は、正しく分かれにくい
対合や交叉が不十分で相手と結びつけなかった染色体は、一価染色体として残ります。キアズマをもたない相同染色体のペアは正常に分かれず、染色体の数が過不足する配偶子ができる原因になります[3]。これが染色体の不分離につながり、ある染色体を1本多く、または1本少なくもつ卵子・精子ができます。受精卵が21番染色体を1本多くもてばダウン症候群(21トリソミー)になります。
妊娠中に赤ちゃんの染色体の数の異常を調べる方法の一つがNIPT(新型出生前診断)です。当院のNIPTは、すべてのプランで13・18・21トリソミーを調べます。NIPTは母体の血液で調べる検査なので、陽性のときは羊水検査などの確定検査で確かめます。
年齢とともに、2本をつなぎ留める力が弱くなる
第2章で触れたように、卵母細胞は胎児期に減数分裂を始め、複糸期で長く止まったまま待ちます。2本をつなぎ留めておくのは、染色分体を束ねる減数分裂用のコヒーシンです。19〜49歳の女性8人の卵母細胞を調べた研究では、40歳以上の群(平均42.5歳)で、29歳以下の群(平均23.3歳)より、減数分裂用のコヒーシンであるREC8が24%、SMC1Bが38%少なくなっていました(卵母細胞ごとの比較)。女性ごとの平均で比べると、有意に少なかったのはSMC1Bでした[5]。著者らは、減数分裂用のコヒーシンが補充されないと、染色分体どうしの接着が時間とともに弱まると考察しています[5]。卵子の年齢と染色体の数の異常の関係は、卵子で染色体の数の異常が起こるしくみのページで詳しく解説しています。
転座をもつ人では、4本の染色体がひとまとまりに対合する(四価染色体)
2本の染色体の一部が入れ替わった相互転座をもつ人では、入れ替わった2本と正常な2本の計4本が、ひとまとまりになって対合します。転座した染色体は2本の正常な染色体の両方と一部ずつ同じ配列をもつため、全長を対合させるには4本が集まる必要があり、これを四価染色体といいます。ロバートソン転座(例:14番と21番がつながったもの)では、転座した染色体と正常な2本の計3本が三価染色体をつくります[15]。
四価染色体が分かれるときの組み合わせによっては、遺伝情報が多すぎたり足りなかったりする(不均衡な)卵子・精子ができます[15]。相互転座の分かれ方には何通りもあり、均衡のとれた配偶子になるのはその一部です。相互転座をもつ男性318人の精子を調べた報告をまとめた研究では、均衡のとれた精子の割合は平均44.26%でした[16]。反復流産の夫婦を調べた調査では、3%の夫婦が常染色体の相互転座を、2%がロバートソン転座をもっていたと報告されています[15]。
均衡型の転座をもつ方は、ご本人はほとんどの場合健康で、流産をくり返したり、なかなか妊娠しなかったりして初めてわかることがあります。転座は、血液で調べる染色体検査(Gバンド法)で見つけることができます。当院の染色体検査では、相互転座・ロバートソン転座・逆位などの均衡型の構造の変化がわかり、流産をくり返す原因を調べる場合はご夫婦そろって受けることをおすすめしています。転座のしくみはロバートソン転座や均衡型構造異常のページで解説しています。

🩺 院長コラム【健康な人の染色体が、流産の原因になることがある】
均衡型の転座をもつ方は、遺伝情報の量に過不足がないので、ご本人の体には何も起こりません。ところが卵子や精子をつくるときには、4本の染色体がひとまとまりになって対合しなければならず、分かれ方によっては遺伝情報が多すぎたり足りなかったりする卵子・精子ができます。
ご本人が健康であることと、子どもに受け渡す染色体に偏りが出うることは、両立します。流産が続いたときにご夫婦の染色体を調べる意味は、ここにあると考えています。原因がわかれば、次の妊娠でどのような選択肢があるかを、根拠をもって考えることができます。
対合にかかわる遺伝子の変化は、男性・女性の不妊の原因になる
シナプトネマ複合体や減数分裂用のコヒーシンをつくる遺伝子が働かないと、対合が完成せず、精子や卵子がつくられなくなることがあります。精子をつくる細胞で対合が完成しないと、減数分裂が途中で止まり(減数分裂停止)、精液中に精子がまったく見つからない非閉塞性無精子症になることがあります。女性では、卵子のもとが早くなくなる早発卵巣不全の原因になることがあります。
🧬 対合にかかわり、ヒトの不妊・流産との関係が報告されている遺伝子の例
| 遺伝子 | 対合での役割 | 報告されていること |
|---|---|---|
| TEX11 | X染色体上の遺伝子。組換えとシナプシスにかかわる | 無精子症の男性289人中7人(2.4%)に変化が見つかり、減数分裂停止による無精子症では33人中5人(15%)だった[17] |
| STAG3 | 減数分裂用コヒーシンの部品 | 遺伝性の早発卵巣不全の近親婚の大家系で、ホモ接合性の変化が見つかった。Stag3をもたない雌マウスは不妊で、卵母細胞が第一分裂前期の早い段階で止まる[12] |
| SYCP3 | シナプトネマ複合体の軸の骨組み | 原因不明の反復流産の女性26人中2人に、SYCP3のヘテロ接合性の変化が見つかり、妊娠歴のある女性150人には見られなかった[10] |
| C14orf39(SIX6OS1) | シナプトネマ複合体の中央要素。SYCE1と結合する | ホモ接合性の変化が、非閉塞性無精子症の男性と早発卵巣不全の女性で報告された(3家系・5人)[11] |
当院の男性不妊症遺伝子検査(NGSパネル)は181遺伝子を調べる検査で、表のTEX11・STAG3・SYCP3・C14orf39のほか、SYCP2・SYCE1も調べる遺伝子に入っています。女性不妊症NGS遺伝子パネル検査は、早発卵巣不全などの不妊の原因になる143遺伝子を調べる検査で、STAG3・SYCE1が入っています。どちらも血液のほか、唾液や口の内側の粘膜でも検査できます。
同じ遺伝子でも、男性と女性で現れ方が違うことがある
ヒストンの目印を読み取るZCWPW1という遺伝子を働かなくしたマウスでは、雄はシナプシスがまったく完成せず、合糸期から太糸期のところで減数分裂が止まって不妊になりました。一方、雌は中年期までは正常に子どもを産めました[18]。表のC14orf39(SIX6OS1)のように男女どちらにも不妊が起こる遺伝子もあれば、このように男女で現れ方が大きく違う遺伝子もあります[11][18]。
🩺 院長コラム【「原因不明」の不妊を、減数分裂の視点で見る】
精子がまったく見つからない、卵巣の働きが早く止まる、といった不妊は、長く「原因不明」とされてきました。けれども対合にかかわる遺伝子が次々にわかってきたことで、その一部は遺伝子の変化として説明できるようになっています。
原因がわかっても、すぐに治せるとは限りません。それでも、原因が遺伝子の変化だとわかれば、きょうだいへの影響や、次にどの治療を選ぶかを考える手がかりになります。対合という基礎の知識は、こうした判断の土台になると考えています。
よくある質問(FAQ)
Q1. 対合とは何ですか?
対合(たいごう)とは、減数分裂の第一分裂前期に、父由来と母由来の相同染色体が並び、全長にわたって結びつくことです。結びついたペアは二価染色体と呼ばれ、その間で交叉が起こったあと、第一分裂で別々の細胞へ分かれます。
Q2. 対合は減数分裂のいつ起こりますか?
減数第一分裂の前期です。合糸期(ザイゴテン期)にシナプトネマ複合体ができ始めて対合が始まり、対合が完了したところから太糸期(パキテン期)が始まります。複糸期に入ると対合がほどけ始め、キアズマの部分でつながったまま中期へ進みます。
Q3. 対合の読み方は「たいごう」ですか、「ついごう」ですか?
生物学の対合(相同染色体の対合)は「たいごう」と読みます。「ついごう」は数学の用語(2回くり返すと元に戻る変換、involution)の読み方で、意味が違います。
Q4. 対合と交叉(乗換え)はどう違いますか?
対合は相同染色体が並んで結びつくこと、交叉は結びついた相同染色体の間でDNAの一部が入れ替わることです。対合が先に起こり、その中で交叉が起こります。交叉の場所はキアズマとして、第一分裂まで2本をつなぎ留めます。
Q5. 二価染色体と対合の関係は?
対合して結びついた相同染色体のペアを二価染色体といいます。相同染色体の1本1本は複製ずみで2本の姉妹染色分体からなるので、二価染色体には4本の染色分体が含まれ、四分染色体とも呼ばれます。
Q6. 体細胞分裂でも対合は起こりますか?
起こりません。体細胞分裂では姉妹染色分体どうしが分かれ、相同染色体はそれぞれ独立した染色体としてふるまいます。相同染色体が対合して二価染色体をつくるのは、減数分裂の第一分裂前期です。
Q7. X染色体とY染色体も対合しますか?
対合します。ただし、XとYが同じ配列をもつのは端の短い領域(偽常染色体領域、PAR)だけなので、男性の減数分裂ではこの領域でだけ対合と組換えが起こります。PAR1での交叉は、XとYが正しく分かれるために欠かせません。
Q8. 対合がうまくいかないとどうなりますか?
相手と結びつけなかった染色体は第一分裂で正しく分かれにくく、染色体の数が多い・少ない卵子や精子ができることがあります。また、対合にかかわる遺伝子が働かないと、減数分裂が途中で止まり、精子や卵子がつくられないことがあります。相互転座をもつ人では、4本の染色体がひとまとまりになって対合し(四価染色体)、遺伝情報に過不足のある卵子・精子ができることがあります。
まとめ
対合(たいごう)とは、減数分裂の第一分裂前期に、父由来と母由来の相同染色体が並び、全長にわたって結びつくことです。合糸期に始まり太糸期に完成し、対合したペアは二価染色体と呼ばれます。多くの生物では、相同染色体は組換え(DNA二本鎖切断とその修復)を手がかりに相手と結びつき、シナプトネマ複合体によって結びつけられます[1]。
対合と交叉は、第一分裂で相同染色体を正しく分けるための土台です。対合がうまくいかないと染色体の不分離が起こりやすくなり、転座をもつ人では四価染色体ができて不均衡な卵子・精子ができることがあります。対合にかかわる遺伝子の変化は、男性・女性の不妊の原因にもなります。
🔬 流産・不妊と染色体・遺伝子の検査をお考えの方へ
当院では、ご夫婦の転座などを調べる染色体検査(Gバンド法)と、対合にかかわる遺伝子を含む男性不妊症遺伝子検査・女性不妊症遺伝子パネル検査を行っています。臨床遺伝専門医が、検査の前後に結果の意味を説明します。検査を受けるかどうか決める前に、遺伝カウンセリングとはもご覧ください。
参考文献
- [1] Zickler D, Kleckner N. Recombination, Pairing, and Synapsis of Homologs during Meiosis. Cold Spring Harb Perspect Biol. 2015;7(6):a016626. doi:10.1101/cshperspect.a016626 [PubMed 25986558]
- [2] Clark MA, Douglas M, Choi J. 11.1 The Process of Meiosis. Biology 2e. OpenStax; 2018. [OpenStax]
- [3] Alberts B, Johnson A, Lewis J, et al. Meiosis. Molecular Biology of the Cell. 4th ed. Garland Science; 2002. [NCBI Bookshelf NBK26840]
- [4] 「対合」(デジタル大辞泉/精選版 日本国語大辞典/ブリタニカ国際大百科事典 小項目事典). コトバンク. [コトバンク]
- [5] Tsutsumi M, Fujiwara R, Nishizawa H, et al. Age-Related Decrease of Meiotic Cohesins in Human Oocytes. PLoS One. 2014;9(5):e96710. doi:10.1371/journal.pone.0096710 [PubMed 24806359]
- [6] Dunce JM, Milburn AE, Gurusaran M, et al. Structural basis of meiotic telomere attachment to the nuclear envelope by MAJIN-TERB2-TERB1. Nat Commun. 2018;9:5355. doi:10.1038/s41467-018-07794-7 [PubMed 30559341]
- [7] Solé M, Pascual Á, Anton E, Blanco J, Sarrate Z. The courtship choreography of homologous chromosomes: timing and mechanisms of DSB-independent pairing. Front Cell Dev Biol. 2023;11:1191156. doi:10.3389/fcell.2023.1191156 [DOI]
- [8] Powers NR, Parvanov ED, Baker CL, et al. The Meiotic Recombination Activator PRDM9 Trimethylates Both H3K36 and H3K4 at Recombination Hotspots In Vivo. PLoS Genet. 2016;12(6):e1006146. doi:10.1371/journal.pgen.1006146 [PubMed 27362481]
- [9] Ding DQ, Okamasa K, Katou Y, et al. Chromosome-associated RNA–protein complexes promote pairing of homologous chromosomes during meiosis in Schizosaccharomyces pombe. Nat Commun. 2019;10:5598. doi:10.1038/s41467-019-13609-0 [PubMed 31811152]
- [10] Bolor H, Mori T, Nishiyama S, et al. Mutations of the SYCP3 Gene in Women with Recurrent Pregnancy Loss. Am J Hum Genet. 2009;84(1):14-20. doi:10.1016/j.ajhg.2008.12.002 [PubMed 19110213]
- [11] Fan S, et al. Homozygous mutations in C14orf39/SIX6OS1 cause non-obstructive azoospermia and premature ovarian insufficiency in humans. Am J Hum Genet. 2021;108(2):324-336. doi:10.1016/j.ajhg.2021.01.010 [PubMed 33508233]
- [12] Caburet S, Arboleda VA, Llano E, et al. Mutant Cohesin in Premature Ovarian Failure. N Engl J Med. 2014;370(10):943-949. doi:10.1056/NEJMoa1309635 [PubMed 24597867]
- [13] Rog O, Köhler S, Dernburg AF. The synaptonemal complex has liquid crystalline properties and spatially regulates meiotic recombination factors. eLife. 2017;6:e21455. doi:10.7554/eLife.21455 [PubMed 28045371]
- [14] Hinch AG, Altemose N, Noor N, Donnelly P, Myers SR. Recombination in the Human Pseudoautosomal Region PAR1. PLoS Genet. 2014;10(7):e1004503. doi:10.1371/journal.pgen.1004503 [PubMed 25033397]
- [15] Kurahashi H, Kogo H, Tsutsumi M, Inagaki H, Ohye T. Failure of homologous synapsis and sex-specific reproduction problems. Front Genet. 2012;3:112. doi:10.3389/fgene.2012.00112 [PubMed 22719750]
- [16] Del Llano E, Perrin A, Morel F, et al. Sperm Meiotic Segregation Analysis of Reciprocal Translocations Carriers: We Have Bigger FISH to Fry. Int J Mol Sci. 2023;24(4):3664. doi:10.3390/ijms24043664 [DOI]
- [17] Yatsenko AN, Georgiadis AP, Röpke A, et al. X-Linked TEX11 Mutations, Meiotic Arrest, and Azoospermia in Infertile Men. N Engl J Med. 2015;372(22):2097-2107. doi:10.1056/NEJMoa1406192 [PubMed 25970010]
- [18] Li M, Huang T, Li MJ, et al. The histone modification reader ZCWPW1 is required for meiosis prophase I in male but not in female mice. Sci Adv. 2019;5(8):eaax1101. doi:10.1126/sciadv.aax1101 [PubMed 31453335]






