

目次

ヒトの一人ひとりの違いは、たった1文字の違いだけで生まれるわけではありません。ときにゲノムは、数十万〜数百万塩基におよぶ大きな「欠失(消える)」や「重複(増える)」を起こします。その多くをつくり出している仕組みが非対立遺伝子相同組換え(非対立遺伝子間相同組換え、NAHR:Non-Allelic Homologous Recombination)です。NAHRは、本来なら正しい相手どうしで起こるはずの相同組換えが、ゲノム上に散らばるよく似た別の場所(非対立の配列)を相手に取り違えて起きてしまう現象です。この記事では、NAHRとは何か、なぜ同じ欠失が多くの人で繰り返し起こるのか、そしてシャルコー・マリー・トゥース病やウィリアムズ症候群といった病気とどうつながるのかを、臨床遺伝専門医の視点でわかりやすく解説します。
Q. 非対立遺伝子相同組換え(NAHR)とは何ですか?まず結論だけ知りたいです
A. NAHRとは、ゲノム上に散らばるよく似た配列(低コピーリピート)どうしが、本来の相手ではない「非対立」の場所で誤って組換わってしまう相同組換えのことです。その結果、間の領域が失われる欠失や、増える重複、向きが反転する逆位が生じます。似た配列が同じ場所にあるため、異なる人でも類似したサイズ・共通のLCR内の切断点領域で繰り返し起こりやすく、シャルコー・マリー・トゥース病1A(CMT1A)やウィリアムズ症候群など、多くの「再発性ゲノム疾患」の主な原因になっています。
- ➤正体 → 相同組換え(HR)の一種。正しい対立位置ではなく、よく似た別の場所(非対立のLCR)で誤って組換わる
- ➤基質 → 低コピーリピート(LCR)。この誤整列がゲノムのホットスポットになる
- ➤結果は向きしだい → 同じ向きなら欠失・重複、逆向きなら逆位、別の染色体上なら転座
- ➤再発性 → 共通のLCRを介して繰り返すため、多くの人で類似した範囲の欠失・重複が生じる
- ➤代表疾患 → CMT1A/HNPP、22q11.2欠失症候群、ウィリアムズ症候群、スミス・マジェニス症候群など
🧬 NAHRの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | ひたいりついでんしそうどうくみかえ/非対立遺伝子間相同組換え。英語 Non-Allelic Homologous Recombination(NAHR) |
| 定義 | 相同組換え(HR)の一種で、対立位置ではなく、よく似た非対立の配列(LCR)どうしで誤って起こる組換え |
| 基質(起こる場所) | 低コピーリピート(LCR)/セグメント重複。長さの目安10〜300 kb、配列同一性95〜97%以上 |
| 起こる時期 | おもに減数分裂(精子・卵子をつくる過程)。体細胞分裂でも起こりうる |
| 主な結果 | LCRの向きにより、欠失・重複・逆位・転座 |
| 医療との関わり | 再発性の微細欠失・重複症候群(ゲノム病)の主要な原因機構の一つ |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
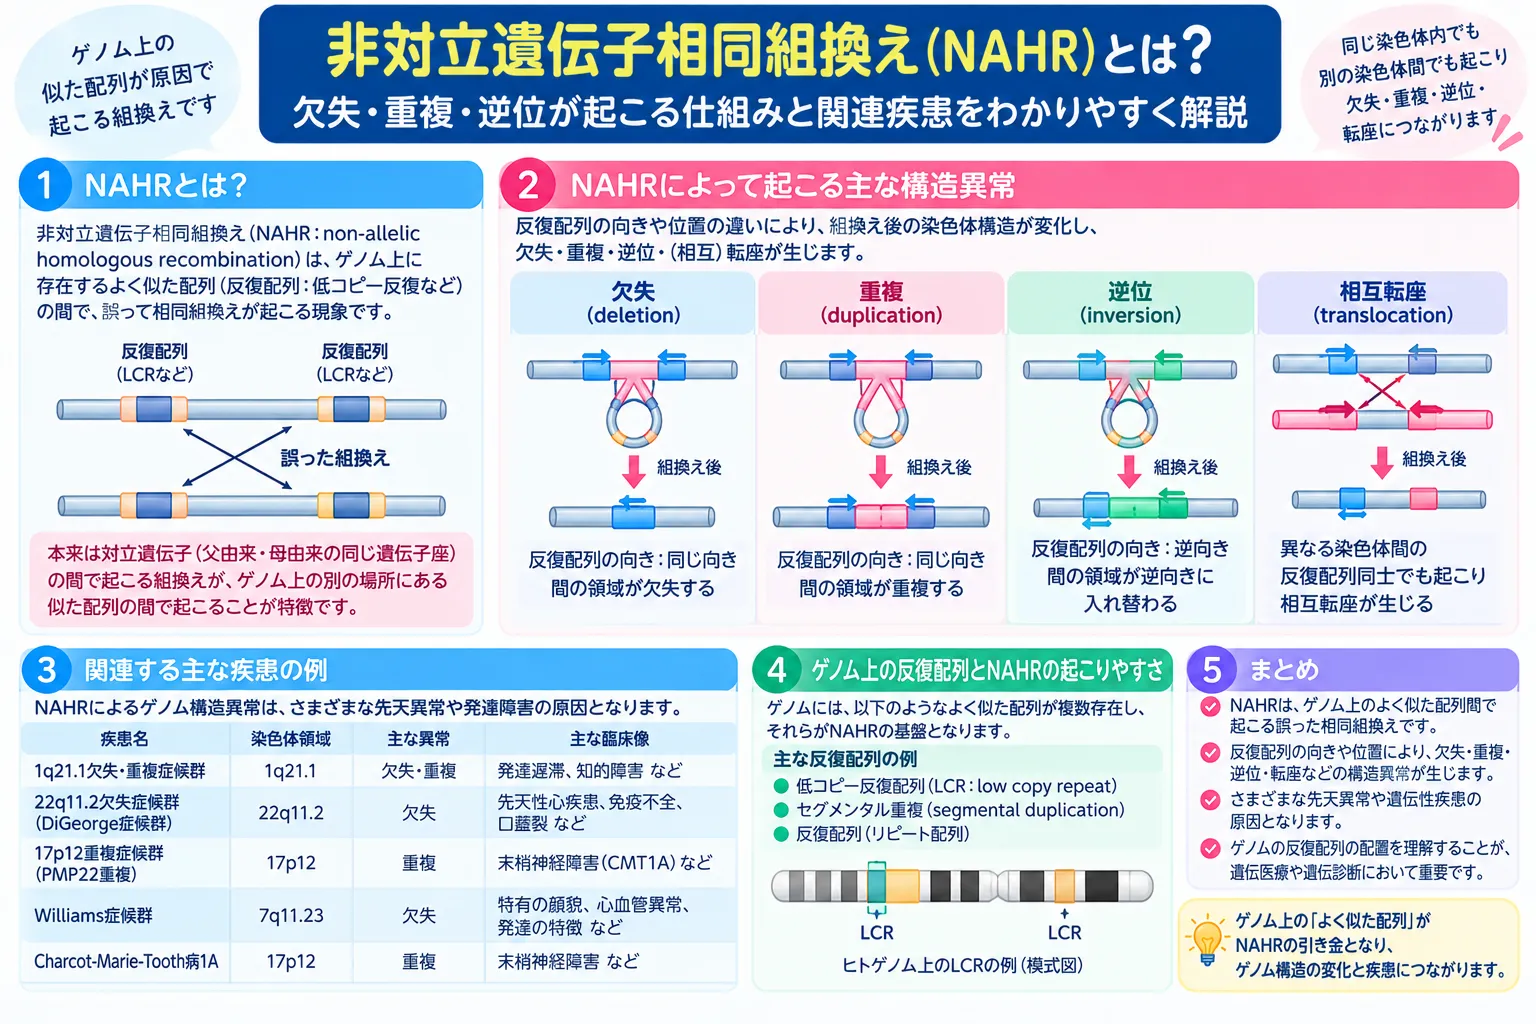
低コピーリピート(LCR)などの高い相同性をもつ配列が非対立位置で誤って組換わると、配列の向きや位置に応じて欠失・重複・逆位などのゲノム再配列が生じます。
1. 非対立遺伝子相同組換え(NAHR)とは ─ 似た配列どうしの「取り違え」
非対立遺伝子相同組換え(NAHR)とは、ゲノム上のよく似た配列どうしが、本来の相手ではない「非対立」の場所で誤って組換わってしまう相同組換えのことです。ふつうの相同組換え(HR)は、父由来と母由来の染色体が「正しいパートナー(対立位置)」どうしで並んで交換します。ところがゲノムには、進化の途中でコピーされたためによく似た配列が別の場所にも存在します。この似すぎた配列を相手だと勘違いして組換えが起こるのがNAHRで、その結果として、間にある領域が失われたり(欠失)増えたり(重複)します[1]。
💡 用語解説:「対立」と「非対立」の違い
「対立(アレリック)」とは、父由来・母由来の染色体で同じ位置にある、本来ペアになるべき相手のことです。正常な相同組換えはこの対立位置で起こります。一方「非対立(ノンアレリック)」とは、配列はよく似ているものの、ゲノム上の別の場所にある相手のことです。NAHRは、この非対立の相手を誤ってペアにしてしまう点が、正常な相同組換えとの決定的な違いです。本の中で、よく似た別のページや行を取り違えて、途中をごっそり飛ばしたり同じところを2回読んだりしてしまう——そんなイメージがNAHRに近いものです。
NAHRの基質(誤って組換わる相手)になるのは、低コピーリピート(LCR:Low Copy Repeats、セグメント重複ともいう)と呼ばれる、よく似たDNAの塊です。これらのLCRは、霊長類が枝分かれしてくる進化の過程でDNAが部分的にコピーされて生じたと考えられており、ヒトゲノムのおよそ5%を占めるとされます[2]。つまり、ヒトはそもそもLCRを多く抱え込んでいるために、ゲノムの再配列(組み替わり)を起こしやすい性質を持っている、ということになります。NAHRはおもに減数分裂のときに起こりますが、体細胞分裂の際にも生じることがあります[1]。
見落とされがちですが、NAHRには「悪さをする仕組み」という側面だけでなく、進化の原動力という側面もあります。遺伝子がコピーされて重複すると、片方は元の役割を保ちつつ、もう片方が新しい機能を獲得する余地が生まれます。こうした遺伝子重複による多様性は、進化のうえで塩基1文字の変化と並ぶ材料になります[1]。同じ仕組みが、ある人にとっては疾患の原因になり、種にとっては多様性の源にもなる——これがNAHRの二面性です。ここから先は、この現象が「病気」とどうつながるのかを中心に見ていきます。
2. なぜ起こるのか ─ 低コピーリピート(LCR)というホットスポット
NAHRがどこで起こるかは、ゲノムの「地形」で決まります。その主役が低コピーリピート(LCR)です。典型的な再発性ゲノム再配列では、NAHRの基質としてLCRが重要です。ただし、NAHRはLCRだけに限定されず、AluやLINEなど高い相同性をもつ反復配列が基質になる例も知られています[1]。似すぎた配列が2か所以上にあると、細胞がそれらを取り違えて並べてしまう(ミスアライメント)ことがあり、そこが組換えのホットスポット(起こりやすい地点)になります。
💡 用語解説:LCRの「似ている度合い」の目安
NAHRの基質になるLCRには、おおまかな目安があります。長さはおよそ10〜300 kb(キロベース)、配列同一性は95〜97%以上、そして互いに10 Mb(メガベース)以内の距離にある、といった条件です[3]。数値には文献による幅がありますが、いずれも「短すぎず・似すぎている」ことが取り違えの前提になります。一般に、LCRが長いほど、また同一性が高いほど、生殖細胞で再配列が起こる頻度は上がる傾向があります。
誤って並んだLCRのあいだで組換えが起こると、DNAが均等ではない形で交差します。これを不等交差(不等な交差)といいます。正常な組換えでは失われる情報も増える情報もありませんが、非対立の位置でずれて交差すると、間の領域が丸ごと欠けたり、逆に二重になったりします。流れをまとめると次のようになります。
誤って整列
不等に交差
逆位が生じる
LCRの「似ている度合い」は、NAHRの起こりやすさそのものに影響します。一般に、LCRが長いほど、また配列同一性が高いほど、生殖細胞で再配列が起こる頻度は上がることが知られています[3]。さらに、NAHRのホットスポットの内部では、DNAの一部だけが一方向に写し取られる遺伝子変換(gene conversion)もしばしば観察され、組換えが特定の狭い領域に集中します[1]。似た配列は、進化の途中で1つの領域がコピーされて生じた「セグメント重複」であることが多く、ヒトはこうした構造を多く抱えているぶん、取り違えの素地も持っている、という関係になります。
LCRはゲノム内で安定した構造として存在するため、こうした取り違えはいつも同じ場所で起こりやすくなります。染色体17p11〜12領域のように、領域の3割近くがLCR配列で占められた「NAHRが特に起こりやすい一帯」も知られています。この「同じ場所で繰り返す」という性質こそ、NAHRが医学的に重要になる理由につながっていきます。
3. LCRの「向き」で結果が変わる ─ 欠失・重複・逆位
NAHRが欠失・重複・逆位のどれを起こすかは、組換わるLCRの「向き」と「位置」で決まります。これはNAHRを理解するうえで最も大切なポイントです。結論を先に示すと、同じ向き(順方向反復)なら欠失と重複、逆向き(逆方向反復)なら逆位、別々の染色体上なら転座が生じます[3]。
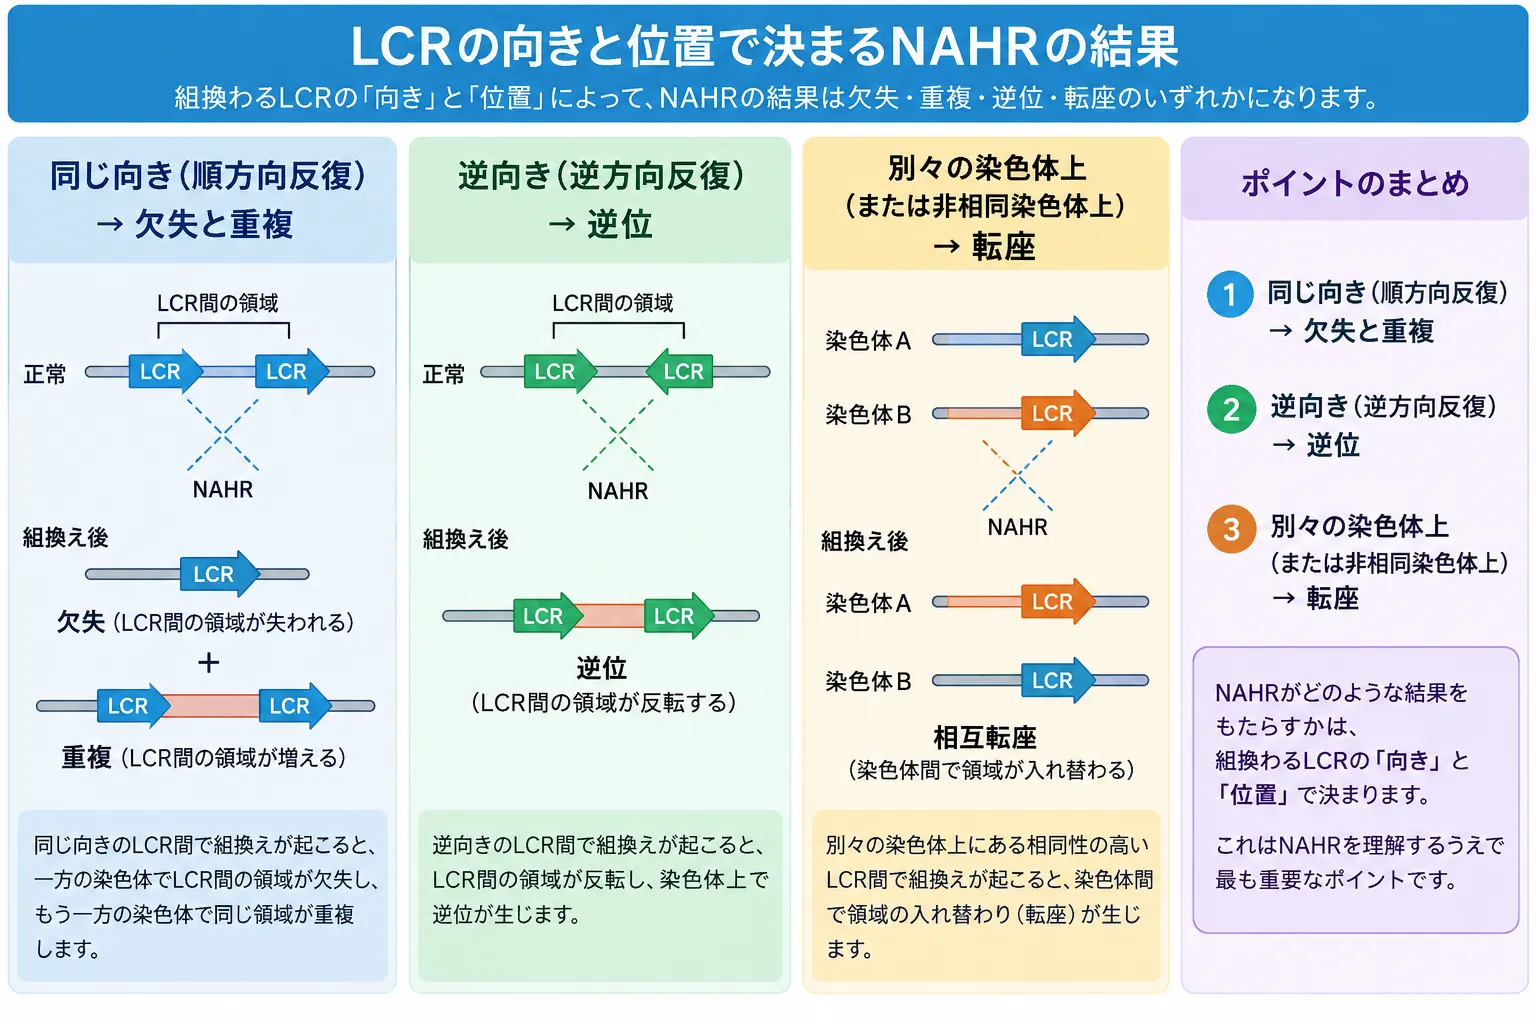
非対立遺伝子相同組換え(NAHR)では、組換わる低コピーリピート(LCR)の向きと位置によって生じる構造変異が異なります。同じ向きのLCR間では欠失・重複、逆向きでは逆位、別の染色体上の相同性の高い配列間では転座が生じることがあります。
| LCRの向き・位置 | NAHRで生じる主な結果 |
|---|---|
| 同じ向き(順方向反復) | 欠失と、その相反する産物である重複(間の領域が失われる/二重になる) |
| 逆向き(逆方向反復) | 逆位(間の領域の向きが反転する。多くは無症状だが、次世代で不均衡を生む素地になりうる) |
| 別々の染色体上 | 転座(離れた染色体どうしがつなぎ変わる。再発性の転座の一因) |
ここで注目したいのは、欠失と重複が「相反する産物」として同時に予測される点です。順方向のLCR間でNAHRが起こると、一方の配偶子では間の領域が欠失し、もう一方では同じ領域が重複します。つまり、ある領域の「欠失症候群」と「重複症候群」は、多くの場合コインの裏表の関係にあります。後で述べるCMT1A(重複)とHNPP(欠失)、スミス・マジェニス症候群(欠失)とポトキ・ルプスキ症候群(重複)は、その代表的なペアです。
逆方向反復が引き起こす逆位は、それ自体は遺伝子量を変えないため、本人は無症状のことが多いものです。ただし、逆位を持つ人の生殖細胞では、次の世代でさらに複雑な不均衡(欠失や重複)が生じる素地になることがあります。実際、逆向きのLCR(逆方向LCR)はヒトゲノムに広く分布しており、ゲノムの相当な割合が、こうした逆位を起こしうる潜在的な感受性を持つと報告されています[3]。また、逆向きのLCRが近くにあると、いったん生じた重複がさらに複雑な三重複(トリプリケーション)や、重複と逆位が入り混じった再配列へと発展することもあり、逆方向反復はゲノム不安定性の隠れた温床になっています[3]。
💡 身近な逆位の例:9番染色体のinv(9)
ヒトでよくみられる染色体の逆位として、9番染色体の腕内逆位 inv(9)(p11q13) などがあります。9番染色体のセントロメア周辺には、αサテライト、βサテライト、Satellite IIIなどの反復DNAが豊富に存在し、これらの領域には組換えや再配列が起こりやすい部位があることが示されています[10]。ただし、一般的なinv(9)を典型的な「逆向きLCR間のNAHR」だけで生じたものと断定することはできません。研究では、反復配列間の組換えに加えて、反復配列内での切断と再結合など複数の形成機構が考えられています[10]。一般集団でみられる典型的なinv(9)は、通常は染色体ヘテロモルフィズム(正常変異)として扱われ、明確な表現型を伴わないことが多いとされています。
4. なぜ「同じ欠失」が多くの人で繰り返すのか ─ 再発性ゲノム疾患
NAHRの大きな特徴は、異なる人であっても「共通のLCRに挟まれた、類似した範囲の再配列」が繰り返し生じることです。LCRはゲノム内で位置が決まった構造なので、切断点は同一塩基に固定されるのではなく、対応するLCR内の特定領域に集中します。その結果、複数の患者さんが同一の欠失や重複を示し、ひとまとまりのゲノム病(微細欠失・重複症候群)として記述されることになります[4]。
こうした「同じ形で繰り返す」再配列を再発性(recurrent)と呼びます。NAHRは、このような再発性再配列を説明する主要な機構です[4]。実際に、多数の患者さんの不均衡(コピー数変異/CNV)を調べると、LCRに挟まれてNAHRで生じたものは、サイズがおよそ1〜5 Mbの狭い範囲に集中する傾向が知られています。
この「再発性」という性質があるからこそ、複数の患者さんに共通する特徴をひとつの症候群としてまとめて記述でき、臨床の現場で見分ける手がかりになります。逆に、切断点が一人ひとり異なる非再発性の再配列は、症例ごとに範囲や関わる遺伝子を個別に調べる必要があります。NAHRという仕組みを理解しておくことは、「同じ形で繰り返す欠失・重複」と「一例ごとに違う欠失・重複」を区別して考える土台になります。
⚠ 大切な注意
典型的なLCR介在NAHRが説明するのは、主として「再発性」の欠失・重複です。切断点が症例ごとに異なる「非再発性」の再配列では、後で述べる非相同末端結合(NHEJ)や複製ベースの機構などが重要です。ただし、AluやLINEなどLCR以外の相同性の高い反復配列を介するNAHRも知られています。したがって、すべての微細欠失・重複を単純に「NAHRか、それ以外か」の二択で分けられるわけではありません。
5. NAHRが原因となる代表的な疾患
NAHRが原因となる病気は、いずれもLCRに挟まれた領域の再発性の欠失や重複です。代表例を整理すると、次のようになります。欠失と重複が「相反するペア」になっている点にも注目してください。
| 疾患 | 染色体領域 | NAHRの中身(LCR・欠失/重複) |
|---|---|---|
| ウィリアムズ症候群 | 7q11.23 | 共通して約1.55 Mbの欠失(相反する重複あり)。約28遺伝子を含む領域[5] |
| CMT1A/HNPP | 17p12 | 約1.4 MbのPMP22を含む領域。重複=CMT1A、欠失=HNPP(相反ペア)[6] |
| 22q11.2欠失症候群 | 22q11.2 | LCR22間の欠失(相反する22q11.2重複あり)[7] |
| スミス・マジェニス症候群/ポトキ・ルプスキ症候群 | 17p11.2 | SMS-REP間で、欠失=スミス・マジェニス、重複=ポトキ・ルプスキ[8] |
| NF1微小欠失症候群 | 17q11.2 | NF1-REP間の欠失(重症化しやすいNF1) |
CMT1AとHNPP ─ 相反する重複と欠失の教科書的な例
NAHRの「相反するペア」を最もよく示すのが、シャルコー・マリー・トゥース病1A(CMT1A)と遺伝性圧脆弱性ニューロパチー(HNPP)です。染色体17p12にある約1.4 Mbの領域は、24 kbのよく似たLCR(CMT1A-REP)に挟まれています。このCMT1A-REP間でNAHRが起こると、一方では領域が重複してCMT1Aに、もう一方では同じ領域が欠失してHNPPになります[6]。どちらも、領域内にあるPMP22という遺伝子の「量(gene dosage)」が変わることで症状が出ます。具体的には、重複によるPMP22の過剰がCMT1Aを、欠失によるPMP22の不足がHNPPを引き起こします[6]。この重複と欠失は、減数分裂の際にCMT1A-REPを介して起こる組換えの、相反する2つの産物にあたります[6]。研究では、この17p12の再配列の99%以上が、NAHRによる再発性のものと報告されています[9]。
ウィリアムズ症候群と22q11.2欠失 ─ 再発性の微細欠失
ウィリアムズ症候群は、7q11.23の領域を挟むLCR(A・B・Cのブロック)どうしのNAHRによって生じます。多くの患者さん(約95%)で共通した約1.55 Mbの欠失が見られ、約28個の遺伝子を含みます[5]。この領域にはエラスチン遺伝子(ELN)が含まれており、その欠失が、ウィリアムズ症候群に特徴的な大動脈弁上狭窄などの心血管所見に関わります。この領域には、同じLCRを介して生じる相反する7q11.23重複も存在します[7]。同じく再発性の微細欠失として広く知られる22q11.2欠失症候群(ディジョージ/口蓋心臓顔症候群)も、22q11.2を挟むLCR22どうしのNAHRで生じ、相反する22q11.2重複が知られています[7]。さらに17p11.2でも、SMS-REPを介したNAHRが、欠失ならスミス・マジェニス症候群、重複ならポトキ・ルプスキ症候群という、もう一組の相反する疾患ペアを生みます[8]。このように「欠失症候群」と「重複症候群」が表裏一体で現れることは、NAHRという仕組みならではの特徴です。
⚠ よくある取り違え ─ これらはNAHRの例ではありません
ダウン症候群は21番染色体が3本になるトリソミー(染色体の不分離)で、猫鳴き症候群は5番染色体短腕の末端欠失です。いずれもLCRに挟まれた再発性のNAHRとは機構が異なります。「大きな欠失や染色体の変化=すべてNAHR」ではない点に注意してください。NAHRの典型例は、あくまで上の表にあるような「LCRに挟まれ、同じ形で繰り返す」欠失・重複症候群です。
6. 他の構造変異メカニズムとの違い ─ NHEJ・複製ベース
大きなゲノムの再配列を生む仕組みは、NAHRだけではありません。大きく分けて、相同組換えを使うNAHR、切れた末端をつなぎ合わせる非相同末端結合(NHEJ)、そしてDNA複製の異常による複製ベースの機構(FoSTeS/MMBIR)の3つが主なルートです。見分けの鍵は「切断点が一定かどうか」です[4]。
| 機構 | 特徴 | 切断点 |
|---|---|---|
| NAHR | LCRを鋳型に相同組換え。再発性の欠失・重複・逆位 | 共通のLCR内に集中し、類似した再配列として繰り返す |
| NHEJ | 相同性を使わず、切れた末端をつなぐ修復 | 多くは症例ごとに異なる(非再発性) |
| FoSTeS/MMBIR | 複製フォークが鋳型を乗り換えて複雑な再配列を生む | 多くは症例ごとに異なる(複雑・非再発性) |
ゲノム再配列の形成機構は一つではありません。再発性再配列ではNAHRが重要である一方、非再発性再配列ではNHEJなどの末端結合や、FoSTeS/MMBIRなどの複製ベース機構が関与します[1][4]。もう一つの複製ベースの機構であるFoSTeS/MMBIRでは、DNAを複製する装置(フォーク)が途中で止まり、近くにある別のよく似た配列に「乗り換えて」複製を続けてしまうことで、重複や逆位が入り混じった複雑な再配列が生じます[1]。NHEJやFoSTeS/MMBIRの詳しい仕組みは、それぞれの解説ページに譲ります。ここでは「NAHR=再発性・相同ベース」という位置づけを押さえておけば十分です。
7. NAHRが生む変異はどう見つかるか ─ 検出と遺伝診療
NAHRそのものを直接「検査」するわけではありません。検査で見つけるのは、NAHRの結果として生じた欠失や重複などの構造変化です。コピー数変化は、変化の大きさや対象領域に応じて染色体マイクロアレイ(CMA)、MLPA、FISH、シーケンス解析などで検出されます。出生前検査では、NIPTは対象となる染色体・領域についてのスクリーニング検査であり、陽性または疑わしい結果の確定には、対象に応じて絨毛検査や羊水検査などの診断的検査が必要です。詳しくは微小欠失症候群の解説もご覧ください。検査で直接分かるのは変化の位置・範囲・コピー数などであり、その形成機構がNAHRかどうかは、切断点周辺のゲノム構造やLCRとの位置関係、再発性などを踏まえて推定します。
🩺 院長コラム【「家族歴がない」から安心、とは限らない】
NAHRで生じる再発性の微細欠失・重複には、両親には認められず、お子さんで初めて生じる新生(de novo)の変化が少なくありません。そのため、家族歴がないことだけでは、そのようなゲノム再配列の可能性を否定できません。
遺伝カウンセリングでは、検査で何が分かるのか、何が分からないのか、結果が本人や家族にどのような意味を持つのかを、医学的根拠に基づいて整理することが重要です。家族歴だけでなく、臨床所見、検査の目的、検査法の限界を含めて総合的に考えます。
🏥 遺伝子検査について確認したい方へ
ミネルバクリニックで実施している遺伝子検査の種類や対象については、遺伝子検査の案内ページをご確認ください。検査ごとに対象となる疾患・遺伝子・検出できる変化や限界が異なるため、各検査の案内内容をご確認のうえご検討ください。
8. まとめ
非対立遺伝子相同組換え(NAHR)は、ゲノム上のよく似た配列(LCR)どうしが誤って組換わり、欠失・重複・逆位を生み出す仕組みです。結果はLCRの向きで決まり、同じ向きなら欠失と重複、逆向きなら逆位が生じます。LCRはゲノム内で位置が決まっているため、NAHRは同じ場所で繰り返し起こり、多くの人が同一の欠失・重複を示す「再発性ゲノム疾患」の主な原因になります。CMT1A/HNPP、ウィリアムズ症候群、22q11.2欠失症候群、スミス・マジェニス/ポトキ・ルプスキ症候群は、その代表例です。
一方で、典型的なLCR介在NAHRは再発性再配列の主要な機構ですが、NAHRにはAluやLINEなどを介した非典型例もあります。切断点が症例ごとに異なる非再発性再配列では、NHEJなどの末端結合や複製ベースの機構が重要です。また、NAHRで生じる変化の多くは新生(de novo)に起こるため、家族歴の有無だけで判断できない点も、この仕組みが教えてくれる大切な視点です。「同じ仕組みが、ある人にとっては疾患の原因になり、種にとっては多様性の源にもなる」——NAHRは、ゲノムの成り立ちと病気のつながりを考えるうえで、欠かせない概念だといえます。
よくある質問(FAQ)
Q1. 非対立遺伝子相同組換え(NAHR)とは何ですか?
NAHR(Non-Allelic Homologous Recombination)とは、ゲノム上に散らばるよく似た配列(低コピーリピート/LCR)どうしが、本来の相手ではない「非対立」の場所で誤って組換わってしまう相同組換えのことです。その結果、間の領域が失われる欠失や、増える重複、向きが反転する逆位が生じます。相同組換えの一種ですが、正しい対立位置ではなく、別の場所にあるよく似た配列を相手にしてしまう点が特徴です。
Q2. 相同組換え(HR)とNAHRは何が違うのですか?
正常な相同組換えは、父由来・母由来の染色体で同じ位置にある「正しいパートナー(対立位置)」どうしで起こり、情報の増減は生じません。これに対しNAHRは、ゲノム上の別の場所にあるよく似た配列(非対立の相手)を取り違えて組換わります。この取り違えにより、間の領域の欠失や重複、逆位が生じるのが、正常な相同組換えとの決定的な違いです。
Q3. NAHRではなぜ欠失・重複・逆位が起こるのですか?
結果は、組換わるLCRの「向き」で決まります。同じ向き(順方向反復)に並んだLCR間でNAHRが起こると、間の領域が失われる欠失と、増える重複が「相反する産物」として生じます。逆向き(逆方向反復)のLCR間なら、間の領域の向きが反転する逆位になります。さらに、別々の染色体上のLCR間で起これば転座が生じます。
Q4. NAHRが原因となる病気にはどんなものがありますか?
LCRに挟まれた領域の再発性の欠失・重複症候群が代表例です。シャルコー・マリー・トゥース病1A(CMT1A、重複)と遺伝性圧脆弱性ニューロパチー(HNPP、欠失)、ウィリアムズ症候群(7q11.23欠失)、22q11.2欠失症候群、スミス・マジェニス症候群(欠失)とポトキ・ルプスキ症候群(重複)、NF1微小欠失症候群などが知られています。なお、ダウン症候群(トリソミー)や猫鳴き症候群(末端欠失)は機構が異なり、NAHRの例ではありません。
Q5. NAHRとNHEJ(非相同末端結合)の違いは?
NAHRは、よく似た配列(LCR)を鋳型にして起こる相同組換えで、同じ場所で繰り返す「再発性」の欠失・重複・逆位を生みます。一方、NHEJは相同性を使わず、切れたDNAの末端どうしをつなぎ合わせる修復で、切断点が一人ひとり異なる「非再発性」の再配列につながります。共通のLCR内に切断点が集中する再発性再配列ではNAHRが示唆されますが、形成機構の推定には切断点配列や周辺のゲノム構造を含む解析が必要です。
参考文献
- [1] Mechanisms for human genomic rearrangements. PathoGenetics. 2008. [PubMed 19014668]
- [2] Molecular mechanisms for genomic disorders. Annu Rev Genomics Hum Genet. 2002;3:199-242. [Annual Reviews]
- [3] Inverted low-copy repeats and genome instability—a genome-wide analysis. [PMC3738003]
- [4] Genomic disorders: molecular mechanisms for rearrangements and conveyed phenotypes. PLoS Genet. 2005;1(6):e49. [PLOS Genetics]
- [5] Mutational mechanisms of Williams-Beuren syndrome deletions. [PubMed 12796854]
- [6] The 1.4-Mb CMT1A duplication/HNPP deletion genomic region reveals unique genome architectural features. Genome Res. [Genome Research]
- [7] Speech delay and autism spectrum behaviors are frequently associated with duplication of the 7q11.23 Williams-Beuren syndrome region. Genet Med. 2007. [Genetics in Medicine]
- [8] Genetic proof of unequal meiotic crossovers in reciprocal deletion and duplication of 17p11.2. [PMC420000]
- [9] Mechanisms for nonrecurrent genomic rearrangements associated with CMT1A or HNPP: rare CNVs as a cause for missing heritability. [PubMed 20493460]
- [10] Ramesh KH, Verma RS. Breakpoints in alpha, beta, and satellite III DNA sequences of chromosome 9 result in a variety of pericentric inversions. J Med Genet. 1996;33(5):395-398. doi:10.1136/jmg.33.5.395. [PubMed 8733050]






