

目次
📍 クイックナビゲーション
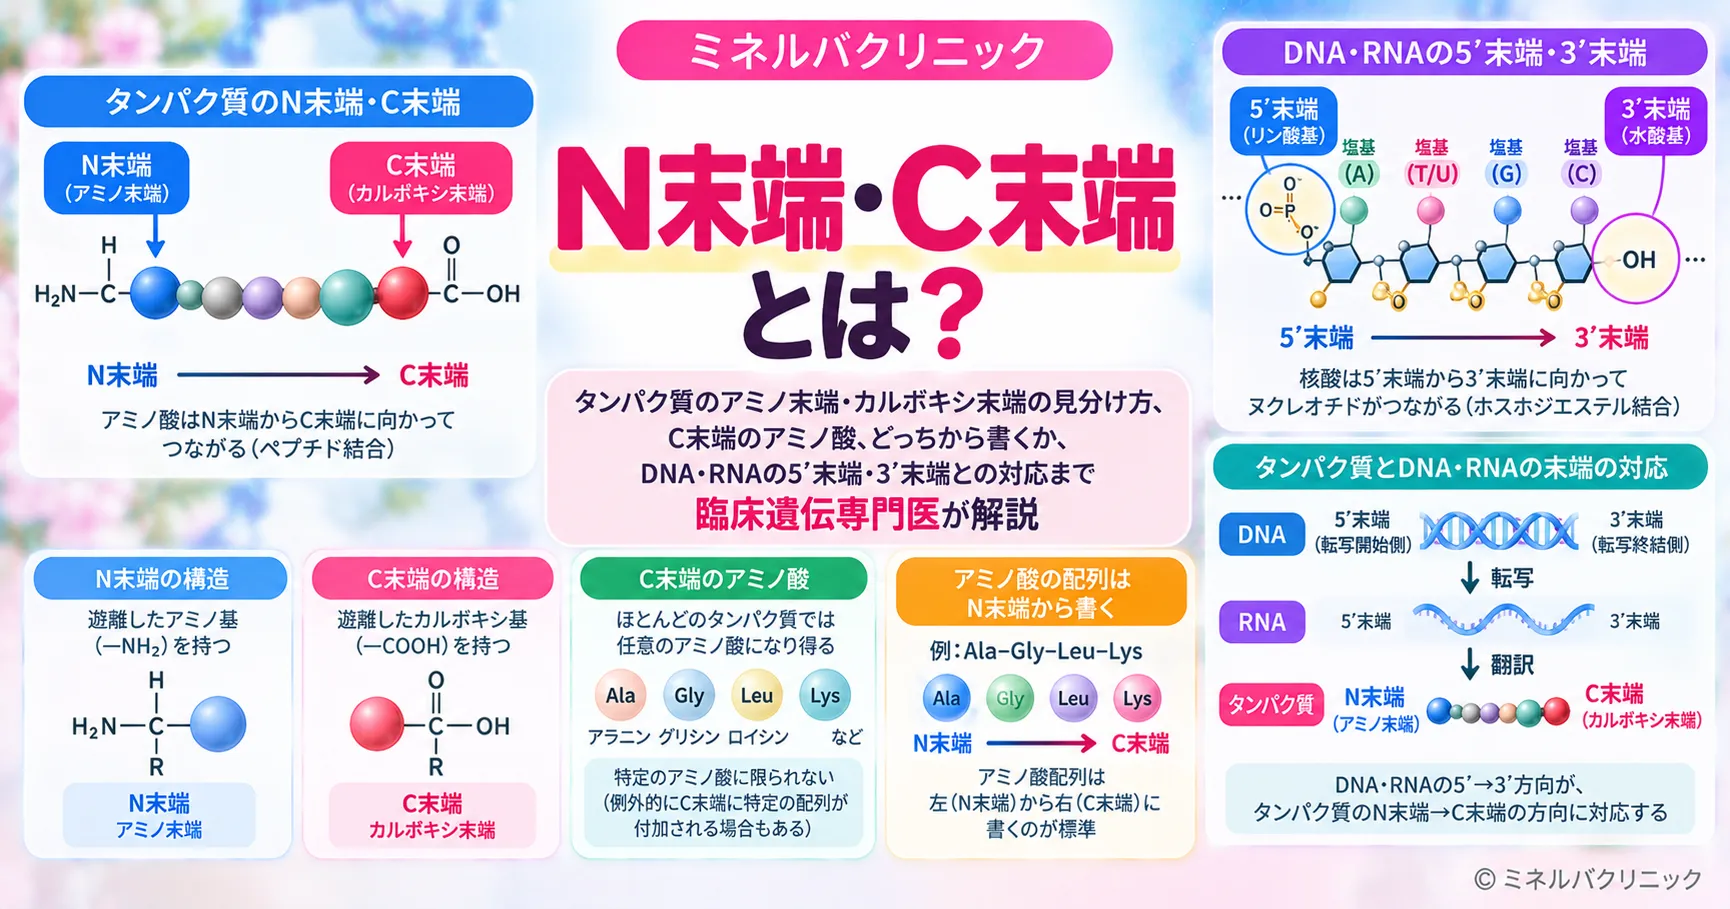
N末端・C末端とは、タンパク質やペプチドをつくるアミノ酸の鎖の両端のことで、アミノ基(–NH2)が残っている端をN末端(アミノ末端)、カルボキシ基(–COOH)が残っている端をC末端(カルボキシ末端・カルボキシル末端)と呼びます。タンパク質はN末端から作られてC末端で終わり、アミノ酸の並びもN末端から書くのが決まりです。この記事では、N末端・C末端の見分け方、C末端のアミノ酸、DNA・RNAの5’末端・3’末端との対応、両端の働き、そして遺伝子の変化でC末端側が欠けたタンパク質ができる仕組みまでを解説します。
⏱️ 30秒でわかる要約
🧬 Q. N末端・C末端とは?
タンパク質(ペプチド鎖)の両端のことです。アミノ基(–NH2)が残る端がN末端(アミノ末端)、カルボキシ基(–COOH)が残る端がC末端(カルボキシ末端)です。
🧬 Q. どっちが先?見分け方は?
N末端が先です。タンパク質はN末端からC末端に向かって作られ、配列もN末端から書くので、文字で書かれた配列は左端がN末端、右端がC末端です。
🧬 Q. DNA・RNAの5’末端・3’末端とはどう対応する?
mRNAは5’→3’の向きに読まれ、タンパク質はN→Cの向きに作られます。mRNAの5’側がN末端側、3’側がC末端側に対応します。
🧬 Q. 遺伝子の変化とどう関係する?
ナンセンス変異などで途中に終止コドンができると、C末端側が作られなくなります。変化の位置によってはmRNAが壊されずに、C末端が欠けたタンパク質が病気の原因になることがあります。
- ➤N末端・C末端 → アミノ基が残る端とカルボキシ基が残る端
- ➤見分け方・書き方 → 配列はN末端から書くので、左端がN末端・右端がC末端
- ➤5’末端・3’末端との対応 → mRNAの5’側がN末端側、3’側がC末端側
- ➤両端の働き → シグナル配列・修飾・分解の目印(N-デグロン・C-デグロン)
- ➤遺伝との関係 → ナンセンス変異とC末端が欠けたタンパク質、MN1 C末端切断症候群
1. N末端・C末端とは?タンパク質の鎖の「始まり」と「終わり」
N末端・C末端とは、アミノ酸がつながってできたペプチド鎖の両端のことで、アミノ基が残っている端がN末端、カルボキシ基が残っている端がC末端です。タンパク質は、アミノ酸が鎖のようにつながってできています。この鎖には「向き」があり、片方の端にはα-アミノ基、もう片方の端にはα-カルボキシ基が残ります。生化学の教科書では、このことを「ポリペプチド鎖は両端が異なるので極性(向き)をもつ」と説明しています[1]。
なぜ両端の形が違うのか:ペプチド結合のでき方
アミノ酸どうしは、一方のカルボキシ基ともう一方のアミノ基が水1分子を失ってつながる(ペプチド結合)ため、鎖の両端にだけ、つながっていないアミノ基とカルボキシ基が残ります。ペプチド結合はアミド結合とも呼ばれ、2つのアミノ酸がつながるときには水分子が1つ失われます[1]。
1個目のアミノ酸のカルボキシ基は2個目のアミノ酸のアミノ基と結合し、2個目のカルボキシ基は3個目のアミノ基と結合し……と続いていきます。こうして鎖の内側のアミノ基とカルボキシ基はすべて結合に使われ、最初のアミノ酸のアミノ基と、最後のアミノ酸のカルボキシ基だけが自由な状態で残ります。前者がある端がN末端、後者がある端がC末端です。鎖に組み込まれた1つ1つのアミノ酸は「残基(residue)」と呼ばれます[1]。数個つながったものをペプチド、長くつながったものをポリペプチドと呼びますが、どちらにもN末端とC末端があります。
呼び方の違い:アミノ末端・カルボキシ末端・カルボキシル末端
N末端は「アミノ末端(amino-terminal)」、C末端は「カルボキシ末端(carboxyl-terminal)」の言い換えで、意味は同じです。英語の教科書でも amino-terminal(N-terminal)、carboxyl-terminal(C-terminal)と併記されています[1]。日本語では「カルボキシル末端」「COOH末端」と書かれることもあります。C末端の「カルボキシ基」についてはカルボキシル基のページでも解説しています。
📘 N末端とC末端の呼び方と特徴
| 項目 | N末端 | C末端 |
|---|---|---|
| 別の呼び方 | アミノ末端、NH2末端 | カルボキシ末端、カルボキシル末端、COOH末端 |
| 英語 | N-terminus/amino terminus(形容詞は N-terminal) | C-terminus/carboxyl terminus(形容詞は C-terminal) |
| 端に残る基 | α-アミノ基(–NH2) | α-カルボキシ基(–COOH) |
| 作られる順番 | 最初に作られる側 | 最後に作られる側 |
| 配列を書くとき | 左端(書き始め) | 右端(書き終わり) |
| 対応するmRNAの側 | 5’側 | 3’側 |
※端に残る基・書き方は Berg ほか[1]、作られる順番は Alberts ほか[2]・OpenStax[3]による。
2. N末端・C末端の見分け方と、どっちから書くか
N末端とC末端は、鎖の端に自由なアミノ基があるか(N末端)、自由なカルボキシ基があるか(C末端)で見分けます。構造式で見るときは、端の窒素(N)を含むアミノ基と、端の炭素(C)を含むカルボキシ基を探すとわかりやすくなります[1][4]。
配列はN末端から書く決まり:左端がN末端、右端がC末端
アミノ酸配列は、N末端のアミノ酸から書き始めるのが決まりです。教科書には「慣例として、アミノ基の側をポリペプチド鎖の始まりとし、アミノ酸配列はN末端の残基から書く」とあります[1]。そのため、Met-Ala-Ser-…-Gly のように文字で書かれた配列なら、左端の Met がN末端、右端の Gly がC末端のアミノ酸です。
「N末端とC末端はどっち?」と迷ったときは、配列の書き方=作られる順番=N末端からと覚えておくと整理しやすくなります。論文やデータベースでアミノ酸の位置を「何番目」と数えるときも、N末端側から数えます。
C末端のアミノ酸とは
C末端のアミノ酸とは、ペプチド鎖のいちばん最後にあり、カルボキシ基がほかのアミノ酸と結合せずに残っているアミノ酸のことです。配列を書いたときの右端のアミノ酸にあたり、「C末端残基」とも呼ばれます。同じように、左端のアミノ酸は「N末端残基」です[1]。
C末端のアミノ酸は、どのアミノ酸でもなりえます。何がC末端に来るかは、そのタンパク質の遺伝子の暗号で決まり、終止コドン(ストップコドン)の直前のコドンが指定するアミノ酸がC末端のアミノ酸になります[2]。ただし、タンパク質はできあがったあとで端が切られたり、化学的に変えられたりすることがあるので(第4章・第5章)、細胞の中で働いている形のC末端が、遺伝子から読み取れるC末端と同じとは限りません[4]。
3. 翻訳はN末端から始まりC末端で終わる:DNA・RNAの5’末端・3’末端との対応
リボソームはmRNAを5’から3’の向きに読み、タンパク質をN末端からC末端の向きに作ります。OpenStax の教科書は、リボソームが「mRNAを5’から3’へ読み、ポリペプチドをN末端からC末端へ合成する」と説明しています[3]。伸びていく鎖には、C末端の側にアミノ酸が1個ずつ足されていきます[2]。
開始コドンがN末端を、終止コドンがC末端を決める
翻訳は開始コドン(AUG)から始まるため、作られたばかりのタンパク質のN末端のアミノ酸はメチオニンです。このメチオニンは、次に続くアミノ酸の種類などによって、翻訳中または翻訳後に取り除かれることがあります[2][3][4]。翻訳の終わりは3種類の終止コドン(UAA、UAG、UGA)で示され、終止コドンに来ると、できあがった鎖がリボソームから離れます[2]。この最後に付いたアミノ酸のカルボキシ基が、C末端になります[3]。コドンのしくみはコドン、翻訳の場となるリボソームもあわせてご覧ください。
5’末端・3’末端とN末端・C末端の対応表
mRNAの5’側の暗号はN末端側のアミノ酸に、3’側の暗号はC末端側のアミノ酸に対応します。「5’→3’」と「N→C」は、同じ向きの流れを核酸とタンパク質のそれぞれの言葉で表したものです。ただし、指している端の正体は違います。5’末端・3’末端は核酸(DNA・RNA)の糖の炭素の番号に由来する言葉で、N末端・C末端はタンパク質の端に残る化学基に由来する言葉です。核酸の向きについては5’末端・3’末端のページで詳しく解説しています。
🔄 核酸の5’末端・3’末端とタンパク質のN末端・C末端
| 項目 | 核酸(DNA・RNA) | タンパク質(ペプチド鎖) |
|---|---|---|
| 端の呼び方 | 5’末端と3’末端 | N末端とC末端 |
| 名前の由来 | 糖の炭素の位置番号(5’・3’) | 端に残る基(アミノ基のN、カルボキシ基のC) |
| つくる・読む向き | mRNAは5’→3’に読まれる | N末端→C末端の順に作られる |
| 書くときの決まり | 5’側から書く | N末端側から書く |
| 対応 | mRNAの5’側(開始コドン側) | N末端側 |
| 対応 | mRNAの3’側(終止コドン側) | C末端側 |
この対応は、遺伝子の変化を考えるときに役立ちます。遺伝子の後ろ(3’)寄りの変化はタンパク質のC末端寄りに、前(5’)寄りの変化はN末端寄りに影響する、という見当がつけられるからです。この考え方は第6章で使います。
4. N末端の働き:行き先の目印・修飾・分解の目印
N末端は、タンパク質がリボソームから最初に出てくる部分で、行き先を決める目印(シグナル配列)や、化学的な修飾、分解されやすさを決める目印として働くことがあります。タンパク質の両端には反応しやすいアミノ基とカルボキシ基があり、細胞はそこを手がかりにさまざまな修飾を加えます[4]。
シグナル配列(シグナルペプチド):N末端にある「行き先の目印」
シグナル配列とは、タンパク質を細胞内の特定の場所や分泌経路へ導く目印となるアミノ酸配列です。分泌タンパク質などでは、N末端にシグナルペプチドが存在することがあります。典型的な小胞体移行シグナルペプチドは、リボソームから現れるとシグナル認識粒子(SRP)に認識され、小胞体への輸送に関与します[3]。ただし、シグナル配列にはタンパク質の内部に存在するものもあり、すべてがSRPによって認識されるわけではありません。
N末端の修飾:開始メチオニンの除去・アセチル化・ミリストイル化
N末端では、開始のメチオニンが取り除かれたあと、アセチル化やミリストイル化などの修飾が起こることがあります。開始メチオニンはメチオニンアミノペプチダーゼという酵素で取り除かれ、その次のアミノ酸が新しいN末端になります[4]。
N末端のアセチル化は、真核生物でもっとも多い修飾の一つです。総説によると、ヒトのタンパク質の80〜90%がN末端でアセチル化されています[4]。N-ミリストイル化は、N末端のグリシンにミリスチン酸(脂肪酸の一種)が付く修飾で、タンパク質を細胞内の膜へ向かわせる働きがあります[4]。こうした修飾全体については翻訳後修飾のページで解説しています。
N末端則(N-デグロン):N末端が分解されやすさを決める
N末端のアミノ酸は、そのタンパク質がどれくらい早く分解されるかを決める目印(N-デグロン)になることがあります。N-デグロンは1986年に見つかった、寿命の短いタンパク質の最初の分解シグナルで、かつて「N末端則(N-end rule)」と呼ばれていた経路は、現在は「N-デグロン経路」と呼ぶことが提案されています[5]。分解のしくみはユビキチン‐プロテアソーム系のページで詳しく扱っています。
5. C末端の働き:膜につなぐ修飾・アミド化・C-デグロン
C末端は、最後に作られる部分で、膜につなぎとめるための脂質の付加や、ペプチドホルモンのアミド化、分解の目印(C-デグロン)などに関わります。[4][5]
🧷 N末端・C末端に起こる主な修飾と目印
| 名前 | 起こる端 | 何が起こるか |
|---|---|---|
| 開始メチオニンの除去 | N末端 | メチオニンアミノペプチダーゼが最初のメチオニンを取り除く |
| N末端アセチル化 | N末端 | アセチル基が付く。ヒトのタンパク質の80〜90% |
| N-ミリストイル化 | N末端 | N末端のグリシンにミリスチン酸が付き、膜へ向かう |
| プレニル化 | C末端の近く | C末端近くのシステインにイソプレン単位が付く(CaaXモチーフ) |
| GPIアンカー | C末端 | GPIがC末端に付き、細胞表面につなぎとめる |
| C末端アミド化 | C末端 | PAMという酵素でC末端がアミドになる。生理活性ペプチドの半分以上 |
| N-デグロン・C-デグロン | N末端・C末端 | 端のアミノ酸が分解の目印になる |
膜につなぐ:プレニル化とGPIアンカー
C末端の近くでは、脂質を付けてタンパク質を膜につなぎとめる修飾が起こります。プレニル化は、C末端に近いシステインにイソプレン単位が付く修飾で、CaaXと呼ばれる配列のシステインに付いたあと、後ろの3つ(aaX)は切り落とされます。GPIアンカーは、GPIという糖脂質がタンパク質のC末端に結合し、タンパク質を細胞表面につなぎとめるものです[4]。
C末端アミド化:ペプチドホルモンの形を整える
C末端アミド化とは、ペプチドのC末端がアミド基(–CONH2)を持つようになる修飾で、多くの生理活性ペプチドに見られます。代表的なしくみでは、C末端にグリシンを持つ前駆体にペプチジルグリシンα-アミド化モノオキシゲナーゼ(PAM)が作用し、グリシンが除去される過程で、その直前のアミノ酸残基がC末端アミドになります。これによりC末端の電荷やペプチドの活性が変化します[4]。
C-デグロン:C末端も分解の目印になる
N末端と同じように、C末端のアミノ酸も分解の目印(C-デグロン)になります。総説では、N-デグロン経路とC-デグロン経路を、どちらも端のアミノ酸で決まる分解シグナルとして整理しています[5]。途中で翻訳が止まってできた短いタンパク質のC末端が、こうした分解の目印になる場合もあると考えられていますが、全体のしくみはまだすべて明らかにはなっていません[4]。
6. 遺伝・医療とのつながり:C末端が欠けたタンパク質と病気
遺伝子の変化で途中に終止コドンができると、そこから先のC末端側が作られなくなります。そのmRNAが壊されるか、短いタンパク質が作られるかは、変化の位置で変わります。N末端・C末端の考え方は、遺伝子検査の結果を読むときにも出てきます。
ナンセンス変異とC末端の欠けたタンパク質
ナンセンス変異やフレームシフト変異で未成熟終止コドン(PTC)ができると、翻訳はそこで止まり、C末端側が欠けた短いタンパク質のもとになります。細胞には、このような途中に終止コドンをもつmRNAを見つけて壊すしくみ、ナンセンス変異依存mRNA分解(NMD)があります[6]。NMDが働けば短いタンパク質はほとんど作られませんが、NMDを逃れた場合は、C末端の欠けた異常なタンパク質が作られます。こうしたタンパク質は、正常なタンパク質の働きを邪魔したり(ドミナントネガティブ)、本来にない働きをもったり(機能獲得)して、細胞に害をおよぼすことがあります[6]。
最後のエクソンの変化はNMDを逃れやすい
終止コドンが最後のエクソンにある場合や、最後から2番目のエクソンの終わりから約55塩基以内にある場合は、NMDに見つけられにくく、短いタンパク質が多く作られることがあります。これは「55塩基の境界のルール」と呼ばれていますが、例外のある遺伝子も知られています[7]。つまり、同じ「ナンセンス変異」でも、遺伝子の前のほうにあればタンパク質がほとんど作られない(働きがなくなる)方向に、最後のエクソンにあればC末端の欠けたタンパク質が作られる方向に結果が分かれます。詳しくはNMDエスケープと最終エクソン則で解説しています。
🧬 終止コドンの位置とタンパク質への影響
| 終止コドンの位置 | mRNAの運命 | タンパク質への影響 |
|---|---|---|
| 最後から2番目のエクソンの終わりより約55塩基以上手前 | NMDで分解されやすい | 作られる量が減る(働きが失われる方向) |
| 最後のエクソン(または上の境界より後ろ) | NMDを逃れやすい | C末端の欠けたタンパク質ができうる |
※境界のルールと例外は Khajavi と Lupski[7]、NMDを逃れたタンパク質の影響は Khajavi ほか[6]による。実際の影響は遺伝子ごとに異なる。
例:MN1 C末端切断症候群
C末端の欠けたタンパク質が病気の原因になる例として、MN1 C末端切断症候群があります。2020年に23人の報告をまとめた研究では、MN1遺伝子の短縮型の変化が、最後のエクソン、または1番目のエクソンのいちばん3’寄りの部分に集まっていました。これらはNMDを逃れると予測され、3人の線維芽細胞で実際に確かめられています[8]。
この研究では、MN1 C末端切断症候群の発症機序は単純なハプロ不全では説明できず、C末端が欠けたMN1タンパク質が病態に関与する可能性が示されています。疾患は常染色体顕性遺伝の形式をとりますが[11]、異常タンパク質がどのような分子機序で作用するかについては、引き続き検討が必要です。症状としては、表出言語(話すこと)の遅れが強い知的障害や、特に顔の中央部の低形成などの顔立ちの特徴が挙げられ、脳MRIを調べた10人中8人に菱脳融合(rhombencephalosynapsis)が見られました[8]。病名そのものに「C末端」が入っているのは、こうした仕組みのためです。
💡 用語解説:NT-proBNP の「NT」
医療の検査名にも「N末端」は出てきます。心臓の検査で使われるNT-proBNPは「N-terminal pro-B-type natriuretic peptide」の略で、日本語ではN末端プロ脳性ナトリウム利尿ペプチドと呼ばれます。BNPの前駆体であるproBNPが切断されると、活性を持つBNPと、N末端側の断片であるNT-proBNPが生じます[9][10]。「NT」はN末端(N-terminal)を指しています。

🩺 院長コラム【「どこで切れるか」を見る】
遺伝子検査の報告書で「ナンセンス変異」「フレームシフト変異」という言葉を見ると、タンパク質が作られなくなる変化だと受け取られがちです。けれども、この記事で見てきたように、終止コドンがどこにできるかによって、mRNAが壊される場合もあれば、C末端の欠けたタンパク質が作られる場合もあります。
N末端・C末端という言葉は教科書の最初のほうに出てくる基本ですが、変化がタンパク質のどちらの端に近いのかを考えることは、結果の意味を考えるうえで大事な視点の一つだと考えています。
遺伝子の変化がタンパク質のどこに影響するかという見方は、生まれる前のお子さんの遺伝子や染色体を調べる検査の結果を理解するときにも役立ちます。当院の妊娠中の検査についてはNIPT(新型出生前診断)のページをご覧ください。
よくある質問(FAQ)
Q1. N末端とC末端は、どっちが先ですか?
N末端が先です。タンパク質はN末端の側から作られ、C末端の側にアミノ酸が1個ずつ足されていきます。アミノ酸の並び(配列)も、N末端のアミノ酸から書く決まりになっています。
Q2. N末端とC末端はどうやって見分けますか?
鎖の端に、ほかのアミノ酸とつながっていないアミノ基(–NH2)が残っているほうがN末端、つながっていないカルボキシ基(–COOH)が残っているほうがC末端です。配列が文字で書かれているときは、決まりにより左端がN末端、右端がC末端です。
Q3. C末端のアミノ酸とは何ですか?
ペプチド鎖のいちばん最後にあり、カルボキシ基がほかのアミノ酸と結合せずに残っているアミノ酸のことです。配列を書いたときの右端のアミノ酸にあたり、「C末端残基」とも呼ばれます。
Q4. アミノ末端・カルボキシ末端(カルボキシル末端)は、N末端・C末端と同じ意味ですか?
同じ意味です。N末端はアミノ末端(amino-terminal)、C末端はカルボキシ末端(carboxyl-terminal)の言い換えで、カルボキシル末端・COOH末端と書かれることもあります。
Q5. N末端・C末端は、DNAやRNAの5’末端・3’末端とどう対応しますか?
mRNAは5’から3’の向きに読まれ、タンパク質はN末端からC末端の向きに作られます。そのため、mRNAの5’側の暗号がN末端側のアミノ酸に、3’側の暗号がC末端側のアミノ酸に対応します。ただし、5’末端・3’末端は核酸の鎖の端、N末端・C末端はタンパク質の鎖の端を指す言葉で、端にある化学構造は違います。
Q6. 血液検査のNT-proBNPの「NT」はN末端のことですか?
はい。NT-proBNPは「N-terminal pro b-type natriuretic peptide」の略で、日本語ではN末端プロ脳性ナトリウム利尿ペプチドと呼ばれます。BNPというホルモンを作るもとになるタンパク質の一部分です。
Q7. ナンセンス変異があると、タンパク質のC末端はどうなりますか?
途中に終止コドンができるため、そこから先のC末端側が作られなくなります。多くの場合、そのmRNAはナンセンス変異依存mRNA分解(NMD)で壊されますが、最後のエクソンにある変化などではNMDを逃れ、C末端側が欠けたタンパク質ができることがあります。
まとめ
N末端・C末端は、タンパク質(ペプチド鎖)の両端のことで、アミノ基が残る端がN末端(アミノ末端)、カルボキシ基が残る端がC末端(カルボキシ末端)です[1]。タンパク質はN末端から作られてC末端で終わり、配列もN末端から書くので、左端がN末端、右端がC末端になります。mRNAの5’側はN末端側、3’側はC末端側に対応します[1][2][3]。
両端は、行き先の目印、膜につなぐ修飾、分解の目印などに使われます[3][4][5]。遺伝子の変化で途中に終止コドンができると、変化の位置によってはC末端の欠けたタンパク質ができ、MN1 C末端切断症候群のように病気の原因になることがあります[6][7][8]。
📘 この記事について
この記事は、タンパク質のN末端・C末端の意味を解説する用語ページです。個別の遺伝子検査の結果の解釈を行うものではありません。遺伝子の変化がご自身やご家族にとってどういう意味をもつかを専門医と整理する場として、遺伝カウンセリングがあります。結果の説明は、臨床遺伝専門医などから受けることが基本です。
参考文献
- [1] Berg JM, Tymoczko JL, Stryer L. Biochemistry. 5th edition. Section 3.2, Primary Structure: Amino Acids Are Linked by Peptide Bonds to Form Polypeptide Chains. New York: W H Freeman; 2002. [NCBI Bookshelf]
- [2] Alberts B, Johnson A, Lewis J, et al. Molecular Biology of the Cell. 4th edition. From RNA to Protein. New York: Garland Science; 2002. [NCBI Bookshelf]
- [3] Clark MA, Douglas M, Choi J. Biology 2e. 15.5 Ribosomes and Protein Synthesis. OpenStax; 2018. [OpenStax]
- [4] Chen L, Kashina A. Post-translational Modifications of the Protein Termini. Front Cell Dev Biol. 2021;9:719590. [doi:10.3389/fcell.2021.719590]
- [5] Varshavsky A. N-degron and C-degron pathways of protein degradation. Proc Natl Acad Sci U S A. 2019;116(2):358-366. [doi:10.1073/pnas.1816596116]
- [6] Khajavi M, Inoue K, Lupski JR. Nonsense-mediated mRNA decay modulates clinical outcome of genetic disease. Eur J Hum Genet. 2006;14(10):1074-1081. [doi:10.1038/sj.ejhg.5201649]
- [7] Khajavi M, Lupski JR. Reply to Ináció et al. Eur J Hum Genet. 2007;15:534. [doi:10.1038/sj.ejhg.5201805]
- [8] Mak CCY, Doherty D, Lin AE, et al. MN1 C-terminal truncation syndrome is a novel neurodevelopmental and craniofacial disorder with partial rhombencephalosynapsis. Brain. 2020;143(1):55-68. [PubMed 31834374]
- [9] Natriuretic Peptide Tests (BNP, NT-proBNP). MedlinePlus Medical Test. National Library of Medicine. [MedlinePlus]
- [10] 澤谷倫史. 論文内容の要旨:急性心不全患者におけるNT-proBNP/BNP比の臨床的意義(原著:Eur Heart J Acute Cardiovasc Care. 2021;10(9):1016-1026). 日本医科大学. [日本医科大学]
- [11] MN1 C-terminal truncation syndrome. MedlinePlus Genetics. National Library of Medicine. [MedlinePlus Genetics]






