

目次
📍 クイックナビゲーション
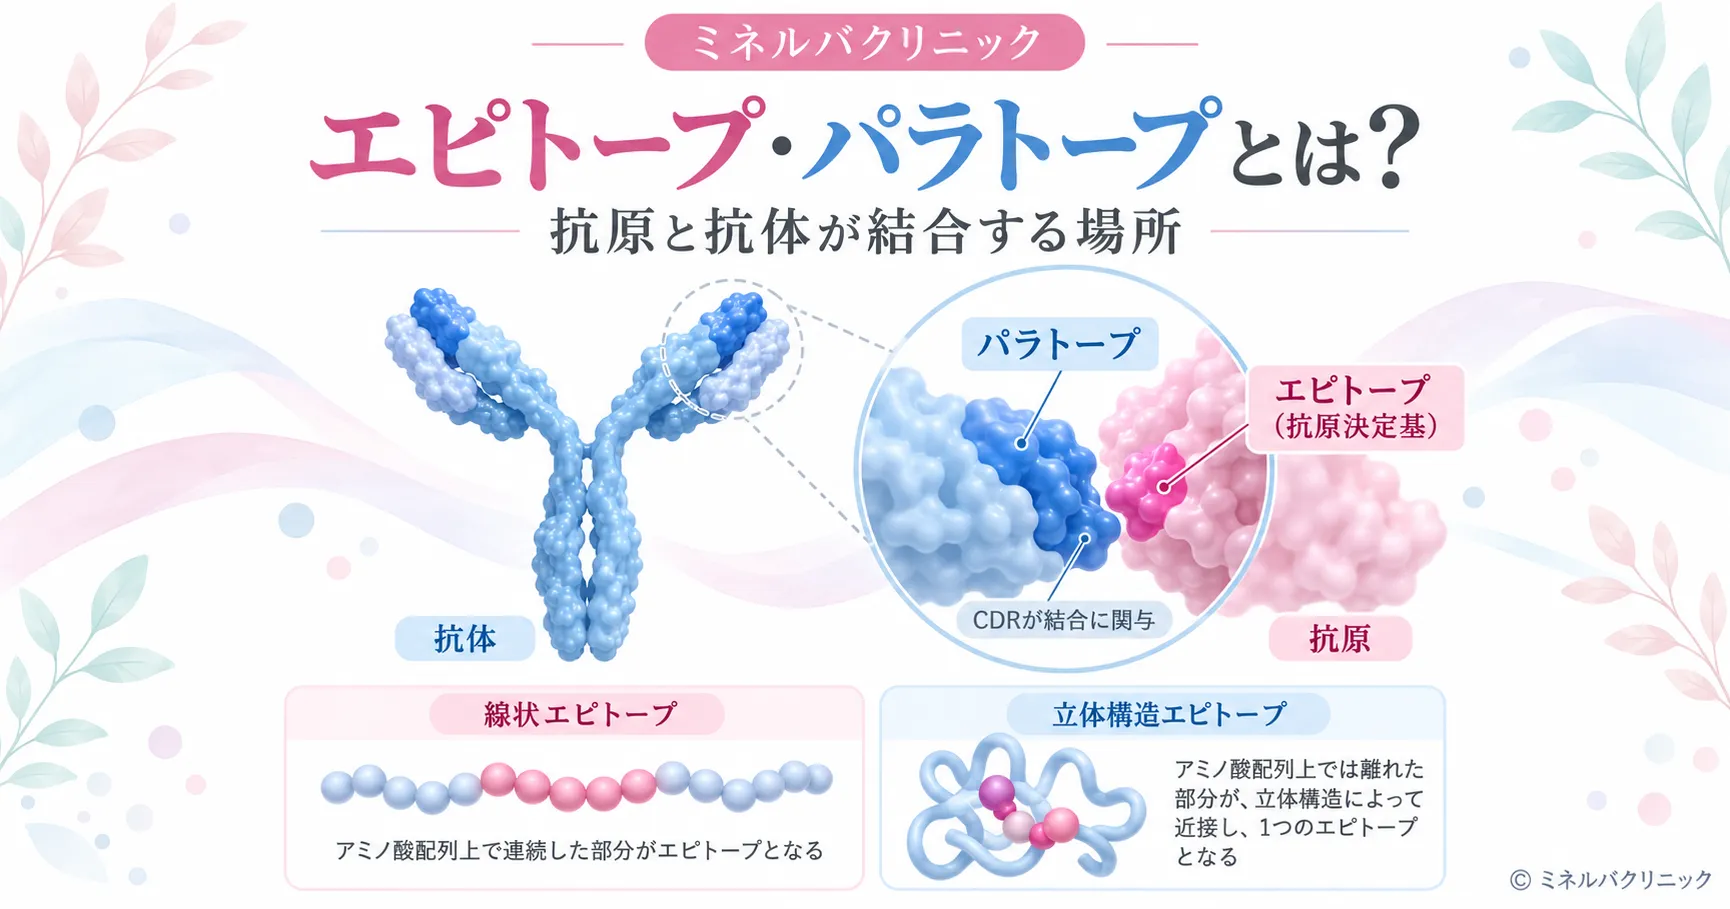
エピトープ(抗原決定基)とは、抗原のうち抗体やT細胞受容体が実際に結合する「ごく一部の場所」のことです。パラトープとは、その相手側、つまり抗体のうち抗原に結合する部分(抗原結合部位)を指します。つまり同じ一つの結合を、抗原の側から呼んだのがエピトープ、抗体の側から呼んだのがパラトープです。「エピトープとパラトープが同じアミノ酸配列」という説明は誤りで、両者は配列が同じではなく、形と性質が噛み合う関係にあります。この記事では、エピトープとパラトープの違い、線状エピトープと立体構造エピトープ、パラトープをつくる6本のCDR(相補性決定領域)、そしてB細胞エピトープとT細胞エピトープの違いまで、一次情報の出典をつけて解説します。
⏱️ 30秒でわかる要約
🧬 Q. エピトープとパラトープとは何ですか?
エピトープは抗原の側の結合する部分(抗原決定基)、パラトープは抗体の側の結合する部分(抗原結合部位)です。抗体は大きな分子の表面のごく狭い領域だけを認識します。
🧬 Q. エピトープとパラトープの違いは何ですか?
見ている向きが違います。同じ1か所の結合を、抗原から見ればエピトープ、抗体から見ればパラトープと呼びます。配列が同じわけではなく、立体的に噛み合う関係です。
🧬 Q. エピトープはどのくらいの大きさですか?
立体構造を解いた解析では、約75%のエピトープが15〜25残基・表面積600〜1000Ųとまとめられています。ただし結合に実際に効いている中心部分は3〜5残基ほどです[3]。
🧬 Q. 遺伝や医療とどう関係しますか?
T細胞が見るエピトープはHLA(MHC)に載ったペプチドなので、HLAの型が違うと提示されるペプチドが変わります。これが薬による重い皮膚障害の起こりやすさの違いにも関わります[5]。
- ➤エピトープ → 抗原側の結合部位。日本語では抗原決定基
- ➤パラトープ → 抗体側の結合部位。重鎖と軽鎖の6本のCDRがつくる面
- ➤種類 → 連続(線状)エピトープと不連続(立体構造)エピトープ
- ➤B細胞とT細胞 → 立体構造のまま見るか、MHCに載ったペプチドとして見るか
- ➤遺伝とのつながり → HLAの型・抗体をつくる遺伝子・抗体医薬の設計
1. エピトープ・パラトープとは?抗原決定基との関係
エピトープとは、抗原の表面にあって抗体やT細胞受容体が実際に結合する限られた領域のことです。パラトープとは、その抗原を結合する抗体側の部位、すなわち抗原結合部位のことです。免疫学の教科書では、抗体が認識するこの構造を「抗原決定基(antigenic determinant)またはエピトープ」と呼ぶと説明されています[1]。つまり「抗原決定基」と「エピトープ」は別の概念ではなく、同じものの日本語名と英語名です。
ここで最初に押さえておきたいのは、抗体は抗原という分子の「全体」を認識しているのではないという点です。教科書は、抗体は大きな分子の表面のうち「ごく小さな領域だけを認識する」と述べています[1]。1個のタンパク質抗原は、人の顔ほどの大きさの立体に例えるなら、抗体が触るのは目のまわりや鼻の先といった狭い一区画にすぎません。だからこそ、同じタンパク質に対して性質の違う抗体が何種類もできます。
この言葉はどんな場面で出てくるか
エピトープ・パラトープという言葉は、免疫学の教科書の中だけで使われる用語ではありません。抗体を使った検査で「この抗体はどこに結合するのか」を確かめるとき、抗体を薬として設計するとき、ワクチンがどの部分に対する免疫を作るのかを考えるとき、そして自己免疫や移植の適合を考えるときに、いずれも「どのエピトープか」という形で出てきます。
このうち遺伝医療と直接つながるのは、T細胞が見るエピトープの話です。T細胞エピトープはMHC(ヒトではHLA)に載せられたペプチドであり、HLAは個人差がきわめて大きい遺伝子領域です。つまり何がエピトープになるかは、その人が持っているHLAの型によって変わります。この点は第5章と第7章で詳しく扱います。
エピトープ(抗原決定基)の意味と語源
エピトープ(epitope)は、ギリシャ語に由来する「epi(上・表面)」と「topos(場所)」を組み合わせた造語で、字義どおりには「表面の場所」を意味します。日本語では抗原決定基と訳されます。「決定基」という訳語は、抗原のどの部分が免疫応答の特異性を決めるか、という問いに対する答えがこの領域だからです。
なお、語源をもとに「抗原提示細胞が抗原の断片を細胞の表面に出すから、外側の場所=エピトープと呼ぶ」と説明されることがありますが、これは順序が逆の説明です。エピトープという言葉は、抗原分子の表面にある認識される場所を指す語として作られたものであり、抗原提示という過程の名前から来たものではありません。抗原提示は、あとで述べるT細胞エピトープの話に関わる別の現象です。
パラトープ(抗原結合部位)の意味
パラトープ(paratope)は、抗体の可変領域の先端にある、抗原を結合するための面です。抗体はY字型の分子で、2本の重鎖(H鎖)と2本の軽鎖(L鎖)からできています。Y字の2本の腕の先に、重鎖と軽鎖の可変領域が向かい合ってできた結合部位が1つずつあり、1分子のIgGには同じパラトープが2か所あります。抗体の構造そのものについては免疫グロブリン(IgG)のページで扱っています。
パラトープは、ひとつながりの平らな板ではありません。重鎖と軽鎖の可変領域にある3本ずつ、合計6本の超可変ループ(CDR)が寄り集まってつくる、凹凸のある面です[1]。この面の形と化学的な性質が抗原のエピトープと噛み合うかどうかで、その抗体が何に結合するかが決まります。
エピトープとパラトープの違い(比較表)
エピトープとパラトープの違いは、「どちら側の分子の話をしているか」の違いです。1つの抗原抗体結合には必ず両方が登場し、片方だけでは成立しません。鍵と鍵穴にたとえられることがありますが、実際の抗原抗体結合は固い鍵というより、お互いに少し形を変えながら合わせる柔らかい接触に近いものです。
📘 エピトープとパラトープの違い
| 項目 | エピトープ | パラトープ |
|---|---|---|
| どちら側か | 抗原の側 | 抗体(またはB細胞受容体)の側 |
| 日本語訳 | 抗原決定基 | 抗原結合部位 |
| 何でできているか | 抗原表面のアミノ酸残基、糖鎖、脂質など | 重鎖・軽鎖の可変領域にある6本のCDRを中心とした面 |
| 1分子あたりの数 | 1つの抗原に複数(表面の別の場所に何か所も) | IgG1分子に2か所(同じもの) |
| 多様性の由来 | 抗原そのものの配列と立体構造 | V(D)J再構成と体細胞超変異 |
※エピトープ・抗原決定基の定義とパラトープを構成する超可変ループについては Janeway Immunobiology 第5版[1]による。
よくある誤解:エピトープとパラトープは「同じアミノ酸配列」ではない
エピトープとパラトープについて、「抗体は抗原のエピトープと同じアミノ酸配列(パラトープ)に結合する」という説明を見かけることがありますが、これは誤りです。2つは別々の分子の別々の部分であり、配列が一致しているわけではありません。抗体は抗原の配列をコピーして作られるのではなく、あらかじめ多様に用意された結合面の中から、たまたまその抗原の表面と形と性質が合うものが選ばれて増えていきます。
また、パラトープはアミノ酸配列の連続した一区間でもありません。重鎖と軽鎖という2本の別の鎖に分かれて存在する6本のループが、折りたたみによって一か所に集まることで初めて結合面になります[1]。抗原の側では不連続なエピトープが多く、抗体の側でも結合面は配列の上では不連続という点は、この分野の用語を扱うときに押さえておきたいところです。「配列が同じ」ではなく「立体的に噛み合う」と言い換えると、実際の構造データと食い違いません。
誤解① エピトープとパラトープは同じもの
同じ1か所の結合を、抗原の側から呼ぶのがエピトープ、抗体の側から呼ぶのがパラトープです。指している分子が違います。
誤解② 両者は同じアミノ酸配列
配列は一致しません。形と化学的な性質が相補的に噛み合うだけで、パラトープが抗原の配列を写し取っているわけではありません。
誤解③ エピトープはいつも配列の一区間
折りたたまれたタンパク質に対する抗体の多くは、配列上離れた区間が集まってできた不連続エピトープを認識します[1]。
誤解④ CDRの残基はすべて抗原に触っている
初期の構造解析では、CDR内の残基のうち抗原結合に関与するのは20〜33%でした。残りはループの形や向きを支えています[2]。
💡 用語解説:ハプテン(hapten)
ハプテンとは、それ自体は小さすぎて単独では免疫応答を起こしにくいが、抗体には結合できる小分子のことです。古典的な抗体研究では、ホスホリルコリンやビタミンK1といったハプテンと抗体の複合体の立体構造が解かれ、超可変領域が抗原結合部位をつくっていることが確かめられました[1]。ハプテンや糖鎖のような小さな抗原は、重鎖と軽鎖の可変領域のあいだにできた溝やポケットに入り込む形で結合します[1]。
2. パラトープをつくるCDR(相補性決定領域)
パラトープの中心は、抗体の可変領域にある6本のCDR(相補性決定領域)です。抗体の可変領域をアミノ酸配列のレベルで並べると、配列がよく変わる区画が3か所に集まっていることが分かります。これが超可変領域(HV1・HV2・HV3)で、別名がCDR1・CDR2・CDR3です。軽鎖ではおおよそ28〜35番、49〜59番、92〜103番の残基にあたります[1]。
6本のループが寄り集まって面をつくる
可変領域は、β構造が重なったサンドイッチのような骨組み(フレームワーク)の上に、3本のループが突き出した形をしています。重鎖と軽鎖の可変領域が向かい合うと、合わせて6本のループが一か所に集まり、抗原と接するための面ができます。教科書は「3本の超可変ループが抗原特異性を決める」としながら、同時に「重鎖と軽鎖のどちらか一方ではなく、その組み合わせが」特異性を決めると述べています[1]。重鎖だけ、軽鎖だけを取り出しても、もとの抗体と同じ結合は再現できないということです。
抗原の大きさによって、この面の使い方は変わります。ハプテンや短いペプチドのような小さな抗原は、重鎖と軽鎖のあいだのポケットや溝に収まります。一方、タンパク質のような大きな抗原では、接触面が広く伸び、6本のCDRすべてに加えてフレームワークの一部まで巻き込むことがあります。この面は「平らなこともあれば、波打っていることも、外に張り出していることもある」と記述されています[1]。
フレームワーク:結合面を支える骨組み
可変領域は、ほとんど配列が変わらない骨組み(フレームワーク)と、配列がよく変わる3本のループ(CDR)に分かれています。骨組みは、β構造のシートが2枚重なったサンドイッチのような形をしていて、その縁からループが外へ突き出しています[1]。骨組みの配列があまり変わらないのは、どの抗体でも同じ形の土台を作る必要があるからです。土台の形が崩れれば、その上に載っているループの位置関係も崩れ、結合面として働かなくなります。
この「変わらない部分」と「変わる部分」の組み合わせが、抗体という分子のうまくできているところです。骨組みを共通にしたまま、先端のループの配列だけを入れ替えることで、同じ設計の分子で無数の相手に対応できます。実際、タンパク質のような大きな抗原に結合するときには、6本のCDRだけでなくフレームワークの一部まで接触面に加わることがあると記述されています[1]。「CDRが結合し、フレームワークは関係しない」という単純な分け方では説明できないということです。
結合面にどんな残基が並んでいるかにも特徴があります。抗体の結合部位には芳香族アミノ酸が多く含まれ、これらは主にファンデルワールス力と疎水相互作用によって結合に貢献すると記述されています[1]。側鎖の性質についてはアミノ酸のページで解説しています。
CDRのうち、実際に抗原に触れているのはどれくらいか
CDRに含まれる残基のすべてが抗原に触っているわけではありません。抗体抗原複合体の立体構造をまとめた総説は、初期の構造解析ではCDR内の残基のうち抗原結合に関与するのは20〜33%だったと記述しています[2]。残りの残基は、ループの形を保つ、向きを決める、といった裏方の仕事をしています。
逆に、CDRという区切りの外側にも抗原に触る残基があります。同じ総説は、抗原結合残基(ABR)という定義に置き換えると実際に抗原に結合する残基の約96%を覆えるのに対し、従来のCDRの定義ではそのうち約20%を取りこぼすと述べています。また重鎖のフレームワーク3領域にあるループ(CDR-H4と呼ばれることがある部分)は、ヒト抗体と抗原の接触の1.3%を占めるとされています[2]。「CDR=抗原に触る場所」と単純に覚えると、構造の実際とずれます。
6本のCDRの貢献度も同じではありません。同じ総説は、重鎖のCDR3(ABR-H3)が平均すると抗原結合エネルギーへの寄与がもっとも大きかったと述べており、同時に、個々の抗体では別のCDRが主役になる例もあると注意しています[2]。重鎖CDR3は、遺伝子の再構成のときにV・D・Jの3つの断片のつなぎ目にできる場所であり、配列の多様性がもっとも大きい部分でもあります。
パラトープの多様性はどこから来るのか
一人の体の中に、あらかじめ膨大な種類のパラトープが用意されています。その源は、B細胞が成熟する過程で抗体遺伝子の断片を切り貼りするV(D)J再構成です。これによって、生まれつき決まった配列の抗体を1種類ずつ持つのではなく、組み合わせで多数の結合面を作り出せます。
さらに、いったん抗原に出会ったあとは、体細胞超変異によって可変領域に点変異が入り、より強く結合する抗体を作るB細胞が選ばれていきます。この過程で、パラトープの形はエピトープに合うように微調整されます。抗体の働き方を決める定常領域側の性質は、クラススイッチによってIgMからIgG・IgA・IgEへ切り替わりますが、このときパラトープ(どの抗原に結合するか)は変わりません。「抗原に結合する部分」と「結合したあとに何を起こす部分」は、抗体の中で役割が分かれているという点は、抗体医薬を理解するうえでも大事な区別です。
3. エピトープの種類:線状エピトープと立体構造エピトープ
エピトープは、配列上ひとつながりかどうかで、連続(線状)エピトープと不連続(立体構造)エピトープに分けられます。連続エピトープ(continuous epitope、線状エピトープ)は、1本のポリペプチドの続いた一区間からできています。不連続エピトープ(discontinuous epitope、立体構造エピトープ、コンフォメーショナルエピトープ)は、配列の上では離れた複数の区間が、タンパク質が折りたたまれることで表面の一か所に寄り集まってできています[1]。
教科書は、折りたたまれたタンパク質に対して作られた抗体の多くは不連続エピトープを認識すると記述しています[1]。構造解析のデータもこれを裏づけています。150種類の抗体抗原複合体を解析した研究では、厳密な意味で完全に1本につながっているエピトープは1つもありませんでした。エピトープでない残基が最大5つ挟まる程度までを「つながっている」と緩く数えても、なお85%のエピトープが複数の区間に分かれており、挟まる残基を3つまでに絞ると88%が複数区間になりました[3]。
エピトープの大きさ:15〜25残基、効いているのは3〜5残基
立体構造の上でエピトープとして数えられる残基は、約75%の例で15〜25残基、表面積としては600〜1000Ųの範囲にあるとまとめられています[3]。この値は、抗体と接触している残基をすべて数えた「構造エピトープ」の大きさです。同じ研究が扱った6つの構造では、構造エピトープの残基数は17〜26でした[3]。
一方で、結合の強さに実際に効いている残基はもっと少数です。同じ論文は、機能的エピトープ(いわゆるホットスポット)は3〜5残基ほどからなると述べています[3]。この「触っている範囲」と「効いている範囲」のずれは、エピトープを扱うときに混乱が起きやすいところです。「エピトープは数残基」と説明される場合はホットスポットの話、「15〜25残基」と説明される場合は接触面全体の話と考えると整理できます。
🧬 連続(線状)エピトープと不連続(立体構造)エピトープ
| 項目 | 連続(線状)エピトープ | 不連続(立体構造)エピトープ |
|---|---|---|
| 成り立ち | 1本のポリペプチドの続いた区間 | 配列上離れた区間が折りたたみで寄り集まる |
| 変性させると | 残ることがある | 失われやすい |
| 短いペプチドで再現 | しやすい | しにくい |
| 構造解析での割合 | 150複合体中、厳密に線状のものは0 | 隙間5残基まで許しても85%が複数区間 |
| 調べ方 | 重ねたペプチドを使った解析でも追える | X線結晶構造解析や部位特異的変異導入が必要 |
※連続・不連続の定義は Janeway Immunobiology 第5版[1]、150複合体の解析値は Sivalingam ら 2012[3]による。
立体構造エピトープが多いという事実は、実務にそのまま響きます。重ねて合成した短いペプチドでエピトープを探す方法では、立体構造エピトープの全体を覆いきれません。実際、40残基のペプチドで構造エピトープ全体をまたげたのは18%にとどまり、7〜15残基の窓では構造エピトープの残基の35〜55%程度しか捉えられなかったと報告されています[3]。
「立体構造に依存する」とはどういうことか
立体構造エピトープは、タンパク質が正しく折りたたまれている状態でだけ存在します。配列の上で離れた区間が集まってできているので、折りたたみが崩れれば、その集まりもなくなります。教科書は、折りたたまれたタンパク質に対して作られた抗体の多くは不連続エピトープを認識するとし、その一部はペプチド断片にも結合すると述べています[1]。つまり、ある抗体がペプチドに結合するかどうかは、その抗体が見ているエピトープの性質によって変わります。
このことは、実験や検査で同じ抗体が条件によって違う結果を出す理由の一つになります。抗原抗体結合そのものも可逆的で、高い塩濃度、極端なpH、界面活性剤によって解けると記述されています[1]。抗体が「結合しなかった」という結果は、相手の分子がないことを意味するとは限らず、そのエピトープがその条件では成立していないことを意味する場合があるという点は、結果を読むときに大事になります。
立体構造エピトープの重要性は、抗原の形を保つことがそのまま目的になる場面があることも意味します。折りたたみの単位や、立体構造という考え方そのものについては、ドメインとコンフォメーションのページで扱っています。
抗原のタンパク質がどんな形に折りたたまれているかが、どこがエピトープになり得るかを決めます。立体構造そのものの考え方はコンフォメーション、折りたたみの単位はドメイン、材料となる残基の性質はアミノ酸のページで解説しています。

🩺 院長コラム【「鍵と鍵穴」のたとえを使いすぎないほうがよい理由】
エピトープとパラトープは、鍵と鍵穴の関係として説明されることが多い組み合わせです。形が合う相手だけが結合する、という点をつかむには分かりやすいたとえだと思います。
ただ、このたとえだけで理解を止めると、立体構造エピトープの話がうまく入ってきません。鍵穴の形は固定ですが、抗原の表面は折りたたみ方によって作られていて、変性すれば消え、別の分子と結合している状態では隠れることもあります。結合とは、形の決まった部品がはまる作業ではなく、互いに少しずつ譲り合って接触面をつくる現象だと考えておくほうが、実際のデータと食い違わないと考えています。
4. エピトープとパラトープはどんな力で結合するのか
エピトープとパラトープの結合は共有結合ではなく、弱い力がたくさん重なった非共有結合です。そのため結合は可逆的で、高い塩濃度、極端なpH、界面活性剤によって解くことができます[1]。抗体を使った検査や精製の手順で、こうした条件が使われるのはこのためです。
4つの力がどう効いているか
教科書は、抗原抗体結合に関わる非共有結合として次の4種類を挙げています[1]。静電相互作用は、荷電した側鎖のあいだに働く力で、塩橋が典型です。水素結合は、酸素や窒素の原子を橋渡しする、電気双極子のあいだの相互作用です。ファンデルワールス力は、ごく近い距離でだけ働く弱い力です。そして疎水相互作用は、2つの疎水的な面が近づいて水を追い出すときに生じるもので、埋められた表面積に比例して強くなり、抗原によっては結合エネルギーの大部分を担うとされています[1]。
これらの力はどれも届く距離がごく短いため、エピトープとパラトープの形がよく合っているときにしか十分な数の接触が作れません。これが、抗体が「似ているけれど違う分子」を見分けられる物理的な理由です。なお抗体の結合部位には芳香族アミノ酸が多く含まれ、これらは主にファンデルワールス力と疎水相互作用で結合に貢献すると記述されています[1]。
💡 用語解説:親和性(アフィニティ)と交差反応
親和性とは、1か所のパラトープと1か所のエピトープが結合する強さのことです。同じエピトープを狙う抗体でも、接触面の形や力の組み合わせが違えば親和性は変わります。また、形の似た別の分子のエピトープに同じパラトープが結合してしまうことがあり、これを交差反応といいます。交差反応は検査の偽陽性の原因になる一方、別の病原体に対する免疫が部分的に働く理由にもなります。詳しくは交差免疫をご覧ください。
5. B細胞エピトープとT細胞エピトープの違い
B細胞エピトープは抗原が折りたたまれたままの表面にあり、T細胞エピトープはMHC分子に載せられたペプチドとして提示されます。同じ「エピトープ」という言葉を使っていても、見ている対象の状態がまるで違います。パラトープという言葉が出てくるのはB細胞エピトープの側であり、T細胞受容体の側の結合部位を指して一般にパラトープとは呼びません。
T細胞は抗原そのものを見ていない
教科書は、α:β型のT細胞受容体は「抗原を本来の状態では認識しない」と明記しています[4]。T細胞が認識するのは、分解されてできたペプチドがMHC分子の溝に収まった複合体です。MHCクラスIに結合するペプチドは通常8〜10アミノ酸で、溝の両端で固定されます。MHCクラスIIに結合するペプチドは少なくとも13アミノ酸あり、「もっと長いこともある」とされ、両端が溝に固定されないため上限がはっきりしません[4]。
どの細胞がどちらのクラスを出しているかも決まっています。MHCクラスIはほぼすべての有核細胞にあり、核を持たない赤血球にはほとんどありません。MHCクラスIIは通常、B細胞・樹状細胞・マクロファージという抗原提示細胞に限られます[4]。補助受容体の対応も固定されていて、CD4はMHCクラスIIに、CD8はMHCクラスIに結合します[4]。この対応は「2×4=8、1×8=8」と覚えられることがあります。詳しくは抗原提示細胞とMHCのページで扱っています。
T細胞受容体も、抗体と同じようにCDRのループで相手に接触します。教科書は、α鎖とβ鎖のCDR3ループがペプチドの中央付近の残基の上で出会い、Vα側のCDR1・CDR2がペプチドのアミノ末端寄りのMHCのらせんに接触し、β鎖側のCDRループは主にカルボキシ末端側に向き合う、と記述しています[4]。T細胞受容体はペプチドだけでなく、それを載せているMHC分子そのものにも触っているという点が、このあとのHLAの話につながります。
なぜT細胞には「提示」が必要なのか
抗体は体液の中を流れていき、分子の表面に直接結合できます。一方、T細胞が相手にするのは細胞の中で起きていることです。ウイルスに感染した細胞の中で作られているタンパク質は、細胞の外からは見えません。そこで、細胞は自分の中にあるタンパク質を断片にしてMHCクラスIに載せ、表面に出して見せます。MHCクラスIがほぼすべての有核細胞にあるのは、ウイルスがどの細胞にも感染し得るからだと説明されています[4]。
これに対してMHCクラスIIは、B細胞・樹状細胞・マクロファージという抗原提示細胞に限られます[4]。これらの細胞は、外から取り込んだものを断片にして見せる役目を担っています。CD4がクラスIIに、CD8がクラスIに結合するという対応[4]は、「外から来たものを扱う経路」と「細胞の中で作られたものを扱う経路」を、別々のT細胞の集団に割り振るしくみだと読むことができます。
この「提示」という段取りがあるために、T細胞エピトープには抗体のエピトープとは違う制約がかかります。抗原のどこがT細胞エピトープになるかは、その配列が切り出されるかどうかと、その人のHLAの溝に収まるかどうかの両方で決まります。だから、同じ病原体やワクチンに対しても、T細胞が見る場所は人によって違い得ます。
🔬 B細胞エピトープとT細胞エピトープ
| 項目 | B細胞エピトープ | T細胞エピトープ |
|---|---|---|
| 認識する分子 | 抗体・B細胞受容体(パラトープ) | T細胞受容体(CDRループ) |
| 抗原の状態 | 折りたたまれたまま、表面に露出した部分 | 分解されたペプチドがMHCに載った状態 |
| 立体構造への依存 | 不連続エピトープが多く、立体構造に依存 | ペプチド配列とMHCへの収まり方で決まる |
| 長さの目安 | 構造エピトープは約75%が15〜25残基 | クラスIは8〜10残基、クラスIIは13残基以上 |
| 個人差 | 抗体レパートリーの違いによる | HLA(MHC)の型によって提示されるペプチドが変わる |
※ペプチドの長さ・MHCクラスの分布・CDRの接触はJaneway Immunobiology 第5版[4]、構造エピトープの残基数はSivalingamら2012[3]による。
1つの抗原に何か所もエピトープがある:ポリクローナルとモノクローナル
1つの抗原の表面には、別々のエピトープが何か所もあります。抗体が認識するのは表面のごく小さな領域だけなので[1]、同じタンパク質に対しても、違う場所を見る抗体が同時にできます。抗体抗原認識をまとめた総説は、よく研究されているニワトリ卵白リゾチームを例に、その表面のほとんどがどれかの抗体にとってはエピトープになり得ると述べています[2]。「このタンパク質のエピトープはここ」と1か所に決まっているわけではないということです。
このため、感染したあとやワクチンを受けたあとの血液の中には、同じ抗原の違うエピトープを見る抗体が混ざった状態でできています。研究や診断で1種類の抗体だけを使いたい場合には、1個のB細胞のクローンから作ったモノクローナル抗体が使われます。モノクローナル抗体はパラトープが1種類なので、見ているエピトープも1か所に決まります。
どのエピトープを見ているかが分かっていることは、抗体を道具として使うときの前提になります。たとえば2種類の抗体で抗原を挟んで検出する方法では、2つの抗体が同じエピトープを取り合わないことが必要です。また、抗体が受容体の働きそのものを妨げるかどうかも、結合している場所によって変わります。だからこそ、次の節で述べるエピトープマッピングが行われます。
6. エピトープマッピングとは?何をどう調べる技術か
エピトープマッピングとは、ある抗体が抗原のどの部分に結合しているかを特定する作業のことです。抗体が「このタンパク質に結合する」ことが分かっても、表面のどこに結合しているかが分からなければ、その抗体が機能を妨げるのか、別の抗体と同時に使えるのか、よく似た分子と交差反応しないかを判断できません。
主な方法と、それぞれの得意・不得意
方法は大きく、配列をもとに予測する方法、ペプチドを使って実験的に絞り込む方法、立体構造から直接決める方法に分かれます。配列からの予測は、スライド窓で配列のプロフィールを見る方式が使われてきましたが、線状エピトープに対してすら限界があると指摘されています[3]。重ねて合成したペプチドを使う方法では、窓の長さが研究ごとに異なり、6残基、17残基、32残基までといった幅があります[3]。
精度の高い方法として挙げられているのは、X線結晶構造解析と部位特異的変異導入です[3]。前者は抗体抗原複合体の構造を原子のレベルで見る方法、後者は残基を1つずつ置き換えて結合が落ちるかどうかを見る方法です。
この2つの方法は、見ているものが少し違います。構造解析で分かるのは「触っている残基」、つまり構造エピトープです。一方、残基を置き換えて結合の変化を見る方法で浮かび上がるのは「結合に効いている残基」、つまり機能的エピトープの側です。前の節で述べたとおり、構造エピトープは約75%の例で15〜25残基ある一方、機能的エピトープは3〜5残基ほどとされています[3]。同じ抗体について、方法によって「エピトープ」として報告される範囲が違い得るということです。文献でエピトープの範囲を読むときには、どの方法で決めた範囲なのかを確かめる必要があります。前節で触れたとおり、ペプチドを使う方法では立体構造エピトープを覆いきれないため、不連続性が高いエピトープではこうした方法が必要になります。
配列からの予測はどこまで使えるか
配列だけからエピトープを当てる方法には、はっきりした限界があります。B細胞エピトープの不連続性を解析した研究は、スライド窓で配列のプロフィールを見る従来の予測法について、線状エピトープを対象にした場合でも限界があると指摘しています[3]。立体構造エピトープが多数を占めるという事実と、配列を一次元の並びとして扱う予測法の相性が悪いことが理由です。
同じ研究は、重ねて合成したペプチドで構造エピトープをどれだけ覆えるかを計算しています。40残基という長いペプチドでも構造エピトープ全体をまたげたのは18%にとどまり、7〜15残基の窓では構造エピトープの残基の35〜55%程度でした[3]。ペプチドで陽性にならなかったことは、そこがエピトープでないことの証明にはならないということです。
抗体側の定義にも同じような注意点があります。抗体抗原認識の総説は、抗原結合残基(ABR)という定義が実際に抗原に結合する残基の約96%を覆う一方、従来のCDRの定義ではそのうち約20%を取りこぼすと述べています[2]。計算で扱いやすい区切りと、実際に結合している場所は、完全には一致しません。こうした前提を知っておくと、予測ツールの出力をそのまま結論として受け取らずに読むことができます。
7. 遺伝・医療とのつながり:HLAの型、抗体をつくる遺伝子、抗体医薬
エピトープ・パラトープという話は、遺伝医療では「どのHLAを持っているか」「抗体をつくる遺伝子が働いているか」という個人差の問題になります。ここが、他の解説サイトでは抜けやすく、臨床遺伝の立場からはいちばん大事な部分です。
HLAの型が変わると、提示されるT細胞エピトープが変わる
前節で述べたとおり、T細胞エピトープはMHC(ヒトではHLA)に載ったペプチドです。HLAはヒトのゲノムの中でもとくに多型が多い領域で、型が違えば溝の形が違い、溝に収まるペプチドの顔ぶれも変わります。つまり、同じウイルス、同じ薬が体に入っても、どのペプチドがT細胞エピトープとして提示されるかは人によって違うということです。HLA領域の構造については拡張MHC(xMHC)とHLAで解説しています。
この個人差がはっきり表に出るのが、薬による重い皮膚の副作用です。米国国立生物工学情報センター(NCBI)のMedical Genetics Summariesは、抗てんかん薬カルバマゼピンによるスティーブンス・ジョンソン症候群/中毒性表皮壊死症(SJS/TEN)について、最初の研究では漢民族の患者44人全員がHLA-B*15:02を持っており、薬を問題なく使えた対照101人では3人(3%)だったと記述しています[5]。同じ資料は、SJS/TENがカルバマゼピンを使った人の約1万人あたり1〜10人に起こり、90%以上が治療開始から数か月以内に発症すると記述しています[5]。
ここで遺伝学として大事なのは、このアレルの頻度が集団によって大きく違うことです。同じ資料は、香港・タイ・マレーシア・ベトナムやフィリピンの一部では15%を超え、台湾とシンガポールでは10〜13%、中国北部では約4%、南アジアでは2〜4%である一方、日本と韓国では1%未満で、ヨーロッパ系・ヒスパニック系・アフリカ系ではまれかほとんど見られないとしています。そして、日本やヨーロッパの集団でこのアレルとSJS/TENの関連が見られなかったのは、アレル自体がまれであることによると説明しています[5]。一方、HLA-A*31:01は日本人で7〜12%の頻度とされ、薬疹・DRESSを含むカルバマゼピン過敏症の各型と関連すると記述されています[5]。HLA遺伝型とカルバマゼピン・オクスカルバゼピンの使用については、CPIC(Clinical Pharmacogenetics Implementation Consortium)が2017年改訂のガイドラインを公表しています[6]。
同じ資料は、この種の過敏症の機序は十分には解明されていないとした上で、薬またはその代謝物が細胞表面のMHC分子と相互作用し、T細胞や好酸球を含む免疫系を刺激すると考えられている、と述べています[5]。エピトープという言葉は、ここでは「薬が関わることで変わってしまった、自分の細胞の上の提示」という意味を帯びます。こうした薬と遺伝型の関係を扱う領域はファーマコゲノミクス(薬理ゲノミクス)と呼ばれます。なお、ここで挙げた数値は特定の集団を対象にした研究や資料の値であり、個人がその薬で副作用を起こす確率を示すものではありません。
⚠️ 読み方の注意
「漢民族の患者44人全員がHLA-B*15:02を持っていた」という値は、すでにSJS/TENを起こした人を集めて調べた結果です。逆に「このアレルを持っていれば必ず起こる」という意味にはなりません。アレルの頻度と、そのアレルを持つ人が発症する割合は、別の数字です。薬の選択は、集団の数値ではなく一人ひとりの状況に基づいて主治医が判断するものです。
交差反応はなぜ起こるのか
交差反応とは、ある抗原のエピトープに対して作られた抗体が、形の似た別の分子にも結合してしまうことです。前の節で述べたように、エピトープとパラトープの結合は水素結合・静電相互作用・疎水相互作用・ファンデルワールス力といった、どれも届く距離がごく短い力の積み重ねで成り立っています[1]。接触できる点の数が十分に稼げれば結合は成立するので、配列がまったく同じでなくても、表面の形と電荷の配置が似ていれば結合が起こり得ます。
さらに、実際に結合の強さに効いているのは機能的エピトープ、つまり3〜5残基ほどのホットスポットであると報告されています[3]。言い換えると、分子全体が似ていなくても、この数残基ぶんの並びが似ていれば交差反応は起こり得るということです。抗体を道具として使う場面では、これが検査の偽陽性の原因になります。一方で、免疫の側から見ると、以前に出会った病原体に対する記憶が、似た別の病原体に対して部分的に働くことにもつながります(交差免疫)。
自分のエピトープに反応してしまう場合:自己抗体と免疫寛容
エピトープは、自己由来の分子にも非自己由来の分子にもあります。しかし、胸腺や末梢での選別がすり抜けると、自分の分子のエピトープを認識する抗体やT細胞が残ってしまうことがあります。この選別のしくみが免疫寛容で、破れたときに起こるのが自己免疫疾患です。がんの側では、変異によって新しく生まれたペプチドがネオアンチゲンとして提示され、これを標的にする治療が研究されています。いずれも、「どんなエピトープが提示されるか」が起点になっている現象です。
パラトープを作る側の遺伝子に変化があるとき:当院で調べられること
パラトープの多様性は、V(D)J再構成・体細胞超変異などの仕組みに支えられています。一方、クラススイッチは重鎖の定常領域を切り替える仕組みです。これらの仕組みに関わる遺伝子に生まれつきの変化があると、抗体が十分に作れない、あるいはクラスの切り替えがうまくいかない状態になります。
当院では、低ガンマグロブリン血症・原発性抗体欠損症の遺伝子検査として、原発性抗体欠損症に関わる37の遺伝子をまとめて調べる検査を行っています。対象にはクラススイッチに関わるAICDA・CD40・CD40LG・UNGや、遺伝子の再構成に関わるRAG1・RAG2・DCLRE1Cなどが含まれます。検体は血液のほか、口の内側の粘膜や唾液も使え、オンライン診療で受けることができます。オンラインの場合は、遺伝カウンセリング料金を事前にお支払いいただきます。一方で、染色体の転座・逆位、リピートの伸長(CD40LGの3塩基リピートを含む)、1つのエクソンだけの欠失・重複、エクソンから20塩基を超えて離れたイントロン内の変化、モザイクなどは、この検査の対象外とされています。37遺伝子に含まれない遺伝子が原因の場合も、この検査では分かりません。詳しい内容は検査ページに記載しています。
妊娠中に胎児の染色体の数の変化などを調べる検査については、NIPT(新型出生前診断)のページでまとめています。抗体やエピトープの話とは別の検査ですが、いずれも「どの遺伝子を、どの方法で、どこまで調べているか」を確かめてから結果を読む、という点は同じです。
抗体医薬・ワクチンの設計とエピトープ
抗体を薬として使う場合、「どの分子に結合するか」だけでは足りません。同じ分子の、どのエピトープに結合するかによって、受容体の働きを妨げられるか、別の抗体と組み合わせて使えるか、似た分子に交差反応しないかが変わります。だからこそ、結合部位を特定するエピトープマッピングが、X線結晶構造解析や部位特異的変異導入といった方法で行われます[3]。結合したあとの作用には、結合するエピトープや定常領域の性質、抗体薬物複合体では搭載薬物なども関わるため、ADCCや抗体薬物複合体のページもあわせてご覧ください。
🩺 院長コラム【エピトープの話は、結局「個人差」の話になる】
免疫の教科書では、エピトープとパラトープは分子の形の話として出てきます。けれども臨床遺伝の立場から見ると、この話はそのまま個人差の話になります。T細胞が見るエピトープはHLAに載ったペプチドであり、HLAの型は人によって違うからです。
だから、同じ病原体でも同じ薬でも、免疫がどこを見るかは一人ひとり違います。集団を対象にした研究の数値を、そのまま目の前の一人の確率として読まないこと。そして、遺伝学的な検査を使うときには、何を調べていて何を調べていないのかを先に確かめること。この2つは、エピトープのような基礎的な概念を扱うときにも共通して大事だと考えています。
よくある質問(FAQ)
Q1. エピトープとパラトープの違いは何ですか?
見ている側が違います。エピトープは抗原の側にある結合部位(抗原決定基)、パラトープは抗体の側にある結合部位(抗原結合部位)です。1つの抗原抗体結合には必ず両方があり、互いに形と性質が噛み合う関係にあります。
Q2. エピトープと抗原決定基は同じ意味ですか?
同じ意味です。免疫学の教科書では、抗体が認識する構造を「抗原決定基(antigenic determinant)またはエピトープ」と呼ぶと説明されています。抗原決定基が日本語訳、エピトープが英語由来の呼び方です。
Q3. 抗原とエピトープはどう違いますか?
抗原は分子そのもの、エピトープはその分子のうち抗体やT細胞受容体が実際に結合する限られた領域です。抗体は大きな分子の表面のごく小さな領域だけを認識するため、1つの抗原の表面には別々のエピトープが何か所もあります。
Q4. エピトープのアミノ酸の数はいくつですか?
数え方によって変わります。抗体と接触している残基をすべて数えた構造エピトープは、約75%の例で15〜25残基、表面積600〜1000Ųとまとめられています。一方、結合に実際に効いている機能的エピトープ(ホットスポット)は3〜5残基ほどです。
Q5. 線状エピトープと立体構造エピトープの違いは何ですか?
線状(連続)エピトープは1本のポリペプチドの続いた区間からできており、立体構造(不連続)エピトープは配列上離れた区間が折りたたみによって表面の一か所に集まってできています。折りたたまれたタンパク質に対する抗体の多くは不連続エピトープを認識し、150種類の複合体の解析では厳密に線状のエピトープは見つかりませんでした。
Q6. B細胞エピトープとT細胞エピトープはどう違いますか?
B細胞エピトープは、折りたたまれた抗原の表面にあり、抗体のパラトープが結合します。T細胞エピトープは、分解されたペプチドがMHC分子に載った状態で提示されます。MHCクラスIに結合するペプチドは通常8〜10アミノ酸、クラスIIに結合するペプチドは少なくとも13アミノ酸です。
Q7. CDR(相補性決定領域)とパラトープはどういう関係ですか?
CDRはパラトープを構成する主な部品です。重鎖と軽鎖の可変領域にある3本ずつ、合計6本の超可変ループがCDRで、これらが寄り集まって抗原と接する面をつくります。ただしCDR内の残基のうち抗原結合に関与するのは初期の構造解析では20〜33%で、CDRの外側にも抗原に触る残基があります。
Q8. エピトープマッピングとは何をする技術ですか?
ある抗体が抗原のどの部分に結合しているかを特定する作業です。配列からの予測、重ねて合成したペプチドを使う方法、X線結晶構造解析や部位特異的変異導入といった精度の高い方法があります。立体構造エピトープは短いペプチドでは覆いきれないため、構造解析や変異導入が必要になります。
まとめ
エピトープ(抗原決定基)は抗原の側の結合部位、パラトープ(抗原結合部位)は抗体の側の結合部位で、同じ1か所の結合を別の側から呼んだ言葉です。抗体は大きな分子の表面のごく狭い領域だけを認識し、その結合面は重鎖と軽鎖の6本のCDRによってつくられます[1]。CDR内の残基のすべてが抗原に触れているわけではなく、初期の構造解析では20〜33%とされ、CDRの外側にも接触する残基があります[2]。
エピトープは連続(線状)と不連続(立体構造)に分けられ、折りたたまれたタンパク質に対する抗体の多くは不連続エピトープを認識します[1]。構造エピトープは約75%の例で15〜25残基・600〜1000Ųで、結合に効いている中心部分は3〜5残基ほどです[3]。T細胞が見るエピトープはMHCに載ったペプチドであり、MHCクラスIでは通常8〜10アミノ酸です[4]。HLAの型は人によって違うため、提示されるT細胞エピトープにも個人差があります。この個人差は、薬による重い皮膚障害の起こりやすさの集団差としても現れています[5]。
📘 この記事について
この記事は、免疫学と臨床遺伝学で使われる用語「エピトープ」「パラトープ」を解説する用語ページです。個別の検査結果や治療方針について判断するものではありません。抗体が十分に作れない状態の遺伝学的な背景を調べる検査として、当院では原発性抗体欠損症の遺伝子検査(37遺伝子)を行っています。検査の結果が本人や血縁者にとってどういう意味を持つかを臨床遺伝専門医と整理する場として、遺伝カウンセリングがあります。当院の遺伝子検査・NIPT・遺伝カウンセリングは自費診療です。
参考文献
- [1] The interaction of the antibody molecule with specific antigen. In: Janeway CA Jr, Travers P, Walport M, Shlomchik MJ. Immunobiology: The Immune System in Health and Disease. 5th edition. New York: Garland Science; 2001. [NCBI Bookshelf NBK27160]
- [2] Sela-Culang I, Kunik V, Ofran Y. The structural basis of antibody-antigen recognition. Front Immunol. 2013;4:302. [doi:10.3389/fimmu.2013.00302]
- [3] Sivalingam GN, Shepherd AJ. An analysis of B-cell epitope discontinuity. Mol Immunol. 2012;51(3-4):304-309. [PMC3657695]
- [4] Antigen recognition by T cells. In: Janeway CA Jr, Travers P, Walport M, Shlomchik MJ. Immunobiology: The Immune System in Health and Disease. 5th edition. New York: Garland Science; 2001. [NCBI Bookshelf NBK27098]
- [5] Dean L. Carbamazepine Therapy and HLA Genotype. In: Medical Genetics Summaries. Bethesda (MD): National Center for Biotechnology Information (US); 2015. Updated June 9, 2025. [NCBI Bookshelf NBK321445]
- [6] Phillips EJ, Sukasem C, Whirl-Carrillo M, et al. Clinical Pharmacogenetics Implementation Consortium Guideline for HLA Genotype and Use of Carbamazepine and Oxcarbazepine: 2017 Update. Clin Pharmacol Ther. 2018;103(4):574-581. [doi:10.1002/cpt.1004]






