

目次
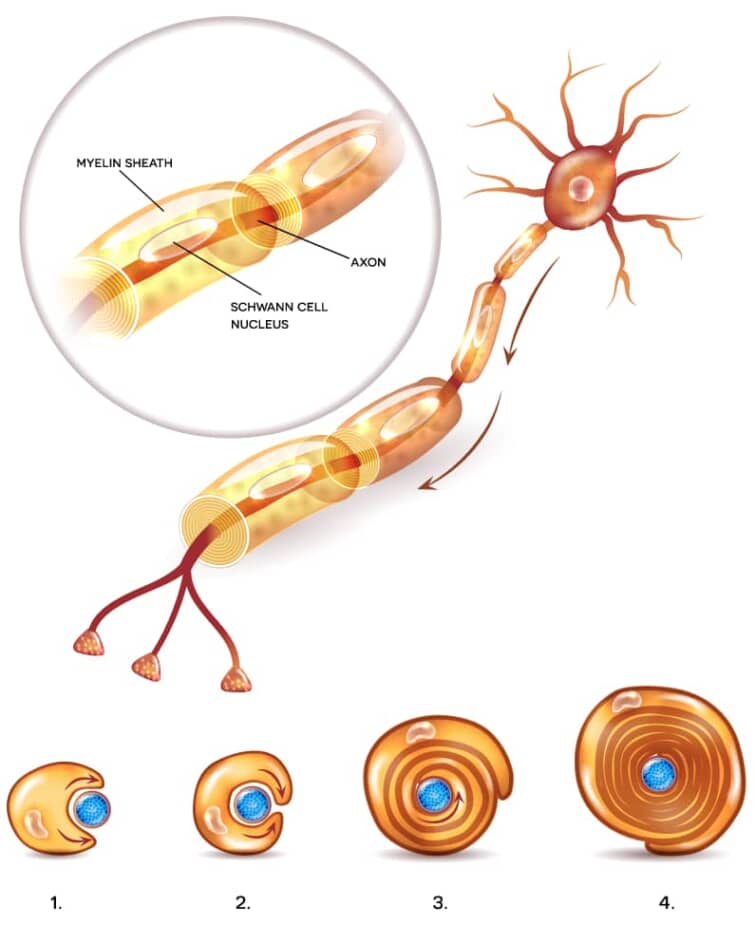
髄鞘(ずいしょう)とは、神経細胞から伸びる軸索に何十層にも巻きついた、脂質の多い膜のことで、ミエリン鞘(ミエリン、英語ではmyelin sheath)とも呼ばれます。電線の被覆のように軸索を絶縁し、電気信号を「跳躍伝導」で速く伝えるのが一番の役割です。脳や脊髄ではオリゴデンドロサイト、手足に向かう末梢神経ではシュワン細胞が作ります。さらに近年は、軸索にエネルギーを渡して生かし続ける役割もわかってきました。この記事では、読み方や神経鞘との違い、髄鞘化(ミエリン化)の時期から、髄鞘が壊れる・作られない病気、髄鞘を再生する研究までを、臨床遺伝専門医が解説します。
⏱️ 30秒でわかる要約
🧠 Q. 髄鞘(ミエリン鞘)とは?読み方は?
髄鞘は「ずいしょう」と読み、ミエリン鞘・ミエリンと同じものを指します。軸索に何十層も巻きついた脂質の多い膜で、電気を通しにくい「絶縁体」として働きます。
⚡ Q. 髄鞘の役割(働き)は?
役割は2つあります。①髄鞘のすき間(ランヴィエ絞輪)から次のすき間へ信号を飛ばす跳躍伝導で、信号を速く伝えること、②乳酸などを軸索に渡して軸索を生かし続けることです。
🧬 Q. どの細胞が作る?髄鞘化はいつ?
脳・脊髄ではオリゴデンドロサイト、末梢神経ではシュワン細胞が作ります。髄鞘ができていくこと(髄鞘化・ミエリン化)は胎児期に脊髄から始まり、大脳では思春期を越えて成人の初めごろまで続きます。
\ 遺伝性の髄鞘の病気(白質ジストロフィー・遺伝性ニューロパチー)が気になる方へ /
臨床遺伝専門医が常駐し、髄鞘の病気に関わる遺伝子をまとめて調べるパネル検査を扱っています。
低髄鞘性白質ジストロフィーの遺伝子検査 | 遺伝性ニューロパチーの遺伝子検査
1. ミエリン(髄鞘)とは?──神経を高速で伝える「絶縁テープ」
結論:髄鞘(ミエリン鞘)は、軸索に巻きついた脂質の多い膜で、信号を速く伝えるための絶縁体です。私たちの神経は、電気信号を使って情報をやりとりしています。その電気信号が通る「電線」にあたるのがニューロン(神経細胞)から伸びる軸索という細長い線維で、その軸索にぐるぐると巻きついた脂質の被覆がミエリン(髄鞘)です。家庭の電気コードが銅線をビニールで覆っているのと同じように、ミエリンは軸索を電気的に絶縁し、信号が途中で漏れたり弱まったりしないように守っています。
ミエリンが優れた絶縁体になれるのは、その正体が「脂(あぶら)でできた膜」を何十層にも重ねた構造だからです。ミエリンの乾燥重量のうち実に約70〜85%が脂質で、タンパク質は約15〜30%にすぎません。脂質の内訳は、コレステロールとリン脂質がそれぞれ約40%、糖脂質が約20%と報告されています[1]。一般的な細胞の膜と比べると、ミエリンは際立って脂質の多い膜です。脂質は電気を通しにくく、膜を何層も重ねることで「電気をためこみにくく、漏らしにくい」という、絶縁体として理想的な性質が生まれます。
髄鞘の読み方・別名は?
髄鞘は「ずいしょう」と読みます。「髄」は骨髄の「ずい」、「鞘」は刀の「さや」を音読みした「しょう」です。同じものをミエリン鞘(ミエリンしょう)・ミエリンとも呼び、英語ではmyelin sheath(マイエリン・シース)といいます。「ミエリン」は本来この膜を作っている物質(脂質とタンパク質のまとまり)の名前で、膜の構造を指すときに「髄鞘」「ミエリン鞘」と呼ぶ、と考えるとわかりやすいでしょう。日常的には、ミエリン・ミエリン鞘・髄鞘はほぼ同じ意味で使われます。
💡 用語解説:軸索(じくさく)と髄鞘(ずいしょう)
軸索とは、神経細胞から長く伸びた「信号を送り出すケーブル」の部分です。その軸索に巻きつく絶縁被覆が髄鞘(ミエリン)です。髄鞘は軸索の全長を切れ目なく覆っているわけではなく、一定の間隔でわずかなすき間があいています。このすき間(ランヴィエ絞輪)があることが、後で説明する「跳躍伝導」という高速化の仕組みの鍵になります。髄鞘のある神経線維を有髄線維、ない神経線維を無髄線維といいます。
軸索・神経鞘(シュワン鞘)・シュワン細胞との違い
似た言葉が多いので、ここで整理しておきます。軸索は信号を運ぶ神経細胞そのものの一部、髄鞘は別の細胞(グリア細胞)が軸索に巻きつけた絶縁の膜です。末梢神経では、髄鞘を作るシュワン細胞の核と細胞質が残る一番外側の部分を神経鞘(シュワン鞘)と呼びます。つまり末梢神経では、内側から「軸索 → 髄鞘(何十層もの膜)→ 神経鞘(シュワン細胞の外側の部分)」と重なっていて、髄鞘も神経鞘も、どちらもシュワン細胞が作っている部分です。脳や脊髄の髄鞘を作るオリゴデンドロサイトは、細胞の本体が軸索から離れた所にあるため、神経鞘にあたる層はありません。
📋 よく混同される言葉の整理
| 言葉 | 何を指すか | どこにある |
|---|---|---|
| 軸索 | 神経細胞から伸びる、信号を運ぶケーブル | 中枢・末梢とも |
| 髄鞘(ミエリン鞘・ミエリン) | 軸索に何十層も巻きついた脂質の多い膜(絶縁体) | 中枢・末梢とも(有髄線維) |
| 神経鞘(シュワン鞘) | シュワン細胞の核と細胞質が残る一番外側の部分 | 末梢神経のみ |
| シュワン細胞 | 末梢神経で髄鞘を作るグリア細胞 | 末梢神経 |
| オリゴデンドロサイト | 脳・脊髄で髄鞘を作るグリア細胞 | 中枢神経 |
| ランヴィエ絞輪 | 髄鞘と髄鞘の間のすき間(信号を再生する場所) | 有髄線維 |
長いあいだ、ミエリンは「電気を通さない受け身の被覆」としてだけ理解されてきました。しかし近年の研究で、ミエリンを作るグリア細胞が軸索にエネルギーを供給して生かし続けているという、もう一つの重要な役割が明らかになりました。ミエリンは「絶縁」と「栄養補給」という2つの仕事をこなすしくみなのです。この記事では、その両面を順に見ていきます。
2. ミエリンを作る細胞と組成──オリゴデンドロサイトとシュワン細胞
結論:髄鞘を作るのは、脳・脊髄ではオリゴデンドロサイト、末梢神経ではシュワン細胞です。どちらも神経細胞を支えるグリア細胞の仲間です。中枢神経のオリゴデンドロサイト(希突起膠細胞)は1個の細胞から何本もの突起を伸ばし、部位によって数本から数十本の軸索(大脳皮質では1個あたり平均34本、脊髄の白質では平均10本という報告があります)を同時に包み込みます。一方、末梢神経のシュワン細胞は1個につき1本の軸索の1区間だけを担当する、いわば専属の職人です[2][3]。なお末梢神経のシュワン細胞は、発生の初期に神経堤細胞という細胞群から生まれます。
ミエリンを作る時期の細胞は、大量の膜を短時間で広げるために、コレステロールや糖脂質といった脂質を猛烈な速度で合成し続けています。
髄鞘化(ミエリン化)とは?いつ進む?
髄鞘化(ずいしょうか・ミエリン化)とは、オリゴデンドロサイトやシュワン細胞が軸索に膜を巻きつけ、髄鞘ができあがっていく過程のことです。ヒトでは、胎児期の妊娠12〜13週ごろの脊髄で、髄鞘を作りはじめた細胞の突起が見られるようになります[4]。生まれたときの脳はまだほとんど髄鞘化されておらず[5]、その後少しずつ進んで、大脳の新皮質では思春期を越えて成人の初めごろまで続くことがわかっています[6]。赤ちゃんの脳のMRIで「髄鞘化の遅れ」が調べられるのはこのためで、髄鞘化が年齢に比べて遅れているときには、低髄鞘性白質ジストロフィー(先天性大脳白質形成不全症)など、髄鞘がうまく作られない遺伝性の病気が見つかることもあります。
💡 用語解説:糖脂質(とうししつ)とスルファチド
ミエリンに特徴的な脂質がスフィンゴ糖脂質という、糖がくっついた脂質の仲間です。代表格がガラクトセレブロシドと、それに硫酸がついたスルファチドです[7]。糖脂質はミエリンの脂質の約2割を占めます[1]。これらの糖脂質を分解する酵素が働かないと、後で述べるクラッベ病(GALC遺伝子)や異染性白質ジストロフィー(ARSA遺伝子)といった遺伝性の髄鞘の病気が起こります。
ミエリン膜の内側と外側では脂質やタンパク質の並び方が左右非対称になっており、この非対称性が膜どうしをきっちり密着させる(パッキングする)うえで役立っています。
3. 髄鞘を組み立てるタンパク質と遺伝子変異
結論:髄鞘を何十層にも密着させるのは、PLP・MBP・P0などの専用のタンパク質で、その遺伝子の変化が遺伝性の病気の原因になります。中枢神経のミエリンでは、プロテオリピドタンパク質(PLP)とミエリン塩基性タンパク質(MBP)が主なタンパク質です。膜の外側どうしを貼り合わせる接着剤の役をPLPが、内側(細胞質側)どうしを密着させる役を、プラスの電気を帯びたMBPが担います。末梢神経では、PLPの代わりにP0(MPZ)タンパク質が同じ接着の役割を果たします。
🧬 髄鞘の主なタンパク質
| タンパク質 | 主な場所 | おもな役割・関連する病気 |
|---|---|---|
| PLP(プロテオリピドタンパク質) | 中枢神経 | 膜の外側どうしを接着。PLP1遺伝子の変化でペリツェウス・メルツバッハ病を起こす。 |
| MBP(ミエリン塩基性タンパク質) | 中枢・末梢 | 膜の内側どうしを密着。欠けると緻密化が不完全になる。 |
| P0(MPZ) | 末梢神経 | 末梢での接着・緻密化の主役。 |
| P2(FABP8) | 末梢神経 | 脂肪酸を樽のような構造に収めて運び、膜の脂質の入れ替えを助ける。 |
| CNPase | 中枢・末梢 | 緻密化していない「細胞質の通り道」を保つ。欠けると軸索が変性する。 |
| MAG | 中枢・末梢 | 軸索に最も近い内側の膜にあり、軸索とグリアの認識・やりとりを仲介。 |
末梢神経に特有のP2(FABP8)は、脂肪酸を運ぶタンパク質の仲間です。高い解像度(1.85オングストローム)で立体構造が解かれており、βシートでできた「樽(バレル)」のような形の内側に、パルミチン酸に似た脂肪酸を抱え込んでいることがわかっています[8]。この樽の入り口が膜の表面と接触し、脂質を直接受け渡すことで、ミエリン膜の材料を入れ替えていると考えられています。
中枢神経で最も多いPLPは、遺伝子(PLP1)にミスセンス変異や重複が起こると、髄鞘そのものがうまく作れないペリツェウス・メルツバッハ病という病気を引き起こします。さらに、PLPの一部分(45〜53番目のアミノ酸、KLIETYFSKという並び)は、HLA-A*0301という免疫の分子と結合して、免疫細胞に「標的」として見せうることが立体構造の解析で示されています[9]。多発性硬化症で自分の髄鞘が免疫に攻撃される仕組みを考えるうえで、注目されている知見です。
💡 用語解説:ミスセンス変異とは
遺伝子は、タンパク質を作るための「設計図(アミノ酸の並びを指定する暗号)」です。ミスセンス変異とは、この暗号のうち1文字が別の文字に置き換わり、その結果アミノ酸が1つだけ別のものに入れ替わるタイプの変異です。たった1か所の違いでも、それが重要な場所であればタンパク質の形や働きが変わり、髄鞘がうまく作れなくなることがあります。
4. 軸索を「養う」ミエリン──代謝サポートという第二の役割
結論:髄鞘を作る細胞は、乳酸などのエネルギー源を軸索に渡し、軸索を長く生かし続けています。ミエリンは軸索を外の環境からぴったり包み込むため、軸索に栄養が直接しみ込むのを妨げる「壁」にもなってしまいます。この矛盾を解決するために、ミエリンを作る細胞と軸索の間には、エネルギーを補給するしくみが備わっています。
オリゴデンドロサイトはブドウ糖を分解して乳酸を作り、MCT1という「運び出し口」を通して軸索との狭いすき間へ放出します。軸索側はMCT2という「取り込み口」で乳酸を受け取り、それをエネルギー源にしてミトコンドリアでATP(細胞のエネルギー通貨)を作ります。MCT1はオリゴデンドロサイトに多く、これを実験的に減らすと、軸索が傷ついて神経細胞が失われることが動物実験で示されています[10]。オリゴデンドロサイトの系統でMCT1をなくしたマウスでは、若いうちは髄鞘が普通に作られるのに、年をとってから髄鞘が薄くなり、軸索の変性が起こることもわかっています[11]。
💡 用語解説:乳酸シャトルとは
乳酸シャトルとは、ある細胞が作った乳酸を、シャトルバスのように隣の細胞へ運んで渡し、エネルギー源として使ってもらう仕組みのことです。「乳酸」というと運動で疲れたときにたまる物質というイメージがあるかもしれませんが、脳の中では大切なエネルギーの燃料です。
さらに、この補給は軸索の働きぶりに合わせて調節されます。軸索が活発に信号を出すと、すき間のカリウムイオンの濃度が上がります。オリゴデンドロサイトはこれをKir4.1というカリウムチャネルで感じとり、糖の分解を高めて軸索へのエネルギー源の供給を増やします。オリゴデンドロサイトのKir4.1を働かなくすると、軸索の中の乳酸が減り、のちに軸索が傷むことが報告されています[12]。
「絶縁」と「栄養補給」は別々の仕事である
ミエリンの2つの役割(跳躍伝導のための絶縁と、軸索を生かすための栄養補給)が別々のしくみで成り立っていることは、遺伝子を壊したマウスの比較から見えてきました。MBPを欠くマウス(シバラーマウス)では膜の緻密化が強く障害されますが、軸索の変性はほとんど見られません。反対に、PLPを欠くマウスでは伝導は保たれているのに重い軸索の変性が起こり、CNPaseを欠くマウスでも、髄鞘が普通に見えるのに軸索の変性が起こります[13]。CNPaseは、髄鞘の中にある細胞質の細い通り道(ミエリンチャネル)を保つ「支え」として働いていることがわかっています[14]。この物流には、細胞の中でものを運ぶモーター分子であるキネシンやダイニンが関わると考えられています。
これらの知見は、髄鞘が壊れる病気を考えるうえで「見た目の髄鞘を戻すだけでは不十分で、グリアと軸索のエネルギーのやりとりまで立て直す必要がある」ことを示しています。ミエリンと軸索は、互いに依存し合う一つの単位として理解する必要があります。

🩺 院長コラム【「絶縁テープ」という古いイメージを手放す】
医学部で学んだころ、ミエリンは教科書で「電線の被覆」として教わりました。跳躍伝導を速くするための、いわば受け身の絶縁体という理解です。ところがこの20年ほどで、ミエリンを作る細胞が軸索に乳酸という燃料を手渡し、その命を支えているという事実が次々と明らかになりました。
この見方の転換は、病気の理解にも直結すると考えています。髄鞘の病気で「髄鞘が薄くなった」ことだけを見ていては本質を見誤ります。そのあいだに軸索がじわじわ栄養不足に陥っていないか、という視点を持てるかどうかが、これからの神経の病気の理解を大きく左右すると考えています。
5. 跳躍伝導の舞台裏──ランヴィエ絞輪とパラノードの精密構造
結論:髄鞘の働きは「伝導速度を速めること」で、その仕組みが跳躍伝導です。髄鞘には一定の間隔で約1マイクロメートルのすき間があり、ここだけ軸索の膜がむき出しになっています[3][15]。このすき間をランヴィエ絞輪と呼びます。電気信号は髄鞘に覆われた区間を一気に飛び越え、この絞輪でだけ「再点火」されます。飛び石を跳ぶように信号が進むこの方式を跳躍伝導といい、髄鞘がない神経線維に比べて、信号をずっと速く伝えられます。「活動電位に対する髄鞘の働きは何か」と問われたときの答えも、この伝導速度を速めること(跳躍伝導)です。
%3C/text%3E%3Ccircle cx='285' cy='170' r='12' fill='%23e74c3c'/%3E%3Ccircle cx='525' cy='170' r='12' fill='%23e74c3c'/%3E%3Ctext x='285' y='210' text-anchor='middle' font-size='12' fill='%23c0392b' font-weight='bold'%3E絞輪%3C/text%3E%3Ctext x='525' y='210' text-anchor='middle' font-size='12' fill='%23c0392b' font-weight='bold'%3E絞輪%3C/text%3E%3Cpath d='M60 120 Q175 70 290 120' fill='none' stroke='%23f39c12' stroke-width='3'/%3E%3Cpolygon points='284,112 296,120 282,126' fill='%23f39c12'/%3E%3Cpath d='M300 120 Q415 70 530 120' fill='none' stroke='%23f39c12' stroke-width='3'/%3E%3Cpolygon points='524,112 536,120 522,126' fill='%23f39c12'/%3E%3Ctext x='400' y='95' text-anchor='middle' font-size='12' fill='%23e67e22' font-weight='bold'%3E信号は絞輪から絞輪へジャンプ%3C/text%3E%3Ctext x='285' y='250' text-anchor='middle' font-size='11' fill='%237f8c8d'%3ENaチャネルが密集%3C/text%3E%3Ctext x='525' y='250' text-anchor='middle' font-size='11' fill='%237f8c8d'%3E→ここで活動電位を再生%3C/text%3E%3Ctext x='400' y='300' text-anchor='middle' font-size='12' fill='%2334495e'%3E髄鞘のない神経に比べ、信号はずっと速く伝わる%3C/text%3E%3C/svg%3E)
模式図:髄鞘で覆われた区間を信号が飛び越え、むき出しのランヴィエ絞輪でだけ活動電位が再生される。
この「再点火」を可能にするため、ランヴィエ絞輪には電位依存性ナトリウムチャネルが高い密度で集められており、信号を再生する「発電所」として働いています。ナトリウムチャネルの一つNav1.6をコードするSCN8A遺伝子や、カリウムチャネルKv7.2をコードするKCNQ2遺伝子の変化は、てんかんなどのチャネロパチー(イオンチャネル病)を引き起こします。
パラノード──絞輪の両脇を固める「密閉ドア」
ランヴィエ絞輪の両脇には、パラノード(傍絞輪部)という領域があります。ここでは、髄鞘を作る細胞の末端が軸索にぴったり密着し、電気やイオンが横に漏れないよう「密閉ドア」の役割を果たしています。この密着は、軸索側のCaspr(コンタクチン関連タンパク質)とコンタクチン、そしてグリア側のニューロファシン155(NF155)という接着分子どうしが、鍵と鍵穴のように結合することで作られます。
このドアは、絞輪のナトリウムチャネルと、その内側にあるカリウムチャネルが互いに混ざり合わないよう仕切る「柵(フェンス)」としても働きます。パラノードの接着が壊れるとチャネルが散らばり、信号がうまく伝わらなくなります(伝導ブロック)。後で述べる抗NF155抗体による病気は、まさにこのドアの分子が攻撃されて起こります。
6. 髄鞘が壊れる病気──多発性硬化症・MOGAD・パラノード病
結論:一度できた髄鞘が壊れることを「脱髄」といい、多発性硬化症などの病気で起こります。髄鞘やその周辺の接着部分は、免疫の攻撃対象にもなりやすい構造です。代表的な病気が多発性硬化症(MS)です。MSでは、血液脳関門を越えて脳に入り込んだ自己反応性の免疫細胞(T細胞・B細胞)が髄鞘を攻撃し、あちこちに脱髄の病変(プラーク)を作ります。脱髄が起こると信号が途切れ、手足の麻痺、視力障害、感覚のしびれなどが、再発と寛解を繰り返しながら現れます。
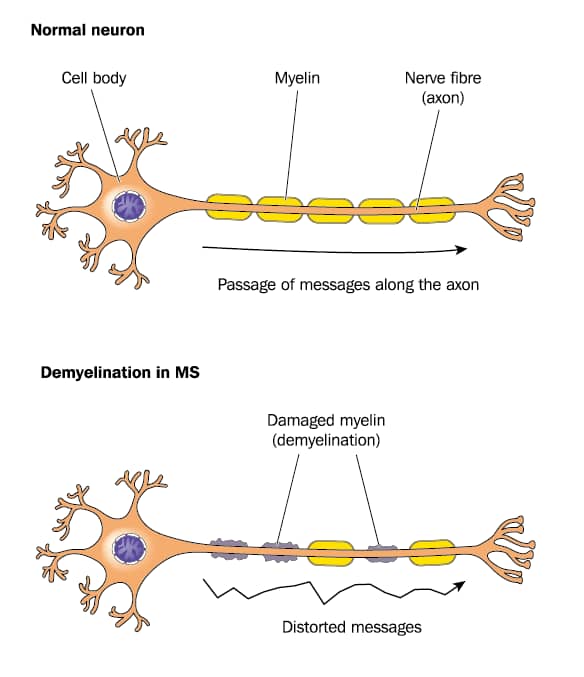
イメージ図:多発性硬化症では免疫細胞が髄鞘を攻撃し、脱髄が起こる。
近年では、プラークだけでなく、プラークとは別に広がる神経のゆっくりした変性が、長い目で見た障害の進み方に関わると考えられるようになりました。脱髄が続くと軸索はエネルギー不足に陥り、やがて失われていきます。これが進行型MSの、元に戻りにくい障害の土台になると考えられています。
💡 用語解説:脱髄(だつずい)と髄鞘形成不全の違い
脱髄とは、いったんできた髄鞘が壊れて剥がれ落ちてしまう状態です。電線の被覆が破れると電気が漏れて信号が乱れるのと同じで、脱髄が起こると神経の信号が遅れたり途切れたりします。これに対して髄鞘形成不全(低髄鞘)は、生まれつき髄鞘が十分に作られない状態で、PLP1遺伝子などの変化による遺伝性の病気で起こります。同じ「髄鞘の病気」でも、壊れるのか、もともと作られないのかで、原因も考え方も違います。脱髄を繰り返す病態についてはエピソード性脱髄もご覧ください。
MOGAD──MSとよく似て、しかし異なる脱髄疾患
MOGAD(MOG抗体関連疾患)は、髄鞘の一番外側にあるMOGというタンパク質に対する自己抗体によって起こる、MSとは別の脱髄疾患です。病理の研究では、MOGADでは小さな静脈の周りに広がる脱髄(静脈周囲性脱髄)と、広い範囲がまとまって抜ける脱髄が一緒に見られ、CD4陽性T細胞が中心の炎症に、好中球や好酸球などの顆粒球が加わることが報告されています[16]。また、MOGADではアストロサイト(星状膠細胞)が壊されない点が、アストロサイトが標的になる視神経脊髄炎(抗AQP4抗体陽性)と大きく違います[16][17]。同じ「脱髄」でも、何が壊れて何が残るかが病気ごとに違うのです。
パラノード病──「髄鞘は壊れていないのに」信号が乱れる
末梢神経の慢性の脱髄疾患であるCIDP(慢性炎症性脱髄性多発根ニューロパチー)と診断されてきた人の一部に、パラノードの接着分子(NF155、コンタクチン、Caspr)に対する自己抗体を持つグループがあります。抗ニューロファシン155(NF155)抗体はIgG4というタイプが主体で、この抗体を持つ人では、生活に支障の出るふるえ(振戦)を伴い、免疫グロブリン療法(IVIg)が効きにくいことが報告されています[18]。動物実験では、この抗体がパラノードの接着の組み立てを妨げ、髄鞘が壊れていないのに伝導が乱れることが示されています[19]。2021年の欧州神経学会・国際末梢神経学会の診療ガイドラインでは、こうした抗体を持つ場合はCIDPとは分けて扱うことになりました[20][21]。このように「髄鞘の破壊」ではなく「軸索とグリアの接着の働きの障害」を本質とする病態は、近年自己免疫性ノドパチーという新しいグループとして整理されています。
7. 髄鞘を「再生」する治療の研究
結論:壊れた髄鞘を作り直す薬は研究の段階にあり、まだ標準治療ではありません。これまでの多発性硬化症の治療薬は、異常な免疫反応を抑えて脱髄を「防ぐ」ものが中心で、すでに壊れた髄鞘を「修復」するものではありませんでした。そこで、脳の中に残っているオリゴデンドロサイト前駆細胞(OPC)を成熟させ、髄鞘を作り直させる薬の研究が進められています。
💡 用語解説:オリゴデンドロサイト前駆細胞(OPC)
OPCとは、将来オリゴデンドロサイト(髄鞘を作る細胞)に育つ「予備軍」の細胞です。大人の脳にも存在し、脱髄が起きると現場へ移動して成熟し、髄鞘を作り直そうとします。ところが病気が長引くと、OPCが成熟しきれなくなることが、髄鞘の再生がうまくいかない理由の一つと考えられています。再生をめざす薬の多くは、このOPCの成熟を後押しすることを狙っています。
メトホルミン+クレマスチン(CCMR Two試験)
注目されている研究の一つが、糖尿病の薬メトホルミンと、抗ヒスタミン薬クレマスチンを組み合わせる方法です。英国ケンブリッジ大学のCCMR Two試験は、再発寛解型の多発性硬化症で、視神経の伝導が遅くなっている人を対象にしたプラセボ対照の第2相試験です。クレマスチン5.36 mgを1日2回、メトホルミン(徐放錠)を少しずつ増やして最終的に1 gを1日2回、24週間飲み、主な評価項目として、目から脳へ信号が届くまでの時間(視覚誘発電位〔VEP〕の潜時)がどう変わるかを調べる計画です[22]。
2025年9月の欧州の多発性硬化症の学会(ECTRIMS 2025)で、実薬を飲んだ群ではプラセボ群に比べてVEPの潜時が保たれ、髄鞘の修復を示唆する結果だったと、試験チームが速報として報告しました。ただし、査読を受けた論文としては、2026年10月の時点でまだ確認できません。視力や障害の程度がよくなるかどうかは、より長い期間の検証が必要です。
うまくいかなかった薬と、これからの薬
髄鞘の再生は、とても難しい課題です。OPCの成熟を妨げるLINGO-1というタンパク質に対する抗体オピシヌマブは、急性視神経炎の第2相試験(RENEW)で、すべての参加者を含めた主要な解析では効果を示せず、計画どおり治療を続けた人に限った解析で改善の可能性が示されるにとどまりました[23]。その後、多発性硬化症での第2相試験(AFFINITY)でも評価項目を達成できず、開発企業は2020年に開発の中止を発表しています。M1ムスカリン受容体を抑えるPIPE-307も、再発寛解型の多発性硬化症の第2相試験(VISTA)で主要・副次の評価項目を達成できなかったと、2025年11月に開発企業が発表しました。
一方、OPCの成熟にブレーキをかけるGPR17という受容体を抑える飲み薬PTD802は、2026年6月に米国FDAから、健康な成人で安全性を確かめる最初の試験を始める許可(IND)を得たと開発企業が発表しています。いずれも研究の段階で、標準治療ではありません。
8. 遺伝性の髄鞘疾患と遺伝子検査・遺伝カウンセリング
結論:髄鞘は、生まれつきの遺伝子の変化によっても障害され、その多くは遺伝子検査で原因を調べられます。髄鞘を作るタンパク質や、その材料となる脂質を分解する酵素の遺伝子が変化すると、遺伝性の神経の病気が起こります。こうした病気は、遺伝子検査・遺伝形式の評価・遺伝カウンセリングの対象になり、ミエリンの分子生物学と臨床遺伝が直接つながる領域です。
末梢神経の髄鞘に関わる代表がシャルコー・マリー・トゥース病(CMT)です。最も多いのは、PMP22遺伝子を含む領域の重複によって髄鞘が障害されるタイプ(CMT1A)です。GJB1遺伝子(コネキシン32)の変化によるX連鎖型も知られています。中枢神経では、PLP1遺伝子の変化によるペリツェウス・メルツバッハ病が、髄鞘そのものが十分に作られない「髄鞘形成不全」の代表例です。同じグループには、TUBB4A遺伝子による髄鞘化不全性白質ジストロフィー6型(HLD6/H-ABC)、低髄鞘化白質ジストロフィー14型(HLD14)、末梢の脱髄と中枢の髄鞘形成不全を合わせ持つPCWH症候群などもあります。
ミエリンに多い糖脂質を分解する酵素の異常も、重い髄鞘の病気を起こします。GALC遺伝子の変化によるクラッベ病や、ARSA遺伝子の変化による異染性白質ジストロフィー、そして副腎白質ジストロフィーなどが、白質(髄鞘の集まった部分)が障害される「白質ジストロフィー」に含まれます。これらの多くは常染色体潜性(劣性)遺伝やX連鎖遺伝など、決まった遺伝形式をとるため、ご家族の中で次に同じ病気が起こる可能性(再発率)を見積もることが大切になります。
日本の指定難病での扱い
髄鞘が関わる病気の多くは、日本では難病法にもとづく指定難病になっており、診断基準と重症度を満たせば医療費の助成を受けられます[24][25][26]。遺伝子検査で原因がはっきりすることは、診断を確かなものにするうえでも意味があります。
🏥 髄鞘が関わる主な指定難病(告示番号)
| 告示番号 | 指定難病の名前 | 髄鞘との関わり |
|---|---|---|
| 10 | シャルコー・マリー・トゥース病 | 末梢神経の髄鞘や軸索の遺伝性の病気 |
| 13 | 多発性硬化症/視神経脊髄炎 | 免疫による中枢神経の脱髄 |
| 14 | 慢性炎症性脱髄性多発神経炎/多巣性運動ニューロパチー | 免疫による末梢神経の脱髄 |
| 19 | ライソゾーム病(クラッベ病・異染性白質ジストロフィーを含む) | 髄鞘の糖脂質を分解できない遺伝性の病気 |
| 20 | 副腎白質ジストロフィー | X連鎖の遺伝性の白質の病気 |
| 139 | 先天性大脳白質形成不全症(ペリツェウス・メルツバッハ病、基底核および小脳萎縮を伴う髄鞘形成不全症〔H-ABC〕、PCWHなど11疾患) | 中枢神経の髄鞘が生まれつき十分に作られない |
出典:厚生労働省「指定難病の概要、診断基準等」(告示番号1〜348、令和8年4月時点)、指定難病139・19の概要資料[24][25][26]。助成の対象になるかは、診断基準と重症度の基準を満たすかで決まります。
当院で調べられる遺伝子検査
当院では、臨床遺伝専門医が常駐し、髄鞘の病気に関わる遺伝子をまとめて調べるパネル検査を扱っています。中枢神経の髄鞘形成不全が疑われるときは低髄鞘性白質ジストロフィー(大脳白質形成不全症)NGSパネルや白質脳症NGSパネル、末梢神経の病気が疑われるときはCMT遺伝子パネルや遺伝性ニューロパチーNGSパネルが候補になります。パネルで原因が見つからないときは、全エクソーム検査(WES)のように調べる範囲を広げる方法もあります。どの検査が合うかは、症状・MRIの所見・家族歴によって変わるため、遺伝カウンセリングで整理してから選びます。
また、常染色体潜性(劣性)遺伝やX連鎖遺伝の病気は、ご両親が症状のない「保因者」であることから起こります。これから妊娠を考えるご夫婦が自分たちの保因者の状態を知りたいときは、拡大版保因者スクリーニングがあります。妊娠中にNIPTを受ける方は、NIPTと同じ日の採血でカップルの保因者検査ができるファミリーセーフティ プラス(女性787遺伝子・男性714遺伝子、単独では受けられません)も選べます。NIPTそのものでは、ご両親が保因者かどうかは調べられません。
🩺 院長コラム【「分子の言葉」を読み解いて伝えること】
遺伝性の髄鞘の病気は、原因となる遺伝子も、たどる経過も一つひとつ異なります。同じ「白質ジストロフィー」という言葉でも、GALCの変化なのかARSAの変化なのかで意味はまったく変わります。正確な遺伝子診断こそが、ご家族が今後の見通しを理解し、次のお子さんのことも含めて選択肢を考えるための出発点になると考えています。
髄鞘の再生医療はまだ研究の途上ですが、免疫による脱髄でも遺伝性の髄鞘の病気でも、「何が壊れているのか、何が作られていないのか」を分子のレベルで読み解く姿勢は共通しています。その言葉を、専門家ではないご家族にも届く形に翻訳してお伝えすることが、臨床遺伝専門医の役割だと考えています。
9. よくある誤解
誤解①「ミエリンはただの絶縁テープだ」
絶縁は大切な役割ですが、それだけではありません。ミエリンを作る細胞は軸索に乳酸などのエネルギーを供給し、その生存を支えています。この補給が滞ると、髄鞘が残っていても軸索は変性します。
誤解②「髄鞘と神経鞘は同じものだ」
髄鞘は軸索に巻きついた何十層もの膜、神経鞘(シュワン鞘)は末梢神経でシュワン細胞の核と細胞質が残る外側の部分です。どちらもシュワン細胞が作りますが、指している部分が違います。
誤解③「髄鞘を再生する薬はもう完成している」
髄鞘の修復を示した臨床試験の報告はありますが、まだ研究の段階で、標準治療ではありません。一つの経路だけを狙った薬が効果を示せなかった例も複数あります。
誤解④「髄鞘の病気は免疫が原因だけだ」
免疫による脱髄が有名ですが、生まれつきの遺伝子の変化による髄鞘の病気も数多くあります。PLP1・GJB1・GALC・ARSAなどの遺伝子が関わり、遺伝子検査と遺伝カウンセリングの対象になります。
よくある質問(FAQ)
Q1. 髄鞘の読み方は?ミエリン鞘と同じものですか?
髄鞘は「ずいしょう」と読みます。ミエリン鞘(ミエリンしょう)・ミエリンと同じものを指し、英語ではmyelin sheathといいます。軸索に何十層も巻きついた脂質の多い膜で、神経の信号を速く伝えるための絶縁体として働きます。
Q2. 髄鞘の役割(働き)は何ですか?
主な役割は2つです。1つ目は、髄鞘のすき間(ランヴィエ絞輪)から次のすき間へ信号を飛ばす跳躍伝導によって、神経の伝導速度を速めることです。2つ目は、髄鞘を作る細胞が乳酸などのエネルギー源を軸索に渡し、軸索を長く生かし続けることです。
Q3. 髄鞘を作る細胞は何ですか?
脳と脊髄(中枢神経)ではオリゴデンドロサイト、手足に向かう末梢神経ではシュワン細胞が髄鞘を作ります。オリゴデンドロサイトは1個の細胞で何本もの軸索を包み、シュワン細胞は1個で1本の軸索の1区間だけを包みます。
Q4. 髄鞘と神経鞘(シュワン鞘)の違いは何ですか?
髄鞘は軸索に何十層も巻きついた脂質の膜で、神経鞘(シュワン鞘)は末梢神経でシュワン細胞の核と細胞質が残る一番外側の部分です。どちらもシュワン細胞が作りますが、指している部分が違います。脳や脊髄の髄鞘には神経鞘にあたる層はありません。
Q5. 髄鞘化(ミエリン化)とは何ですか?いつ進みますか?
髄鞘化(ミエリン化)とは、オリゴデンドロサイトやシュワン細胞が軸索に膜を巻きつけ、髄鞘ができあがっていく過程のことです。ヒトでは胎児期の妊娠12〜13週ごろに脊髄で始まり、生まれたときの脳はまだほとんど髄鞘化されていません。その後少しずつ進み、大脳の新皮質では思春期を越えて成人の初めごろまで続きます。
Q6. 髄鞘が障害されるとどうなりますか?
髄鞘が壊れたり(脱髄)、生まれつき十分に作られなかったり(髄鞘形成不全)すると、信号が遅れたり途切れたりして、手足の麻痺やしびれ、視力の低下、ふらつき、発達の遅れなどが起こります。多発性硬化症やCIDPのように免疫が原因のものと、ペリツェウス・メルツバッハ病や白質ジストロフィー、シャルコー・マリー・トゥース病のように遺伝子の変化が原因のものがあります。
Q7. 「髄鞘は壊れていないのに信号が乱れる」ことがあるのですか?
はい。抗NF155抗体などによる自己免疫性ノドパチーでは、髄鞘そのものではなく、ランヴィエ絞輪の脇にある「密閉ドア」(パラノードの接着部分)が障害されます。現在の国際的な診療ガイドラインでは、こうした抗体を持つ場合はCIDPとは分けて考えるようになっています。
Q8. 一度壊れた髄鞘は元に戻せるのですか?
まだ研究の段階で、標準治療ではありません。メトホルミンとクレマスチンを組み合わせた臨床試験(CCMR Two)では、視神経の伝導の遅れが保たれ、髄鞘の修復を示唆する結果が学会で速報されましたが、査読を受けた論文はまだ確認できず、視力などがよくなるかは長い期間の検証が必要です。一方で、効果を示せなかった薬も複数あります。
Q9. 遺伝性の髄鞘の病気には、どんなものがありますか?
末梢神経ではシャルコー・マリー・トゥース病、中枢神経ではPLP1遺伝子の変化によるペリツェウス・メルツバッハ病などの先天性大脳白質形成不全症が代表的です。髄鞘の糖脂質を分解する酵素の異常によるクラッベ病(GALC)や異染性白質ジストロフィー(ARSA)、副腎白質ジストロフィーもあります。多くは日本の指定難病になっています。
Q10. 髄鞘の病気が心配なとき、ミネルバクリニックでは何ができますか?
臨床遺伝専門医が常駐し、低髄鞘性白質ジストロフィー、白質脳症、シャルコー・マリー・トゥース病、遺伝性ニューロパチーなどの遺伝子パネル検査を扱っています。どの検査が合うかを遺伝カウンセリングで整理し、結果の意味や遺伝形式にもとづく再発率もお伝えします。診断の確定や治療そのものは、神経内科・小児神経の専門の医療機関と連携して進めるのが一般的です。
🏥 遺伝性の髄鞘の病気を、遺伝子から調べる
臨床遺伝専門医が常駐し、低髄鞘性白質ジストロフィー・白質脳症・シャルコー・マリー・トゥース病・遺伝性ニューロパチーの遺伝子パネル検査を扱っています。検査の選び方から、結果の意味、遺伝形式にもとづく再発率まで同じ医師がお伝えします。
まだ決めていない方は:遺伝性ニューロパチーの遺伝子検査 | 取扱い遺伝子検査の一覧
参考文献
- [1] Kister A, Kister I. Overview of myelin, major myelin lipids, and myelin-associated proteins. Front Chem. 2023;10:1041961. [DOI 10.3389/fchem.2022.1041961]
- [2] Osanai Y, Yamazaki R, Shinohara Y, Ohno N. Heterogeneity and regulation of oligodendrocyte morphology. Front Cell Dev Biol. 2022;10:1030486. [DOI 10.3389/fcell.2022.1030486]
- [3] Fallon M, Tadi P. Histology, Schwann Cells. StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; updated 2023. [NCBI Bookshelf NBK544316]
- [4] Weidenheim KM, Kress Y, Epshteyn I, et al. Early myelination in the human fetal lumbosacral spinal cord. J Neuropathol Exp Neurol. 1992;51(2):142-149. [DOI 10.1097/00005072-199203000-00004]
- [5] Williamson JM, Lyons DA. Myelin dynamics throughout life: an ever-changing landscape? Front Cell Neurosci. 2018;12:424. [DOI 10.3389/fncel.2018.00424]
- [6] Miller DJ, Duka T, Stimpson CD, et al. Prolonged myelination in human neocortical evolution. Proc Natl Acad Sci U S A. 2012;109(41):16480-16485. [DOI 10.1073/pnas.1117943109]
- [7] Jackman N, Ishii A, Bansal R. Oligodendrocyte development and myelin biogenesis: parsing out the roles of glycosphingolipids. Physiology (Bethesda). 2009;24(5):290-297. [DOI 10.1152/physiol.00016.2009]
- [8] Majava V, Polverini E, Mazzini A, et al. Structural and functional characterization of human peripheral nervous system myelin protein P2. PLoS One. 2010;5(4):e10300. [DOI 10.1371/journal.pone.0010300]
- [9] McMahon RM, Friis L, Siebold C, et al. Structure of HLA-A*0301 in complex with a peptide of proteolipid protein: insights into the role of HLA-A alleles in susceptibility to multiple sclerosis. Acta Crystallogr D Biol Crystallogr. 2011;67(Pt 5):447-454. [DOI 10.1107/S0907444911007888]
- [10] Lee Y, Morrison BM, Li Y, et al. Oligodendroglia metabolically support axons and contribute to neurodegeneration. Nature. 2012;487(7408):443-448. [DOI 10.1038/nature11314]
- [11] Philips T, Mironova YA, Jouroukhin Y, et al. MCT1 deletion in oligodendrocyte lineage cells causes late-onset hypomyelination and axonal degeneration. Cell Rep. 2021;34(2):108610. [DOI 10.1016/j.celrep.2020.108610]
- [12] Looser ZJ, Faik Z, Ravotto L, et al. Oligodendrocyte-axon metabolic coupling is mediated by extracellular K+ and maintains axonal health. Nat Neurosci. 2024;27(3):433-448. [DOI 10.1038/s41593-023-01558-3]
- [13] Philips T, Rothstein JD. Oligodendroglia: metabolic supporters of neurons. J Clin Invest. 2017;127(9):3271-3280. [DOI 10.1172/JCI90610]
- [14] Snaidero N, Velte C, Myllykoski M, et al. Antagonistic functions of MBP and CNP establish cytosolic channels in CNS myelin. Cell Rep. 2017;18(2):314-323. [DOI 10.1016/j.celrep.2016.12.053]
- [15] Arancibia-Cárcamo IL, Ford MC, Cossell L, et al. Node of Ranvier length as a potential regulator of myelinated axon conduction speed. eLife. 2017;6:e23329. [DOI 10.7554/eLife.23329]
- [16] Höftberger R, Guo Y, Flanagan EP, et al. The pathology of central nervous system inflammatory demyelinating disease accompanying myelin oligodendrocyte glycoprotein autoantibody. Acta Neuropathol. 2020;139(5):875-892. [DOI 10.1007/s00401-020-02132-y]
- [17] Takai Y, Misu T, Fujihara K, et al. Pathology of myelin oligodendrocyte glycoprotein antibody-associated disease: a comparison with multiple sclerosis and aquaporin 4 antibody-positive neuromyelitis optica spectrum disorders. Front Neurol. 2023;14:1209749. [DOI 10.3389/fneur.2023.1209749]
- [18] Querol L, Nogales-Gadea G, Rojas-Garcia R, et al. Neurofascin IgG4 antibodies in CIDP associate with disabling tremor and poor response to IVIg. Neurology. 2014;82(10):879-886. [DOI 10.1212/WNL.0000000000000205]
- [19] Manso C, Querol L, Lleixà C, et al. Anti-neurofascin-155 IgG4 antibodies prevent paranodal complex formation in vivo. J Clin Invest. 2019;129(6):2222-2236. [DOI 10.1172/JCI124694]
- [20] Van den Bergh PYK, van Doorn PA, Hadden RDM, et al. European Academy of Neurology/Peripheral Nerve Society guideline on diagnosis and treatment of chronic inflammatory demyelinating polyradiculoneuropathy: report of a joint Task Force—second revision. J Peripher Nerv Syst. 2021;26(3):242-268. [DOI 10.1111/jns.12455]
- [21] Karam C. Chronic inflammatory demyelinating polyradiculoneuropathy: five new things. Neurol Clin Pract. 2022;12(3):258-262. [DOI 10.1212/CPJ.0000000000001150]
- [22] Riboni-Verri G, McMurran CE, Mukherjee T, et al. The Cambridge Centre for Myelin Repair trial Two (CCMR Two): a trial protocol for a phase 2a randomised controlled trial of metformin and clemastine in relapsing-remitting multiple sclerosis. Trials. 2025;26:562. [DOI 10.1186/s13063-025-09254-2]
- [23] Cadavid D, Balcer L, Galetta S, et al. Safety and efficacy of opicinumab in acute optic neuritis (RENEW): a randomised, placebo-controlled, phase 2 trial. Lancet Neurol. 2017;16(3):189-199. [DOI 10.1016/S1474-4422(16)30377-5]
- [24] 厚生労働省. 指定難病の概要、診断基準等、臨床調査個人票(告示番号1〜348)令和8年4月時点. [厚生労働省]
- [25] 厚生労働省. 指定難病139 先天性大脳白質形成不全症 概要・診断基準等. [厚生労働省]
- [26] 厚生労働省. 指定難病19 ライソゾーム病 概要・診断基準等. [厚生労働省]
※本記事は一般の方に向けた情報提供を目的とするもので、個別の診断・治療を示すものではありません。






